发布于 2026-11-14 · 内容最后核查:2026-11-18 · 撰写与审核:吕开阳(执业医师,整形外科·主任医师,上海三甲医院)
描 述 性 综 述 · DESCRIPTIVE REVIEW
毛囊相关细胞对皮肤再生
与瘢痕形成的作用
近二十年(2006—2026)文献描述性综述
————————————————————————
检索区间:2006-01-01 至 2026-11-14
数据来源:PubMed / Europe PMC / PubTator3 / Semantic Scholar(BioMCP)
去重题录 425 篇 · 精读 164 篇 · 引证 152 篇 · 示意图 6 幅 · 表格 3 张
成文日期:2026 年 11 月
本文为文献描述性综述,仅供研究与教学参考,不构成临床诊疗建议。
摘要
目的 系统梳理近二十年(2006—2026 年)关于毛囊相关细胞在皮肤再生与瘢痕形成中作用的文献,形成一篇面向创面修复、再生医学与皮肤科研究者的描述性综述。方法 以 BioMCP 生物医学检索通道联合检索 PubMed、Europe PMC、PubTator3 等数据源,围绕毛囊干细胞、外根鞘细胞、真皮乳头与真皮鞘细胞、毛囊间充质干细胞、创面诱导毛囊新生、成纤维细胞谱系与纤维化等主题进行多轮检索,时间限定 2006-01-01 至 2026-11-14;共获得 425 篇去重题录,其中 164 篇调取完整题录与摘要(156 篇含摘要全文),精读后 152 篇进入本文引证。结果 毛囊是皮肤内最集中的成体干细胞储库,其上皮区室(bulge/Lgr5+/Lgr6+/外根鞘/毛母质)、间充质区室(真皮乳头、真皮鞘/真皮鞘杯、毛囊周围成纤维细胞、真皮白色脂肪组织)与免疫—神经—血管龛共同构成一个可被动员的再生单元。损伤后,毛囊上皮细胞在数小时内被动员并参与再上皮化,但其子代在创面表皮中多为暂时性贡献;真皮乳头与真皮鞘细胞通过 Wnt/β-catenin、Shh、BMP 等通路重建上皮—间充质相互作用,是新生毛囊与附属器再生的诱导核心。大面积全层创面中出现的创面诱导毛囊新生(WIHN)依赖 γδT 细胞—FGF9—Wnt 正反馈、巨噬细胞 TNF—AKT/β-catenin、调节性 T 细胞—Notch 及共生菌—HIF-1α/谷氨酰胺代谢构成的多方轴。另一方面,瘢痕的本质是 Engrailed-1 谱系阳性(EPF)、DPP4+ 网状成纤维细胞在 YAP/TAZ 机械信号与 TGF-β1/Smad3 驱动下向肌成纤维细胞分化并沉积平行排列的Ⅰ型胶原;毛囊单位缺失既是瘢痕的结果,也是纤维化持续进展的原因。临床层面,含毛囊的头皮环钻移植在随机对照试验中显著加速静脉性溃疡愈合,生长期毛囊移植可重塑成熟瘢痕;细胞与无细胞制品、原位成纤维细胞重编程、类器官与工程化皮肤构成了四条递进的转化路线。结论 毛囊相关细胞通过”上皮再上皮化—间充质诱导—免疫微环境—力学转导”四个层次同时决定创面走向功能性再生或纤维化。以毛囊单位为核心的干预策略已从经验性移植走向机制导向的原位重编程,但 WIHN 在人类的存在性、谱系贡献的持久性、物种差异与长期安全性仍待解决。
关键词:毛囊干细胞;外根鞘;真皮乳头细胞;真皮鞘细胞;创面愈合;皮肤再生;创面诱导毛囊新生;瘢痕;纤维化;成纤维细胞异质性;描述性综述
1 引言
1.1 从”封闭创面”到”再生器官”
成年哺乳动物皮肤损伤后的默认结局是纤维化修复:以快速恢复屏障完整性为优先,代价是形成缺乏弹性、缺乏附属器、缺乏正常表皮—真皮交界结构的瘢痕。增生性瘢痕与瘢痕疙瘩在烧伤、创伤与手术后发生率可观,伴随疼痛、瘙痒、挛缩与功能障碍,其分子与细胞机制至今未被完全阐明 [1,2,3]。与之相对,早期妊娠胎儿皮肤、口腔黏膜以及某些具备强再生能力的物种(如刺毛鼠 Acomys)可以实现近乎无瘢痕的结构性修复 [4,5,6]。因此,现代创面修复研究的核心问题已从”如何更快闭合”转向”如何让创面重新长出具有功能的皮肤器官”[7,8]。
在这一转向中,毛囊成为最值得关注的切入点。一方面,毛囊是哺乳动物皮肤中结构最复杂、干细胞密度最高的微型器官,终生经历生长期(anagen)—退行期(catagen)—休止期(telogen)的周期性再生,本身就是成体器官再生的天然模型 [9,10]。另一方面,临床上长期观察到多毛部位创面愈合更快、瘢痕更轻,而深度烧伤后毛囊不可逆丢失的区域几乎总以瘢痕与附属器缺失告终 [11,12]。近二十年的谱系示踪、单细胞转录组与功能获得/缺失实验,使”毛囊细胞是创面修复的主动参与者”这一假说获得了较为坚实的证据支持 [13,14,15]。
1.2 为什么需要一篇以”细胞”为轴心的综述
既往综述多按信号通路、按疾病(脱发、瘢痕)或按技术(组织工程、外泌体)组织。本文选择以细胞类型为轴心,原因在于:同一信号(如 Wnt/β-catenin)在毛囊上皮、真皮乳头、创面成纤维细胞中具有截然不同甚至相反的效应 [16,17];同一细胞(如外根鞘角质形成细胞)在生理修复中促进再上皮化,在 TGF-β1 富集的病理微环境中却可发生上皮—间充质转化(EMT)而参与瘢痕疙瘩形成 [18]。以细胞为轴心,更易把”促再生”与”促纤维化”这两套看似矛盾的文献整合进同一个框架。
1.3 检索策略与文献范围
本文为描述性(叙述性)综述,非系统评价与 Meta 分析。检索于 2026 年 11 月完成,借助 BioMCP 生物医学检索通道(聚合 PubMed、Europe PMC、PubTator3、Semantic Scholar 等来源),以中英文主题词组合进行 35 轮检索,覆盖 2006-01-01 至 2026-11-14 发表的文献。主要检索概念包括:hair follicle stem cells / bulge / outer root sheath、dermal papilla cells / dermal sheath cells / dermal sheath cup cells、wound-induced hair follicle neogenesis (WIHN)、re-epithelialization / skin regeneration、Engrailed-1 / DPP4+ fibroblasts / myofibroblast、hypertrophic scar / keloid / fibrosis、Wnt / Shh / BMP / Hippo-YAP / mechanotransduction、hair follicle organoid / bioprinting / microneedle、hair follicle punch graft / follicular unit transplantation 等。初检获得 425 篇去重题录;对其中与主题直接或机制相关的 164 篇调取完整题录与摘要(156 篇含摘要全文);结合被引频次、研究类型(原创研究优先,综述用于背景与框架)、物种与临床相关性进行取舍,最终 152 篇进入正文引证,按首次出现顺序编号。对 2006 年之前具有奠基意义但超出时间窗的经典工作,仅在必要处作为背景提及,不列入主要引证。
需要说明三点局限:其一,检索依赖相关性排序,不构成对全部文献的穷尽性计量;其二,2026 年的部分条目为在线预发表,证据等级需谨慎看待;其三,本文不对纳入研究做偏倚风险定量评价,结论以机制性归纳为主。
1.4 术语与范畴界定
本文中”毛囊相关细胞”指毛囊微器官本身及其紧邻微环境中、结构与功能上依赖毛囊的细胞群,包括:毛囊上皮干细胞及祖细胞(bulge、Lgr5+、Lgr6+、外根鞘、毛母质、皮脂腺干细胞)、毛囊间充质细胞(真皮乳头细胞、真皮鞘细胞、真皮鞘杯细胞、毛囊周围/乳头层成纤维细胞)、毛囊来源的间充质干细胞与黑色素细胞干细胞,以及与毛囊龛紧密关联的免疫细胞、神经嵴前体、血管内皮与真皮白色脂肪细胞。”皮肤再生”指恢复表皮、真皮及附属器(毛囊、皮脂腺、汗腺)结构与功能;”瘢痕”指以胶原过度沉积、附属器缺失为特征的纤维化修复结局,含增生性瘢痕与瘢痕疙瘩。
2 毛囊作为成体干细胞储库的细胞学基础
2.1 毛囊微器官的结构分区
毛囊自上而下可分为漏斗部(infundibulum)、峡部(isthmus)、隆突部(bulge)以下的周期性下部与毛球(bulb)。毛囊被外根鞘(ORS)包裹,内层为内根鞘与毛干;毛球底部包埋真皮乳头(dermal papilla, DP),外围由真皮鞘(dermal sheath, DS)包绕;皮脂腺开口于峡部上方,立毛肌附着于 bulge 附近;毛囊周围分布着密集的血管网、神经末梢与免疫细胞,深部与真皮白色脂肪组织(dermal white adipose tissue, dWAT)相邻 [9,19,20]。这一结构使毛囊同时具备上皮与间充质两套可独立又相互诱导的细胞区室。
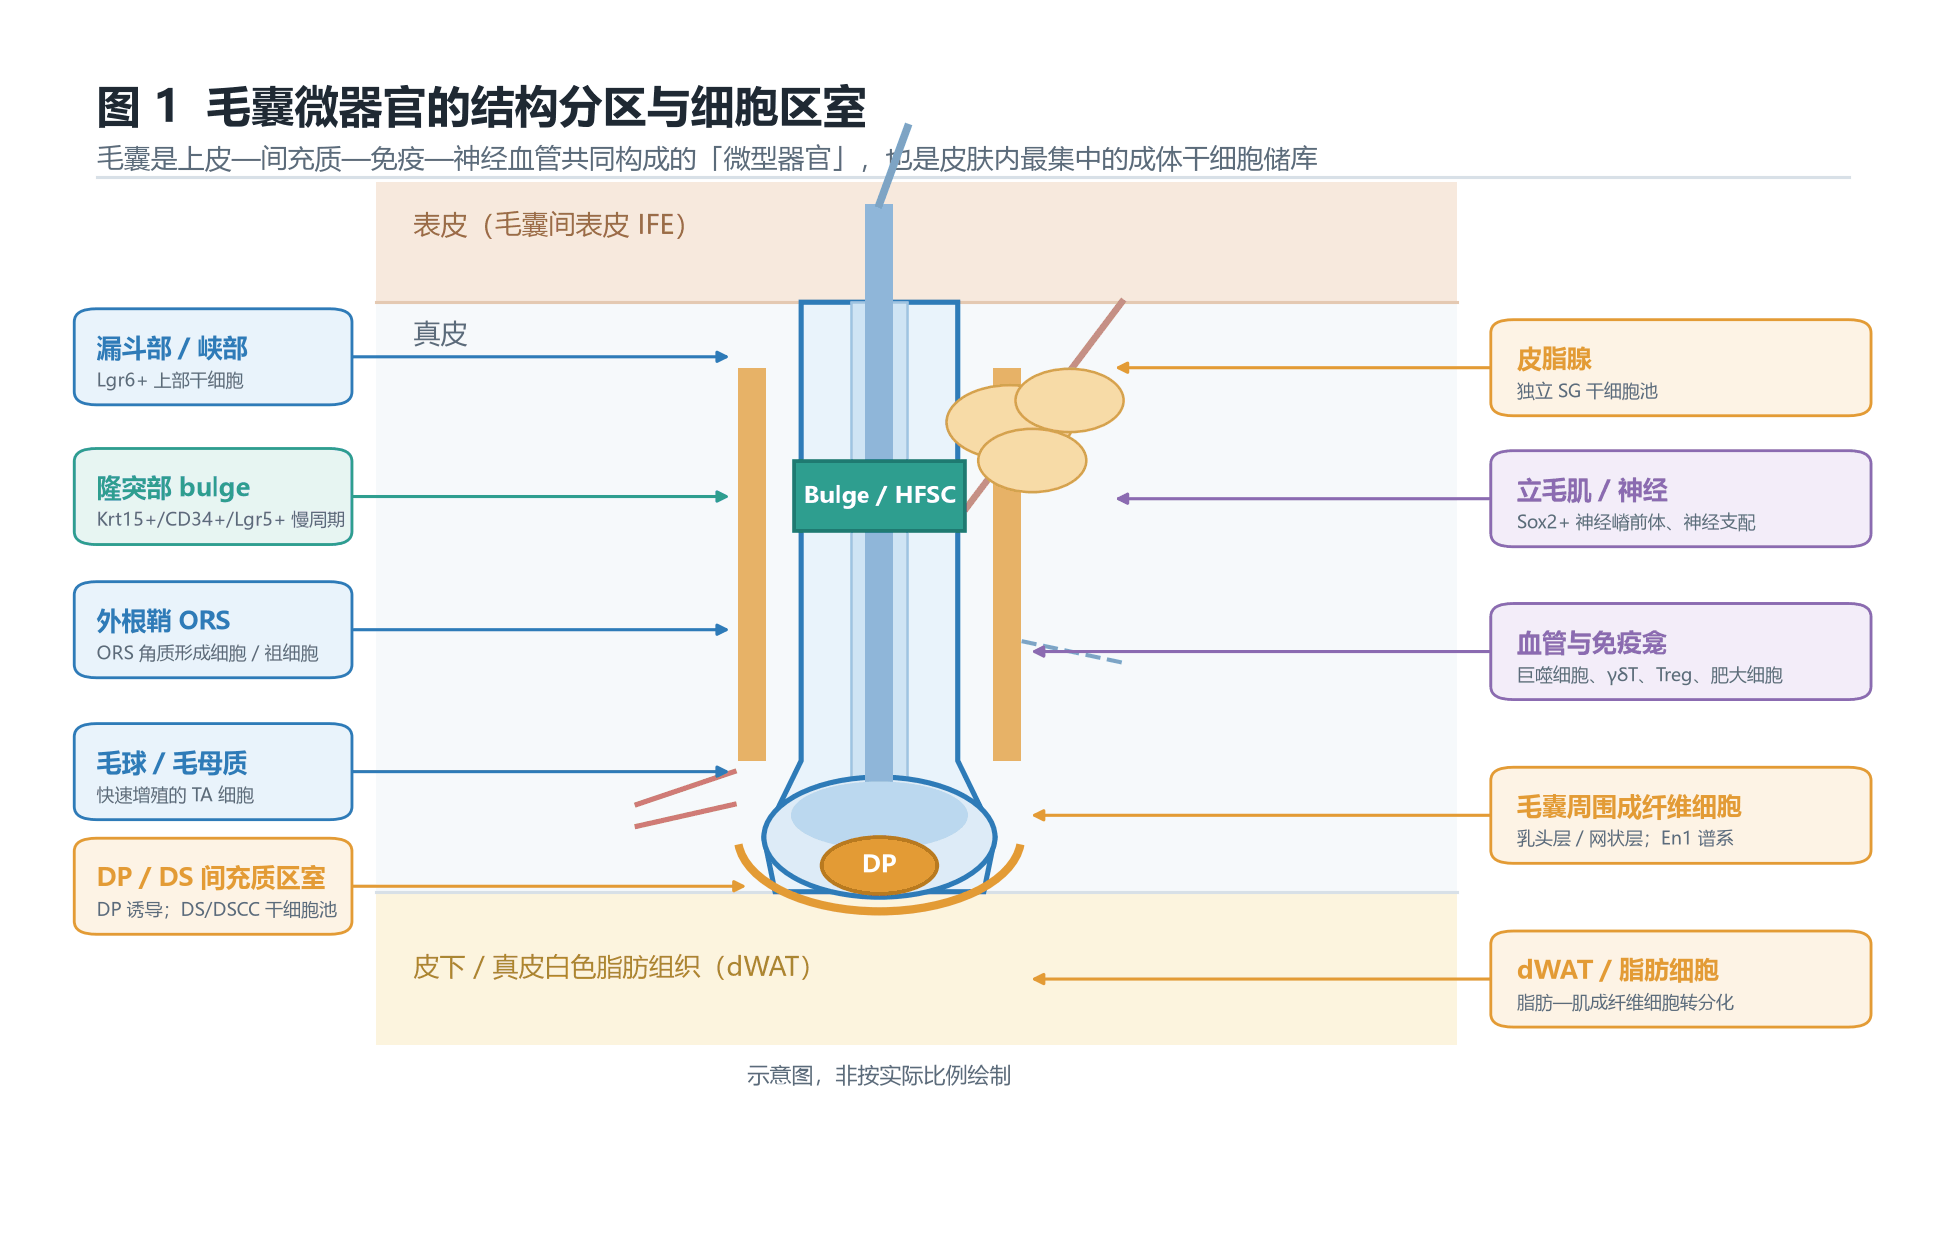
图 1 毛囊微器官的结构分区与细胞区室。示意图展示表皮与毛囊间表皮、漏斗部/峡部、隆突部 bulge 干细胞龛、外根鞘、毛球/毛母质、真皮乳头(DP)与真皮鞘(DS)、皮脂腺、立毛肌与神经、血管与免疫龛、毛囊周围成纤维细胞以及真皮白色脂肪组织(dWAT)的相对位置与代表性标志物。
2.2 上皮区室:多层级、可替换的干细胞池
早期研究把 bulge 视为唯一的慢周期毛囊干细胞库,其特征性标志物包括 Krt15、CD34、Lgr5 与 Sox9 等 [19,21]。Jaks 等证明 Lgr5 标记的是 bulge 与次级毛芽中”活跃增殖但长期存续”的干细胞群,能够长期重建毛囊所有上皮谱系 [22];Snippert 等进一步发现 Lgr6 标记位于 bulge 上方、此前未被识别的一群细胞,在胚胎期建立毛囊、皮脂腺与毛囊间表皮,出生后仍可参与全部皮肤上皮谱系的更新 [23]。后续跨物种比较提示 LGR5 在多个物种中都是保守的毛囊干细胞标志物,并在毛囊形态发生早期即出现 [24]。
这些发现颠覆了”单一龛—单一层级”的模型。KROX20(EGR2)谱系研究显示,毛囊上皮干细胞甚至可在稳态下向毛囊间表皮贡献细胞 [25,26];Thy1 标记的基底角质形成细胞构成另一群慢周期干细胞 [27];而 bulge 内不同亚群对毛囊—皮脂腺单位的维持具有 β-catenin 依赖的分工 [28]。皮脂腺则拥有相对独立、在损伤后可被募集的专属干细胞池 [29]。换言之,皮肤上皮的稳态与修复依赖一个分工但可互相替代的多层级干细胞系统,这种”冗余的可塑性”正是损伤后快速再上皮化的细胞学基础 [15,30,31]。
2.3 间充质区室:从”支持细胞”到”诱导中枢”
真皮乳头细胞(DPC)位于毛球底部,是毛囊周期与毛囊大小的信号中枢;其最关键的实验特性是毛诱导能力(trichogenicity):将 DPC 与上皮细胞共移植可诱导完整毛囊形成 [32,33]。体外单层扩增会迅速丧失该能力,而三维球体培养、低氧、共培养与微环境重编程可部分恢复 [34,35,36]。Hey2 谱系示踪等工作进一步揭示 DP 细胞在稳态与损伤修复中的来源与可塑性 [37]。
真皮鞘(DS)包绕毛囊外侧,其下端的真皮鞘杯(DSCC)被认为具有间充质干细胞特性,可补充并再生 DP;早期综述即指出 DS 细胞参与皮肤创面愈合、具有免疫豁免与多向分化潜能 [38,39]。近年研究强调 DS 细胞通过旁分泌调节炎症、增殖与细胞外基质重塑,在含毛与无毛部位创面愈合差异中可能扮演被长期低估的角色 [39];DSCC 来源外泌体还能延缓 DPC 衰老、恢复其诱导能力 [40]。
毛囊周围的乳头层成纤维细胞与网状层成纤维细胞属于两个发育谱系:前者(含 DP/DS 谱系)参与毛囊形态发生与再生性修复,后者主要产生修复性胶原并主导瘢痕 [41,42,43]。这一”上下两层、两种命运”的划分,是理解毛囊细胞与瘢痕关系的关键桥梁。此外,dWAT 通过脂肪—肌成纤维细胞转分化参与纤维化,也是毛囊微环境的重要调节者 [20,44]。
2.4 神经、血管与免疫龛
毛囊 bulge 附近富集 Sox2 阳性神经嵴前体,损伤后被诱导并参与皮肤修复 [45];毛囊周围血管网络不仅提供营养,也是干细胞龛信号与免疫细胞进入创面的通道 [46]。免疫层面,巨噬细胞、γδT 细胞、调节性 T 细胞(Treg)、肥大细胞与皮肤共生微生物共同构成”免疫—微生物—上皮”三角,后文 3.5 节将详述其在 WIHN 中的作用 [47,48,49]。
2.5 单细胞分辨率下的异质性与可塑性
单细胞转录组把上述解剖学分区转化为可量化的分子图谱:小鼠休止期表皮的 1 422 个单细胞可聚类为 25 个不同的毛囊间表皮与毛囊上皮群体 [50];对 Lgr5 与 Lgr6 谱系细胞在损伤前后的追踪显示,不同龛来源的干细胞在创面中会迅速发生转录组趋同,获得相似的”修复态”特征,这种适应在数天内即可完成 [14]。后续综述进一步指出,毛囊生态系统的细胞类型、状态转换与空间印记需要以单细胞与空间组学联合解析 [51,52]。可塑性是双刃剑:它赋予修复能力,也意味着在慢性炎症或肿瘤微环境中可能发生异常命运转换 [15,31]。
表 1 毛囊相关主要细胞类型、代表性标志物及其在再生与瘢痕中的作用
| 区室 | 细胞类型 | 代表性标志物 | 稳态功能 | 损伤后主要作用 | 与瘢痕的关系 |
|---|---|---|---|---|---|
| 上皮 | Bulge 毛囊干细胞 | Krt15、CD34、Sox9、Lgr5 | 周期性再生毛囊 | 早期迁出、参与再上皮化(多为暂时性) | 缺失时附属器不能再生 |
| 上皮 | Lgr6+ 上部干细胞 | Lgr6 | 维持峡部/皮脂腺/毛囊间表皮 | 机械张力下被募集,驱动表皮生长 | 间接抗纤维化 |
| 上皮 | 外根鞘(ORS)细胞 | Krt14、Krt5、p63 | 包裹毛囊、储备祖细胞 | 增殖迁移、条件培养基促毛诱导、可制成自体表皮片 | TGF-β1 下可发生 EMT,参与瘢痕疙瘩 |
| 上皮 | 毛母质 TA 细胞 | Shh、Lef1、Msx2 | 产生毛干与内根鞘 | 提供高增殖活性上皮祖细胞 | 一般随毛囊缺失而消失 |
| 上皮 | 皮脂腺干细胞 | Lrig1、Blimp1 | 维持皮脂腺 | 损伤后可被募集参与附属器再生 | 附属器恢复的标志之一 |
| 间充质 | 真皮乳头细胞(DPC) | Versican、Lef1、ALP、Hey2 | 控制毛囊周期与毛干规格 | 上皮—间充质相互作用诱导新生毛囊 | 诱导性微环境缺失促纤维化 |
| 间充质 | 真皮鞘/真皮鞘杯细胞(DS/DSCC) | α-SMA、CD133 | 维持并补充 DP | 旁分泌调节炎症、ECM 与 DP 再生 | 参与纤维化的双向调节 |
| 间充质 | 毛囊周围乳头层成纤维细胞 | Dlk1、CD26−(部分) | 支持毛囊形态发生 | 响应 Shh,诱导毛囊新生 | 再生型(ENF 相关) |
| 间充质 | 网状层成纤维细胞 | DPP4/CD26、En1、Prrx1 | 合成承重胶原 | 产生修复性基质 | 主要瘢痕形成细胞(EPF) |
| 其他 | 毛囊间充质干细胞(ORS-MSC) | CD73/CD90/CD105 | 组织稳态 | 免疫调节、促血管生成 | 减轻增生性瘢痕 |
| 其他 | 免疫细胞 | F4/80、γδTCR、Foxp3 | 免疫监视 | TNF/FGF9/Jagged1 激活干细胞 | 决定炎症消退或慢性化 |
| 其他 | dWAT / 脂肪细胞 | Adiponectin、Perilipin | 能量与信号储备 | 支持毛囊周期 | 脂肪—肌成纤维细胞转分化 |
| 注:标志物为文献中常用的代表性分子,不同物种、部位与周期时相存在差异;ENF/EPF 为 Engrailed-1 谱系阴性/阳性成纤维细胞。 |
|---|
3 毛囊相关细胞参与皮肤再生的证据
3.1 再上皮化:动员、贡献与”暂时性”问题
损伤后数小时内,创缘毛囊 bulge 与上部外根鞘的细胞即被激活,向创面迁移形成再上皮化舌;再上皮化的创面表皮呈”马赛克”式构成,其子代可追溯至毛囊间表皮干细胞与多个毛囊干细胞群 [13,53]。谱系示踪与单细胞研究一致显示,毛囊来源细胞在急性期贡献显著,但多数子代在愈合完成后逐渐被毛囊间表皮来源的细胞替代,长期维持表皮稳态的仍是 resident 的毛囊间表皮干细胞 [14,30]。这一”早期救急、长期退场”的特征对临床解读十分重要:促进毛囊细胞动员可以加速闭合,但不等于永久重建附属器[13,25]。
功能层面,人头皮毛囊来源细胞在体外划痕实验中较非毛囊头皮细胞表现出更强的迁移与愈合反应,且受雌激素调节 [54];毛囊角质形成细胞条件培养基可激活真皮细胞的 Wnt 等毛诱导通路 [55];核心蛋白聚糖 Decorin 促进 ORS 角质形成细胞增殖迁移并维持生长期 [56]。临床上,以自体生长期毛囊 ORS 细胞构建的表皮片已用于慢性创面移植(”Leipzig 经验”)[57];近年更细分的研究比较了人毛囊上段、下段与毛球来源上皮细胞,发现毛球上皮细胞(BEC)活力与增殖能力最强,局部应用后上皮化最明显、瘢痕减少且人源细胞保留更久 [58]。
3.2 毛囊周期、机械张力与创缘的耦合
创缘毛囊常在损伤后提前进入生长期,形成”局部生长期带”,为再上皮化提供额外细胞来源;机械张力本身即是有效的动员信号——控制性组织扩张研究发现,表皮生长主要由机械张力驱动 Lgr6+ 表皮干细胞增殖完成 [59],毛囊干细胞在扩张条件下显著促进表皮再生 [60,61]。拔毛等轻微机械刺激可通过 CCL2 等趋化信号使成年皮肤细胞重新获得自组织与毛发再生能力 [62]。这些结果把”力学—干细胞—再生”连接成一条可干预的因果链。
3.3 真皮与附属器再生:DP/DS 与乳头层成纤维细胞的诱导作用
真正区分”瘢痕”与”再生”的,不是表皮闭合速度,而是真皮能否重新形成有功能的附属器。毛囊间充质区室在此居于核心:一方面,DPC 通过分泌 Wnt、FGF、IGF 等因子维持上皮干细胞的毛命运 [32,63];另一方面,创面真皮成纤维细胞必须被”重编程”为具有 DP 样诱导能力的状态,新生毛囊才可能出现 [64,65]。
关键的谱系证据来自 Shh 通路研究:网状层成纤维细胞中的 Hedgehog 信号主要促进早期修复(血管生成、成纤维细胞增殖),而乳头层成纤维细胞中的 Hedgehog 信号是创面内诱导新生毛囊的必要条件[43]。进一步研究显示,真皮 β-catenin 是 Hedgehog 驱动毛囊新生所必需的,Wnt 与 Hh 必须在创面成纤维细胞中同时被激活,才能形成新的 DP [16]。这解释了为什么单纯激活 Wnt 或单纯抗纤维化往往不足以重建附属器。
自体毛囊移植的大动物实验提供了有趣的补充:在巴马小型猪模型中,去除 DP 的毛囊移植仍可促进创面修复与再生,提示 ORS/上皮区室与创面微环境本身也具备相当的贡献,DP 并非唯一活性来源 [66,67]。
3.4 创面诱导毛囊新生(WIHN):现象、时序与细胞来源
2007 年 Ito 等在 Nature 上以谱系分析确证:成年野生型小鼠大面积全层创面愈合后可从头形成完整毛囊,新生毛囊建立自己的干细胞群、表达分化标志、长出毛干并经历完整周期;谱系分析显示它们并非来自原有的 bulge 干细胞龛,而是创面表皮细胞获得毛囊干细胞表型的结果;再上皮化后抑制 Wnt 可完全阻断该过程,表皮过表达 Wnt 配体则增加新生毛囊数 [68]。这一工作把此前被否定的”成年哺乳动物可新生毛囊”重新确立为可实验操作的范式。
后续研究厘清了 WIHN 的若干基本特征:它在形态与信号上高度重演胚胎毛囊发育,但其 Wnt 激活依赖来自免疫系统的 FGF9,且存在最小创面面积阈值、新生毛囊集中于创面中心等现象;新生毛囊并不来源于预先存在的 bulge 干细胞,提示可能存在类似”芽基(blastema)”的表观遗传重编程机制 [69,70][71,72]。单细胞与细胞群动力学研究进一步表明,允许 WIHN 的并非某一整类细胞,而是特定的细胞亚群状态与创面中心/边缘的空间分区 [73,74]。近年来多篇综述系统梳理了 WIHN 的分子网络、与胚胎发育的异同以及向人类转化的障碍 [75,76][77,78]。
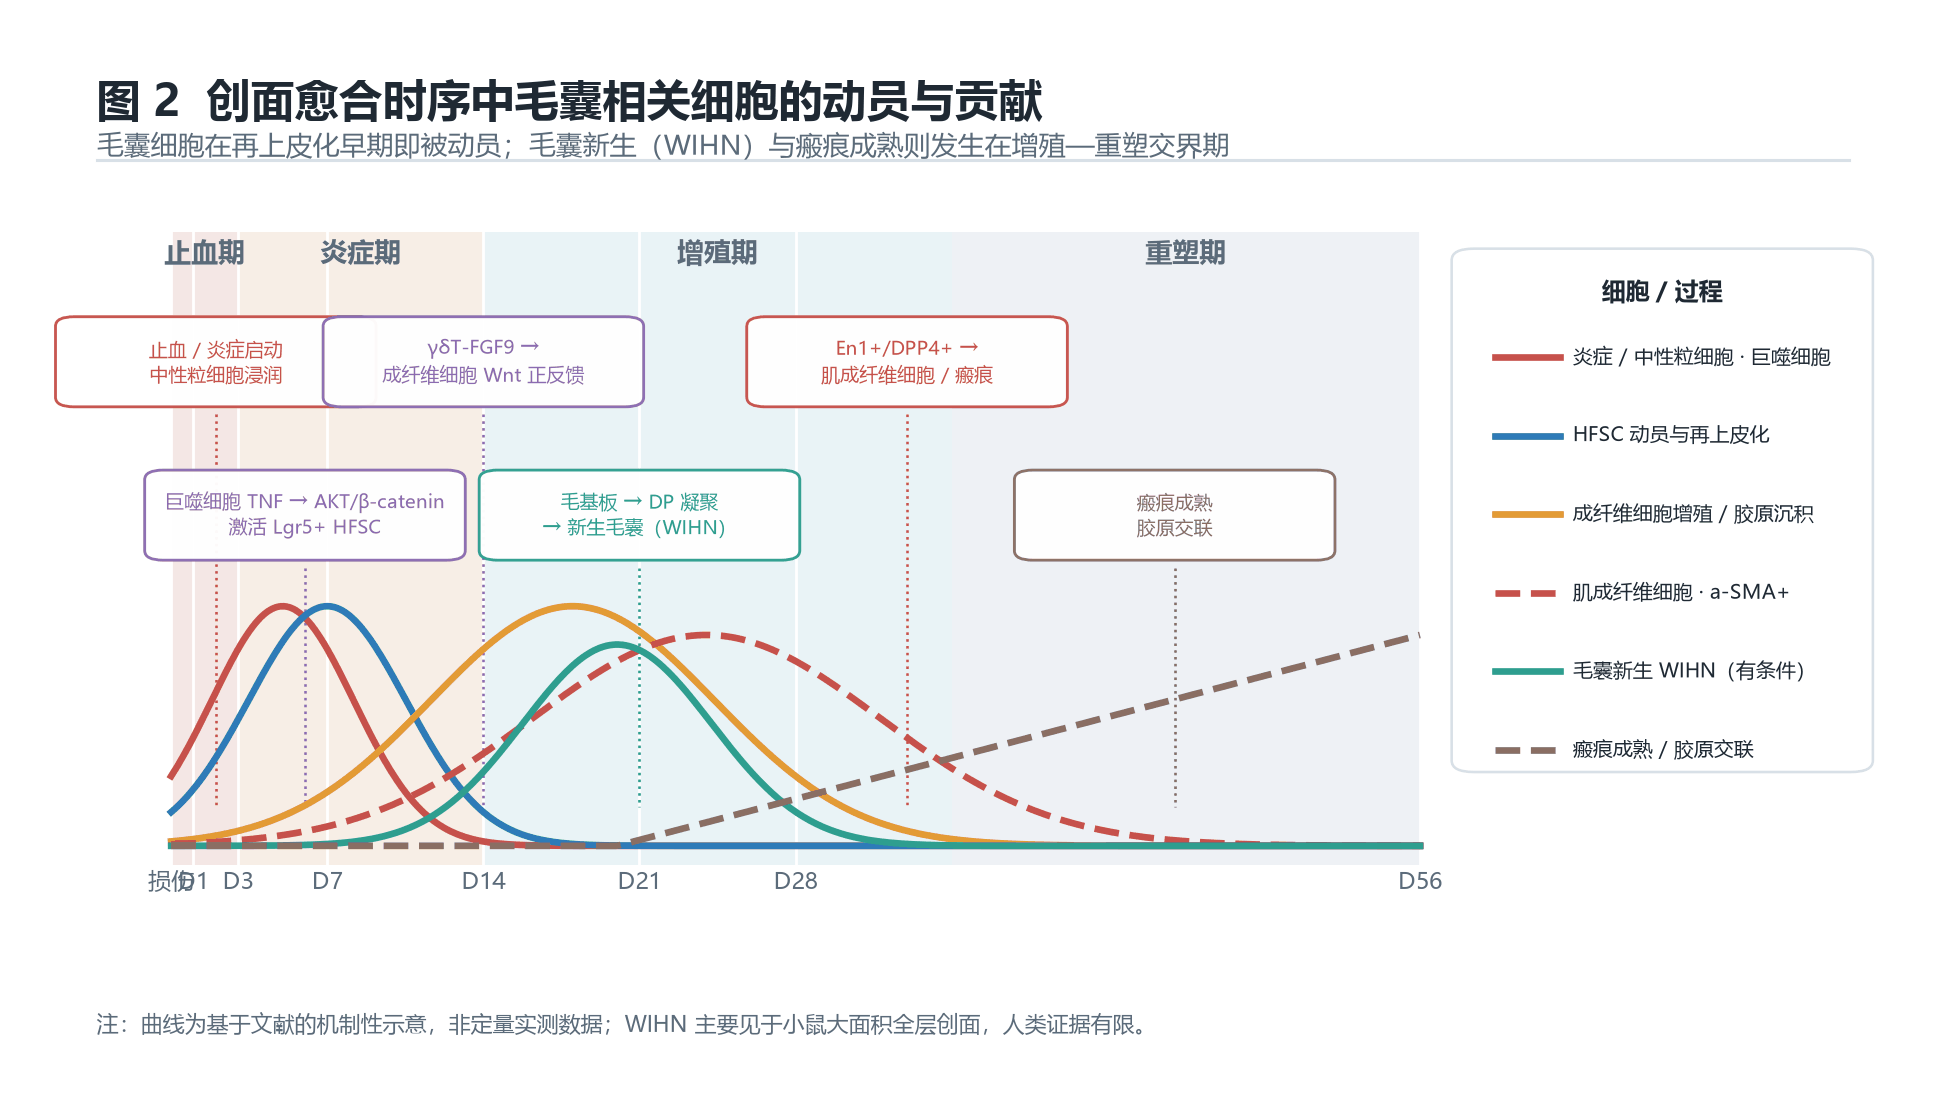
图 2 创面愈合时序中毛囊相关细胞的动员与贡献。图示止血期、炎症期、增殖期、重塑期中炎症反应、HFSC 动员与再上皮化、成纤维细胞增殖、肌成纤维细胞、毛囊新生(WIHN)与瘢痕成熟的相对时序,以及关键分子事件。
3.5 WIHN 的免疫—微生物—上皮—间充质轴
WIHN 最富启发性的发现,是”再生”竟由通常被视为防御系统的免疫信号启动:
γδT 细胞—FGF9—Wnt 正反馈:Gay 等证明真皮 γδT 细胞分泌的 FGF9 是 WIHN 的关键启动因子,敲低 FGF9 减少新生毛囊,过表达则使其增加 2~3 倍;FGF9 诱导创面成纤维细胞表达 Wnt,后者又促使成纤维细胞自身表达 FGF9,形成贯穿创面真皮的放大环路。作者特别指出,人真皮缺乏强大的常驻 γδT 细胞群,这可能是人类难以自发 WIHN 的重要原因 [79]。角质形成细胞来源的 IL-1α 与 IL-7 也可通过扩增 γδT 细胞间接刺激毛囊干细胞增殖 [80];TLR9 激活同样经 γδT 细胞促进大面积创面修复与毛囊再生 [81]。
巨噬细胞—TNF—AKT/β-catenin:创面巨噬细胞经 TNF 以剂量依赖方式激活 Lgr5+ 毛囊干细胞,诱导创周休止期—生长期转换与毛囊新生;TNF 诱导的 β-catenin 累积依赖 AKT 而非 Wnt,抑制 PI3K/AKT 阻断该效应,Pten 缺失则可在无损伤条件下启动生长期 [82]。损伤诱导的 IL-1α 亦被证明可直接促进 Lgr5+ 干细胞的从头再生与增殖,且该能力与年龄相关 [83]。
Treg 与 Jagged1/Notch:毛囊干细胞迁入炎症性创面后会上调 CD80、MHCII 与 CXCL5 等免疫调节程序;CD80 缺失损害再上皮化并减少外周诱导的 Treg 聚集,说明毛囊干细胞主动”招募”免疫保护 [84,85]。Treg 通过 Jagged1/Notch 支持毛囊形态发生 [48]。
共生菌—代谢轴:皮肤常驻菌通过 IL-1β/MyD88 与低氧—HIF-1α—谷氨酰胺代谢重编程放大再生;在人皮肤创面上局部使用广谱抗生素会抑制谷氨酰胺代谢并削弱毛囊再生 [48,86]。RNase L 缺失通过增强 IL-36α 提高 WIHN,提示哺乳动物可能主动”抑制”再生程序,构成一类可解除的刹车 [87]。
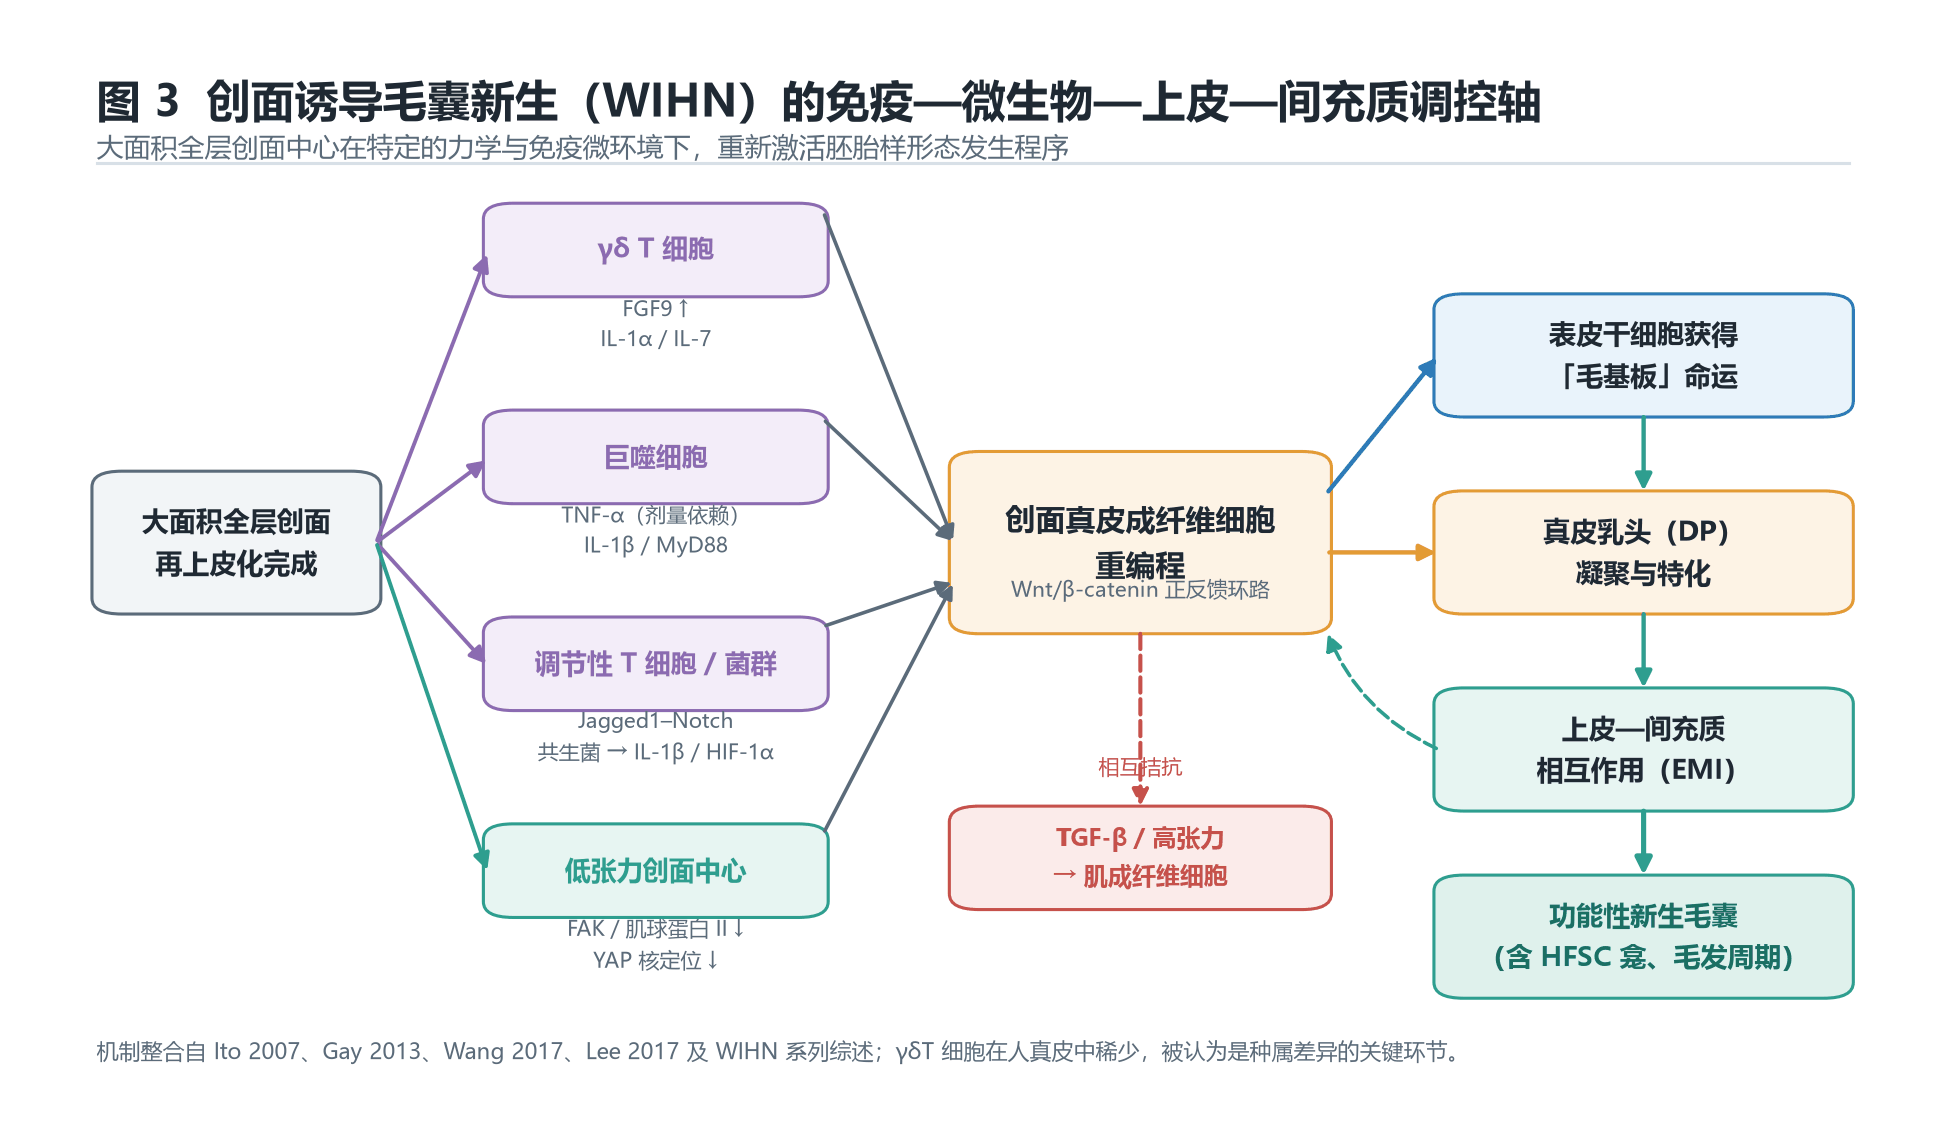
图 3 创面诱导毛囊新生(WIHN)的免疫—微生物—上皮—间充质调控轴。γδT 细胞经 FGF9、巨噬细胞经 TNF、Treg 经 Jagged1/Notch、共生菌经 IL-1β/MyD88 与 HIF-1α 汇聚于创面成纤维细胞重编程,进而驱动表皮毛基板命运与真皮乳头凝聚。
3.6 血管、神经、脂肪与全身因素的协同
毛囊再生并非孤立事件。自体毛囊移植到慢性不愈合创面后,除表皮各层与表皮连接恢复外,还观察到血管、淋巴管、神经纤维与汗腺结构重新出现,同时免疫细胞与炎症信号显著下降,提示毛囊单位可作为一个”组织发生组织者(organizer)”重建多个皮肤组分 [46]。dWAT 与脂肪细胞通过分泌脂肪因子与炎症介质调节毛囊周期与成纤维细胞命运 [20];Ⅲ型胶原在刺毛鼠等再生型模型中调控基质架构与机械感知,影响再上皮化与瘢痕形成 [88]。全身因素方面,糖尿病通过抑制 Wnt/β-catenin 削弱毛发再生与 WIHN,Wnt 激活剂可部分恢复 [89,90];衰老伴随 HFSC 及其龛的退变,是老年创面再生能力下降的重要机制 [70,91]。
3.7 小结:再生的四个层次
综合上述证据,毛囊相关细胞参与皮肤再生可归纳为四个递进层次:①上皮层——HFSC/ORS 细胞快速动员、完成再上皮化(速度快但多为暂时性贡献);②间充质诱导层——DP/DS 与乳头层成纤维细胞重建上皮—间充质相互作用(决定能否形成附属器);③微环境层——免疫、微生物、血管、神经、脂肪与代谢共同决定炎症是消退还是慢性化;④力学层——基质刚度与张力经 YAP/TAZ、FAK 决定成纤维细胞的命运分支。任何单一层次的干预都难以实现完整的器官级再生。
4 毛囊相关细胞与瘢痕形成
4.1 瘢痕的细胞学本质:成纤维细胞谱系异质性
过去十年最深刻的观念转变,是把”瘢痕”从”胶原代谢失衡”重新定义为特定成纤维细胞谱系被选择性激活的结果。Driskell 等通过移植与谱系示踪证明,皮肤结缔组织成纤维细胞来自两个不同谱系:一个形成上层真皮(包括调控毛囊的真皮乳头),另一个形成下层网状真皮并主导修复性胶原沉积 [41]。Rinkevich 等进一步分离出在小鼠背部皮肤中承担绝大部分结缔组织沉积(胚胎发育、创面愈合、放射性纤维化、肿瘤基质)的单一谱系,鉴定 CD26/DPP4 为其表面标志,谱系特异性清除可减少创面胶原沉积,而小分子抑制 CD26 酶活性可减轻皮肤瘢痕 [92]。随后,Engrailed-1(En1)被确认为关键的分水岭:En1 谱系阴性成纤维细胞(ENF)在机械张力作用下于成年创面中激活 En1 表达,转化为促纤维化的 EPF;以 verteporfin 抑制 YAP 或成纤维细胞特异性敲除 YAP 可阻断该转化,使创面通过 ENF 实现再生,恢复皮肤附属器、超微结构与力学强度 [93,94]。发育层面,两条相继出现的胚胎成纤维细胞谱系驱动了从”无瘢痕再生”到”瘢痕修复”的自然转变 [95,96];Prrx1 谱系则是腹侧真皮中固有的促纤维化亚群 [97];LRRC15+ 肌成纤维细胞被提出为连接修复、纤维化与瘢痕的共同基质状态 [98]。
这些发现把”毛囊”与”瘢痕”直接连在一起:能够诱导毛囊的乳头层/DP 谱系,与产生瘢痕的网状层/EPF 谱系,恰是同一发育树上的两个分支[42,43]。创面中若前者占优并重建 DP,则走向附属器再生;若后者在张力与 TGF-β 下扩增,则形成无毛囊的胶原性瘢痕 [3,99]。
4.2 毛囊缺失与纤维化的互为因果
成人创面几乎不再生毛囊与皮脂腺,瘢痕组织因此永久缺乏附属器 [8,42]。传统观点把附属器缺失视为瘢痕的”结果”,但近年的干预研究提示它同时也是”原因”:毛囊单位的周期性重塑为周围真皮提供持续的抗纤维化信号,缺乏该信号时,真皮基质更易走向僵硬的平行胶原排列。最直接的证据来自人体 pilot 研究:将生长期毛囊移植入成熟瘢痕后,表皮增厚、表皮—真皮交界重新出现交错、真皮细胞密度与血管密度上升,Ⅰ型胶原总比例、粗纤维比例与排列一致性下降,同时 TGF-β1、IL-13、IL-6 等促纤维化因子长期受抑 [100]。也就是说,毛囊不是被动的”装饰性附属器”,而是主动维持真皮结构稳态的器官单位。
反向证据同样存在:瘢痕疙瘩组织中,来自表皮与皮肤附属器的上皮细胞出现 E-cadherin 丢失、FSP1 与 vimentin 获得,伴随 TGF-β1 升高与 Smad3 磷酸化;FGFR2 剪接由 IIIb 向 IIIc 转换、p63 下调;TGF-β1 可诱导毛囊外根鞘角质形成细胞发生 EMT [18]。因此毛囊上皮细胞在特定病理微环境中可能”倒戈”,成为肌成纤维细胞样细胞的来源之一——这正是以细胞为轴心综述的价值所在。
4.3 毛囊细胞的抗纤维化作用
与上述促纤维化潜能相对,毛囊来源的间充质细胞总体表现出抗纤维化与促再生效应。从小鼠触须毛囊外根鞘分离、经气液界面法扩增的 MSC 样细胞系(moMSCORS)在同基因 C57BL/6 全层创面模型中降低炎症程度、加速闭合,组织学显示细胞密度更低、胶原纤维更少、真皮与表皮层更薄,α-SMA 标记减少,整体呈现增生性瘢痕减轻 [101]。真皮鞘细胞则通过旁分泌调节炎症、增殖与 ECM 重塑,被认为是有毛部位愈合优于无毛部位的原因之一 [38,39]。毛囊间充质干细胞及其分泌组的免疫调节、促血管生成与抗纤维化作用,也被多篇综述归纳为细胞治疗的重要机制 [102,103]。中文综述同样总结:毛囊移植与毛囊相关干细胞治疗后瘢痕更轻甚至无瘢痕形成,其机制与 BMP、Wnt 等通路密切相关 [12]。
4.4 力学—YAP/TAZ—En1 轴:分岔的可药物干预节点
机械张力是连接”创面物理环境”与”细胞命运”的核心变量。Mascharak 等证实底物力学经经典机械转导驱动 ENF 中 En1 激活 [93];在大型动物与人类细胞中,阻断 FAK 通路可显著加速愈合并促进含毛囊等次级结构的皮肤再生,而机械力经 ERK–YAP 使成纤维细胞转向促纤维化表型 [104]。创面刚度呈中心低、边缘高的梯度,WIHN 恰发生于较软的创面中心;FAK 或肌球蛋白 Ⅱ 抑制剂降低机械转导可显著增加 WIHN,肌动蛋白稳定剂则相反,并伴随 α-SMA 下调与 pSTAT3 核定位增强 [105]。2025 年的研究进一步揭示 Wnt 信号本身具有”力学调节”功能:Wnt 诱导染色质重塑使细胞核刚度下降约 10 倍,并重组肌动蛋白架构、招募黏附连接形成”机械合胞体”,从而在组织层面驱动毛囊再生 [17]。Hippo–YAP/TAZ 在表皮命运、成纤维细胞 ECM 稳态与纤维化中的枢纽作用,则构成另一条互相呼应的证据链 [106,107][108,109]。刺毛鼠之所以能无瘢痕愈合,与其成纤维细胞中 PP2A 依赖的 YAP 核定位时程缩短、肌成纤维细胞及时清除有关 [5];而 Hmmr+ 成纤维细胞通过感知 ECM 黏弹性、分泌基质成分激活 HFSC,说明特定基质细胞亚群还能主动构建”促再生的力学龛”[110]。
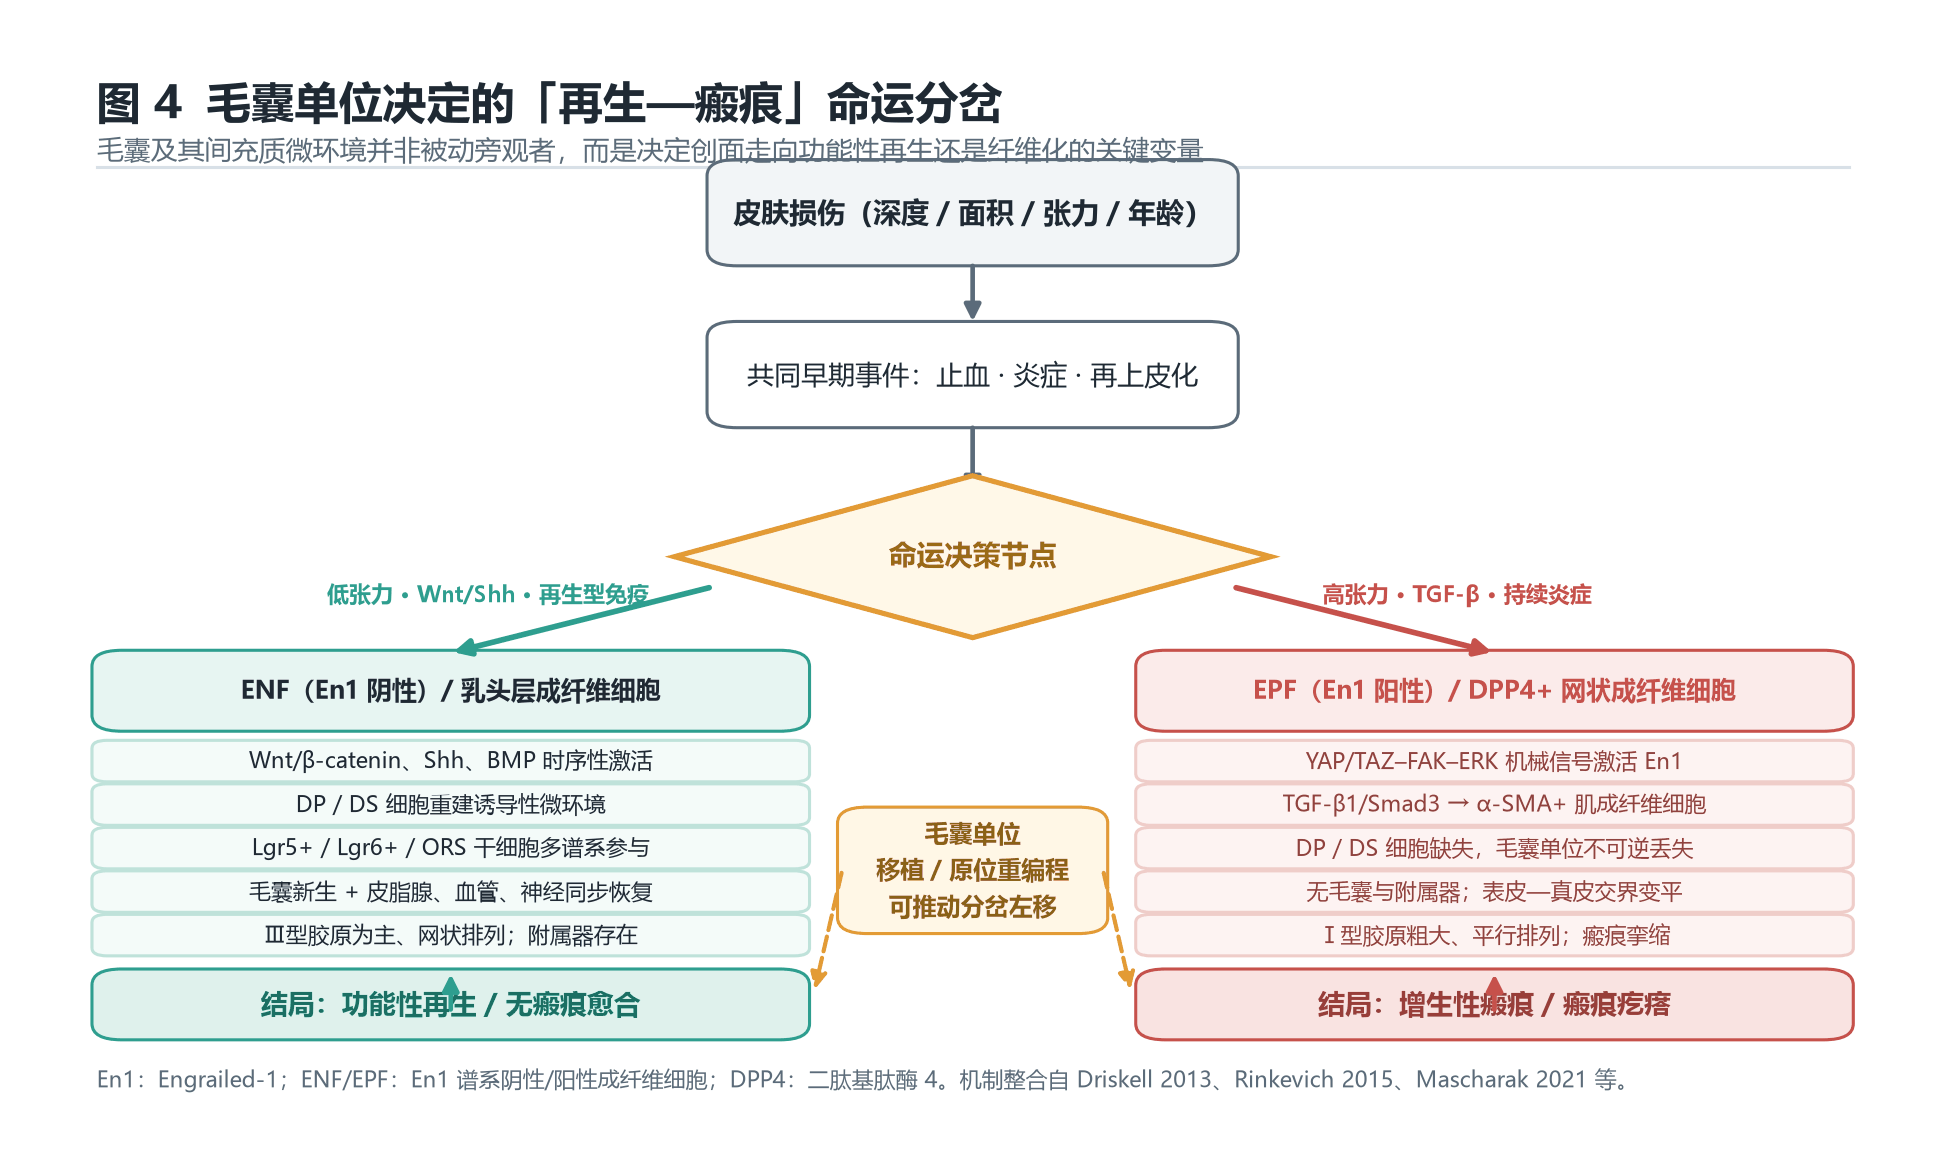
图 4 毛囊单位决定的「再生—瘢痕」命运分岔。共同早期事件之后,低张力、Wnt/Shh 优势与再生型免疫使 ENF/乳头层成纤维细胞占优并重建 DP;高张力、TGF-β 与持续炎症使 EPF/DPP4+ 网状成纤维细胞占优,形成无附属器的胶原性瘢痕。毛囊单位移植与原位重编程可推动分岔左移。
表 2 毛囊相关细胞促再生与促瘢痕作用的证据对照
| 维度 | 促再生侧 | 促瘢痕/纤维化侧 |
|---|---|---|
| 主导细胞 | ENF、乳头层成纤维细胞、DP/DS 细胞、Lgr5+/Lgr6+/ORS 干细胞 | EPF、DPP4+ 网状成纤维细胞、α-SMA+ 肌成纤维细胞、EMT 后的 ORS 角质形成细胞 |
| 关键转录/信号 | Wnt/β-catenin、Shh/Gli、BMP 时序、PI3K/AKT、HIF-1α | TGF-β1/Smad3、YAP/TAZ–FAK–ERK、En1、Prrx1、LRRC15 |
| 免疫特征 | γδT–FGF9、巨噬细胞 TNF(适度)、Treg–Jagged1、炎症及时消退 | 持续中性粒细胞/巨噬细胞浸润、IL-6/IL-13/TGF-β1 升高、慢性炎症 |
| 力学环境 | 创面中心低刚度、FAK/肌球蛋白 Ⅱ 活性低、Ⅰ/Ⅲ型胶原网状排列 | 高张力、基质硬化、胶原 Ⅰ 粗大且平行排列 |
| 结构结局 | 毛囊、皮脂腺、血管、神经与表皮—真皮交界重建 | 附属器永久缺失、交界变平、瘢痕挛缩 |
| 代表性干预 | 毛囊移植、DP-外泌体、Wnt 激活、YAP/FAK 抑制、En1/DPP4 抑制 | 抗 TGF-β、减张、肌成纤维细胞清除/重编程为脂肪细胞 |
| 主要证据来源 | Ito 2007、Gay 2013、Mascharak 2021、Jimenez 2016 | Rinkevich 2015、Driskell 2013、Yan 2015、Mascharak 2021 |
| 注:两侧并非互斥,同一信号(如 Wnt)在纤维化与再生中可具有情境依赖的双向作用;表中”代表性干预”仅列举机制方向,非临床推荐。 |
|---|
4.5 毛囊单位移植重塑成熟瘢痕:从相关到因果
前述人体研究 [100] 的重要性在于,它把”毛囊多的地方瘢痕轻”从相关性推进到干预性因果:把生长期毛囊放进已形成的瘢痕,瘢痕的胶原架构与细胞因子谱会被主动改写。其机制可能包括:毛囊周期伴随的周期性 ECM 重塑、毛囊分泌的抗纤维化因子、新生血管与神经带来的微环境重置,以及移植引入的上皮/间充质干细胞龛。这一思路与”瘢痕内缺乏可重塑单位”的假说互为印证,也为陈旧性瘢痕这一长期缺乏手段的临床难题提供了新方向。
5 调控网络:信号通路与生物力学
5.1 Wnt/β-catenin:再生主开关,也是情境依赖的双刃剑
Wnt/β-catenin 是 WIHN 与毛囊形态发生的充分必要条件:再上皮化后抑制 Wnt 完全阻断新生毛囊,表皮过表达 Wnt 配体则增加其数量 [68];Wnt 激活剂 KY19382(通过阻断 CXXC5–Dishevelled 相互作用)促进毛发再生与毛囊新生 [111];PI3K/AKT 通路对皮肤类器官中从头毛囊形成同样必需 [112]。但 Wnt 在成人创面中也被描述为促纤维化信号 [16],其差异在于激活的细胞类型、时相与强度:在肌成纤维细胞中删除 β-catenin 会阻断内源性毛囊新生,同时 Wnt 活跃状态又为 Hh 驱动的 DP 形成提供了”许可”背景 [16]。Wnt 还通过改变表皮细胞的力敏性发挥机械调节作用 [17,61]。
5.2 Shh/Gli、BMP、Notch:时序比强度更重要
Shh 主要由毛母质/上皮分泌,作用于真皮侧以驱动 DP 特化与毛囊下伸;乳头层成纤维细胞的 Hh 信号是创面毛囊新生的必要条件 [43],且需与真皮 β-catenin 协同 [16]。BMP 通常维持 HFSC 静息、构成”命运刹车”,Notch 参与毛基板与谱系选择;二者与 Wnt、Shh、TGF-β、Eda 构成的组合在不同时相产生不同输出,这正是”再生重演发育但不完全等同发育”的分子基础 [77,78,113]。代谢层面,PKM2 把糖代谢与 Wnt/β-catenin 连接起来促进毛发再生 [114],HIF-1α 则上调人 DPC 的 LEF1、Versican 等毛诱导基因 [35]。
5.3 炎症—PI3K/AKT—代谢轴
TNF 经 AKT(而非 Wnt)使 β-catenin 在 Lgr5+ 干细胞中累积 [82];IL-1α/IL-1β/IL-36α 构成从损伤识别到干细胞激活的快速通道 [80,83,87];共生菌诱导的低氧与谷氨酰胺代谢则把微生物信号转译为角质形成细胞的再生能力 [86]。这条轴的临床含义是:过度清创、广谱抗生素、长期抑制炎症等常规处理,理论上可能同时削弱再生信号 [48,86]。
5.4 TGF-β/Smad 与 EMT:纤维化的执行臂
TGF-β1/Smad3 驱动肌成纤维细胞分化、胶原沉积与 ORS 角质形成细胞 EMT,并在瘢痕疙瘩组织中与 FGFR2 剪接转换、p63 下调共存 [2,18]。针对该轴的策略包括直接抑制、阻断其上游机械激活,以及把肌成纤维细胞重编程为脂肪细胞 [44,115]。
5.5 网络整合
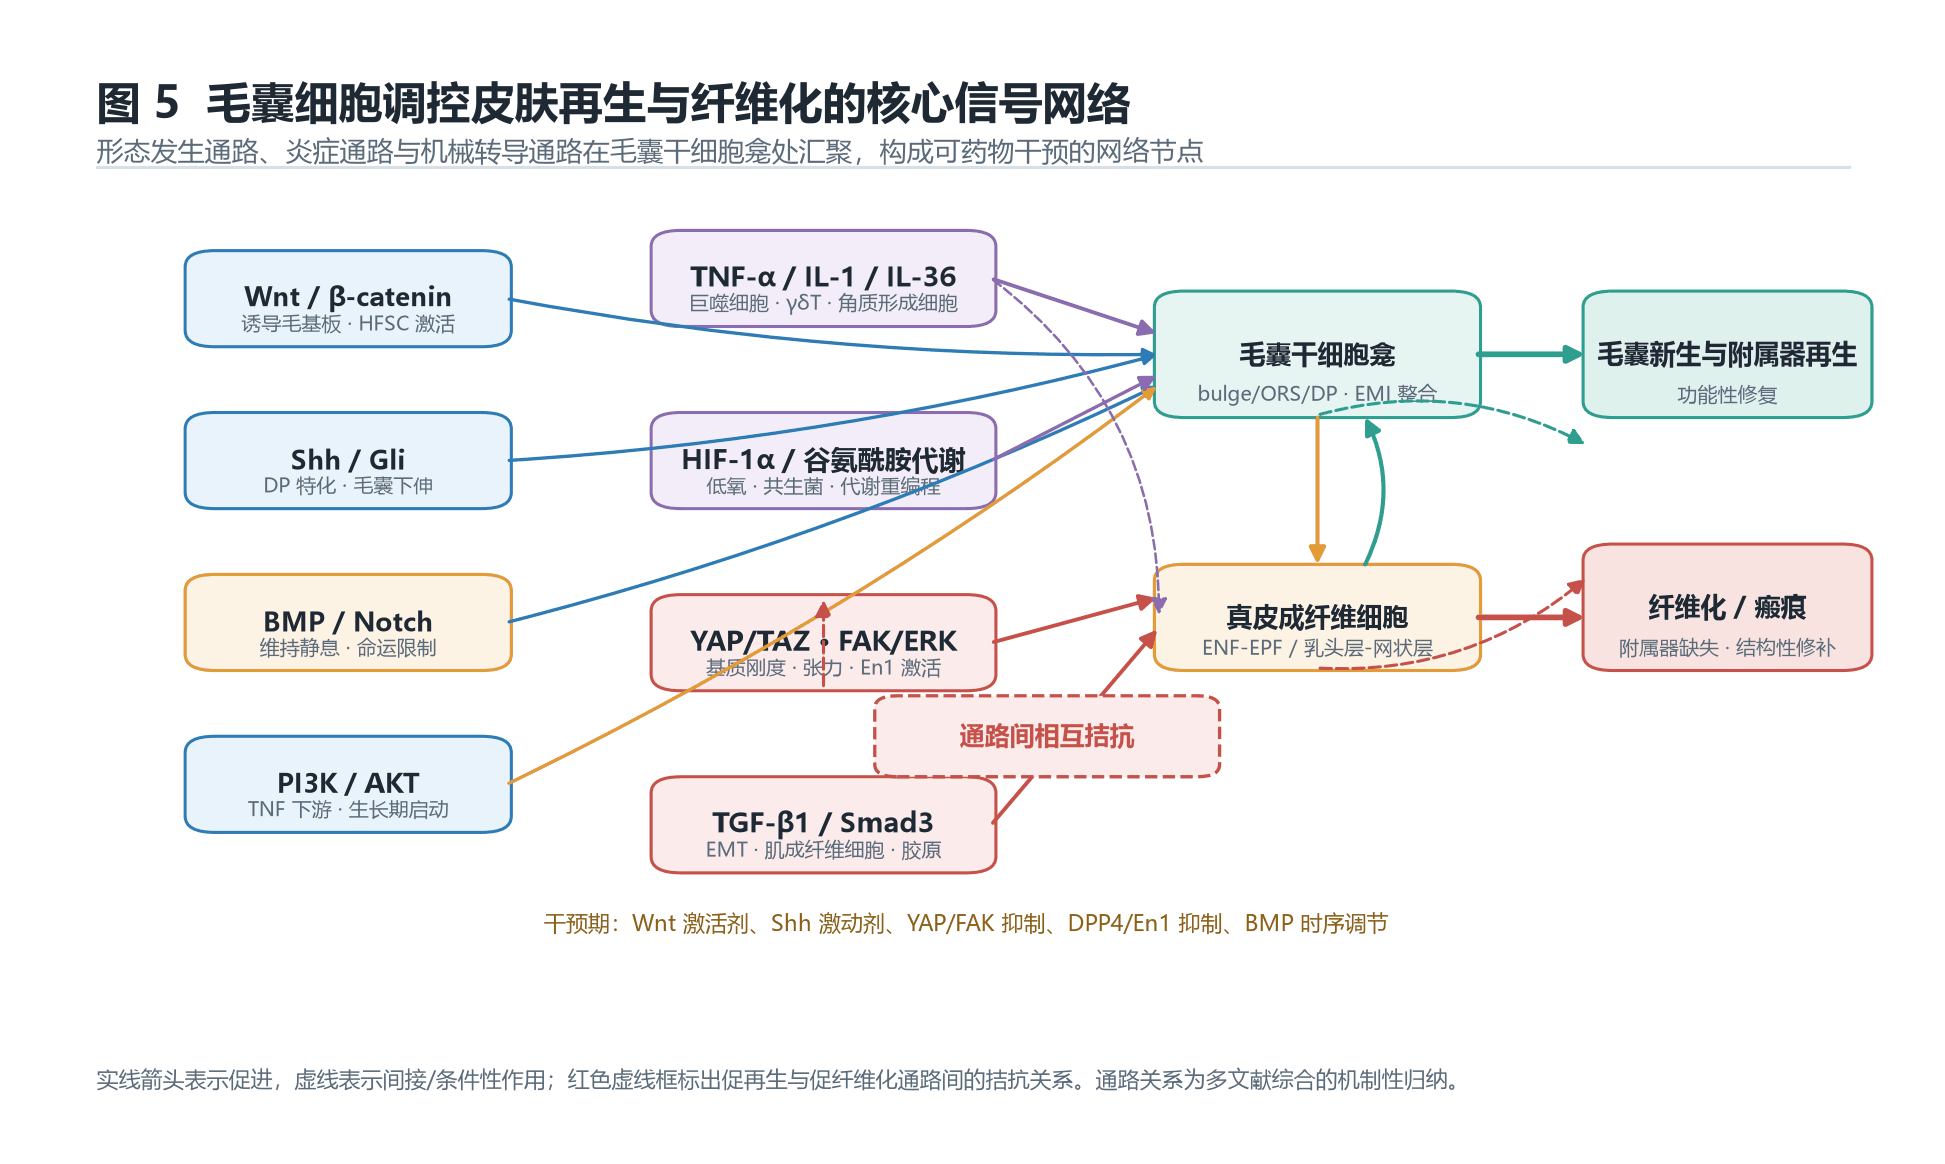
图 5 毛囊细胞调控皮肤再生与纤维化的核心信号网络。形态发生通路(Wnt、Shh、BMP、Notch、PI3K/AKT)、炎症与代谢通路(TNF/IL-1/IL-36、HIF-1α)及机械转导通路(YAP/TAZ–FAK–ERK、TGF-β1/Smad3)在毛囊干细胞龛与真皮成纤维细胞异质性状态处汇聚,分别输出附属器再生或纤维化。
6 转化研究与临床证据
6.1 自体毛囊单位/环钻移植:目前证据最扎实的路径
临床转化的起点是把毛囊作为”细胞与微环境的整体单元”移植。最具说服力的是一项自身对照随机对照试验:将含毛囊的头皮环钻移植物与无毛皮肤移植物分别移植到同一静脉性溃疡的两半,18 周时含毛囊组溃疡面积平均缩小 75.15%,对照仅 33.07%(P = 0.002),但样本量仅 12 例 [116]。后续研究显示,自体毛囊移植不仅恢复表皮各层与表皮连接,还重建血管、淋巴管、神经与汗腺结构,降低慢性炎症,并在移植区再次打孔时仍能正常愈合,提示效果具有自维持性 [46,117]。近期单中心研究与病例系列继续支持该疗法在难愈性下肢溃疡中的可行性与疼痛缓解作用 [118,119,120]。把生长期毛囊移植入成熟瘢痕则把适应证从”促愈合”扩展到”抗纤维化重塑”[100]。以毛囊细胞构建含色素皮肤替代物,为大面积创面与色素障碍提供了非侵入性细胞来源 [121,122]。
6.2 细胞与无细胞制品
ORS 来源自体表皮片已有近二十年临床经验 [57];按毛囊不同区段分离的上皮祖细胞显示出差异化的上皮化能力,其中毛球来源细胞效果最佳 [58]。毛囊间充质干细胞(含 ORS-MSC、DSCC)兼具多向分化、免疫调节与旁分泌活性,在动物模型中减轻增生性瘢痕 [101,123]。无细胞方向中,DPC 外泌体可促进成纤维细胞增殖迁移并增强其毛诱导能力,经 Wnt/β-catenin 加速再上皮化与毛囊再生,Wnt 抑制剂可逆转该效应 [65];DSCC 外泌体可对抗 DPC 衰老 [40];胎盘 MSC 外泌体通过抑制 En1 促进无瘢痕再生 [124]。三维 DPC 球体与微环境重编程则致力于解决”体外扩增丢失毛诱导性”这一产业化瓶颈 [34,125]。需要强调的是,外泌体类制品在批次一致性、效力表征、给药途径与监管归类上仍存在显著不确定性 [103,126]。
6.3 原位微环境重编程:不引入外源细胞的路线
该路线以”改写创面自身细胞命运”为目标,理论上最易临床落地。代表性策略包括:YAP/FAK 抑制阻断 En1 激活 [93,104];siEn1 纳米载体(成纤维细胞膜仿生脂质纳米粒)把促纤维化谱系逆转为再生表型 [127];DPP4/CD26 抑制或 DPP4+ 成纤维细胞靶向清除 [92,128];小分子鸡尾酒(Tideglusib + Tamibarotene)经 PI3K/AKT 把成纤维细胞重编程为 DP 样细胞,配合”人工毛囊播种”水凝胶微球同时抑制瘢痕并原位诱导毛囊 [64];PITX1 重编程表皮角质形成细胞使其获得口腔黏膜样快速再生表型 [129];视黄酸类与基质来源活性肽则分别用于调控细胞命运与改善移植物中的毛囊新生 [130,131]。生物材料层面,双层丝素/海藻酸钠支架递送 MSC [132]、脱细胞真皮基质水凝胶 [133]、核壳微针按时序调控免疫微环境 [134]、可编程人工皮肤实现抗瘢痕与多附属器再生 [135],共同构成”材料即微环境”的设计范式 [136,137]。
6.4 类器官、生物打印与工程化皮肤
人 iPSC 来源外胚层前体细胞构建毛囊类器官、皮肤类器官与”hair-on-chip”体系,使人类毛囊发生的研究摆脱对动物模型的完全依赖 [138,139][140,141]。递送技术的进展同样迅速:无基质冷冻微针可在 3 天内使类器官萌出毛发 [142];核壳冷冻微针与器官芯片来源的”毛囊幼苗微针”可控制毛发密度与方向,形成仿生毛囊单位 [143,144];3D 生物打印则尝试构建含 DP 球体与 nascent 毛囊样结构的皮肤等价物 [145,146]。这些体系共有的瓶颈是血管与神经整合、毛干穿出表皮、长期存活及致瘤性评估 [145,147]。
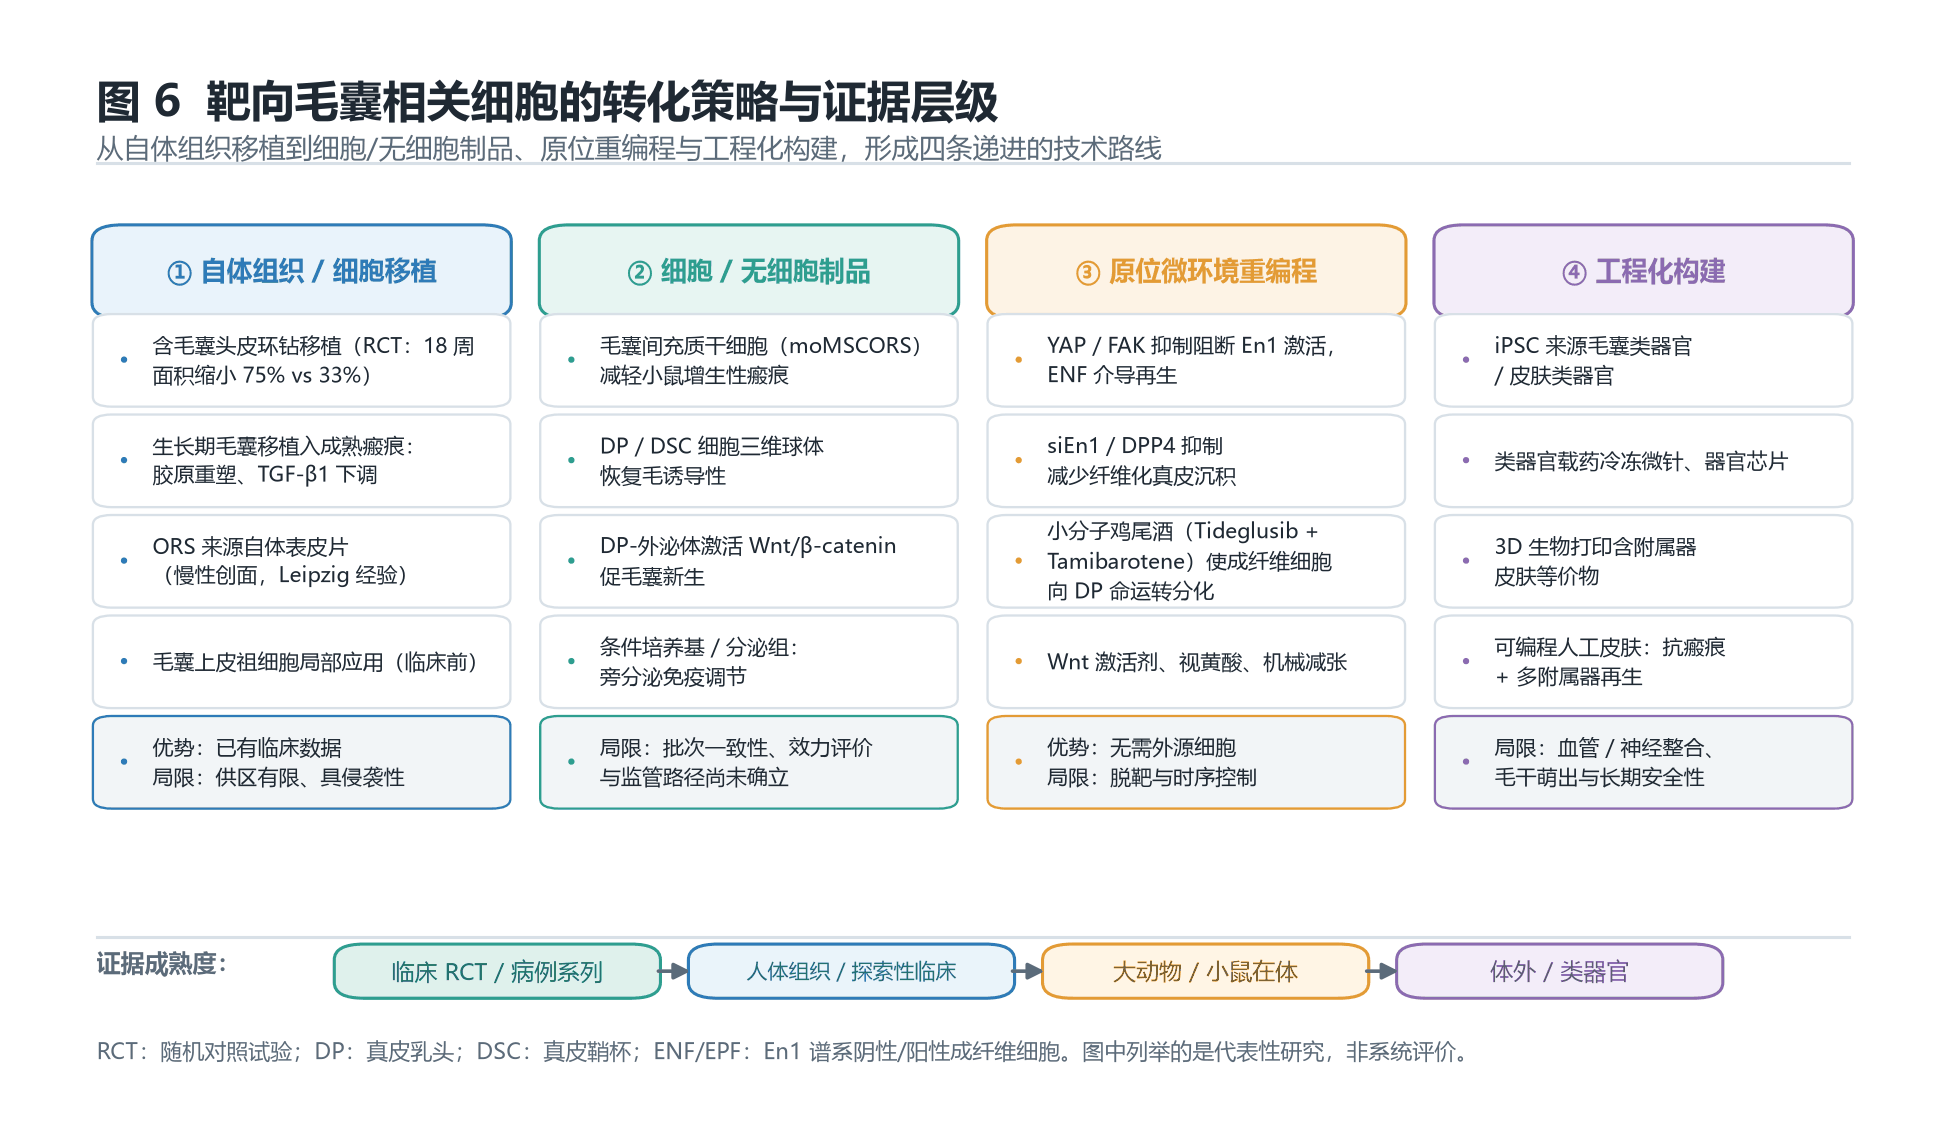
图 6 靶向毛囊相关细胞的转化策略与证据层级。四条递进路线:自体组织/细胞移植、细胞与无细胞制品、原位微环境重编程、工程化构建;底部按临床 RCT、人体组织、动物在体、体外/类器官标示证据成熟度。
表 3 代表性转化研究及其证据等级
| 策略 | 代表模型/人群 | 关键结果 | 证据等级 | 主要局限 |
|---|---|---|---|---|
| 含毛囊头皮环钻移植 | 静脉性溃疡 RCT,n=12 [116] | 18 周面积缩小 75.15% vs 33.07%(P=0.002) | 临床 RCT | 样本量小、单中心 |
| 自体毛囊移植 | 慢性不愈合创面 [46] | 表皮、血管、淋巴、神经、汗腺结构重建 | 人体组织 | 非随机、机制推断为主 |
| 生长期毛囊移植入成熟瘢痕 | 人体 pilot [100] | 胶原重塑,TGF-β1/IL-13/IL-6 长期下调 | 人体 pilot | 样本小、随访有限 |
| ORS 来源自体表皮片 | 慢性创面 [57] | 促进上皮化、实现创面闭合 | 临床经验 | 缺乏对照 |
| 毛囊区段上皮祖细胞 | 免疫缺陷小鼠全层创面 [58] | 毛球上皮细胞上皮化最强、瘢痕减少 | 动物在体 | 异种移植、免疫缺陷背景 |
| ORS-MSC(moMSCORS) | 同基因小鼠全层创面 [101] | 炎症下降、胶原减少、增生性瘢痕减轻 | 动物在体 | 单一细胞系 |
| DPC 外泌体 | 小鼠创面 + 裸鼠共移植 [65] | 经 Wnt/β-catenin 增强成纤维细胞毛诱导性 | 动物在体 | 制品标准化不足 |
| YAP/En1 轴阻断 | 转基因小鼠、大型动物 [93,104] | ENF 介导无瘢痕再生并恢复附属器 | 动物在体 | 脱靶、给药时序 |
| siEn1 纳米载体 | 小鼠 [127] | 逆转 EPF 促纤维化表型 | 动物在体 | 递送安全性 |
| 小分子鸡尾酒 + 水凝胶微球 | 小鼠 [64] | 成纤维细胞转 DP 命运,抗瘢痕并原位毛囊再生 | 动物在体 | 长期命运稳定性未知 |
| 可编程人工皮肤 | 动物模型 [135] | 抗瘢痕愈合伴多附属器再生 | 动物在体 | 制备复杂度 |
| 毛囊类器官 + 冷冻微针 | 小鼠/体外 [142,143] | 3 天内毛发萌出,形成仿生毛囊单位 | 动物在体 | 血管神经整合不足 |
| iPSC 毛囊类器官 | 体外 [138] | 重建上皮—间充质相互作用 | 体外/类器官 | 成熟度与致瘤性 |
| 注:证据等级为本文按研究设计所作的相对归类,非正式 GRADE 评价;同一格子内多篇文献以并列方式标示。 |
|---|
7 争议、局限与未来方向
7.1 WIHN 在人类是否存在
WIHN 的确证主要来自小鼠大面积全层切除模型,其发生依赖最小创面面积、创面中心低刚度、丰富的真皮 γδT 细胞与特定的微生物负荷 [69,79,105]。人真皮缺乏强大的常驻 γδT 细胞群,被提出为人类难以自发毛囊新生的关键种属差异 [79];皮肤共生菌与再生能力的关联在人创面中虽获初步支持 [86],但”人类 WIHN”仍缺乏像 Ito 2007 那样的严格谱系证据。激光焕肤后的人体皮肤出现毛囊新生相关转录程序 [87],以及生长期毛囊移植后瘢痕内出现结构性重塑 [100],提供了间接线索,但不应等同于自发器官新生。
7.2 “贡献”不等于”再生”
毛囊干细胞在再上皮化中的贡献多为暂时性,创面表皮的长期维持仍由毛囊间表皮干细胞承担 [13,14]。因此,以”上皮化速度”或”闭合率”为主要终点的研究,无法回答是否实现真正的皮肤再生。未来研究应把附属器数量与功能、表皮—真皮交界形态、胶原 Ⅰ/Ⅲ 比例与排列、血管神经密度、力学强度与长期随访纳入复合终点 [7,46]。
7.3 物种、部位、年龄与性别差异
小鼠与人在毛囊密度、真皮 γδT 细胞、愈合方式(收缩为主 vs 再上皮化为主)、dWAT 分布上差异显著;刺毛鼠、胎儿与口腔黏膜提供了”自然无瘢痕”的对照模型,但机制不可直接外推 [4,5,148]。年龄通过 HFSC 龛退变、Wnt 信号减弱与免疫微环境改变削弱 WIHN [70,83,91];解剖部位则通过成纤维细胞谱系组成影响瘢痕倾向 [42,97]。这些变量在现有文献中常被忽略,也是转化率偏低的原因之一。
7.4 安全性、标准化与监管
Wnt/Shh 的持久激活、YAP 抑制与细胞重编程均涉及增殖与肿瘤风险;毛囊干细胞本身在化学诱导皮肤肿瘤中被证明是长寿命的起始细胞群 [149]。细胞与外泌体制品还面临效力测定、批次一致性、免疫原性与监管路径未统一的问题 [126,147]。任何促再生策略都必须在”再生收益—致瘤/纤维化风险”之间取得可量化平衡。
7.5 未来方向
以细胞状态而非细胞类型为靶点:借助单细胞与空间多组学定义”促再生型成纤维细胞状态”,并寻找可药控的开关 [74,110,150]。
时序化联合干预:早期允许必要炎症、中期提供 Wnt/Shh 诱导并控制张力、后期促进肌成纤维细胞清除,而非全程单点抑制 [134,151]。
把附属器再生设为硬终点:在临床前与临床研究中标准化毛囊/皮脂腺计数、毛发周期、胶原架构与功能学指标 [46,146]。
人源化模型与机制验证:iPSC 类器官、hair-on-chip、免疫相容微生理系统可减少种属外推误差 [138,140,152]。
以毛囊单位重塑陈旧性瘢痕:把适应证从急性创面扩展到已成熟纤维化组织 [100,120]。
8 小结
近二十年的研究把毛囊从”被动的皮肤附属器”重新定位为皮肤再生的组织者与瘢痕命运的裁决者。毛囊上皮干细胞与外根鞘细胞提供快速再上皮化的细胞来源;真皮乳头、真皮鞘与乳头层成纤维细胞通过 Wnt/β-catenin 与 Shh 重建上皮—间充质相互作用,决定能否形成新的附属器;免疫细胞、共生微生物、血管神经与代谢状态构成允许或抑制再生的微环境;基质力学经 YAP/TAZ–FAK–En1 把物理张力转译为成纤维细胞谱系选择,最终把创面推向”功能性再生”或”无附属器的纤维化瘢痕”。临床上,自体毛囊单位移植已在随机对照试验与人体组织研究中显示促愈合与抗纤维化效应,而细胞/外泌体制品、原位重编程与类器官工程化构建正在把这一经验性疗法转化为可设计、可标准化、可机制验证的再生医学方案。该领域下一步的关键,不在于再发现一条新的促增殖通路,而在于在正确的细胞、正确的时相、正确的力学与免疫背景下,把”闭合创面”真正升级为”重建器官”。
参考文献
[1] Mony MP, et al. An Updated Review of Hypertrophic Scarring[J]. Cells, 2023. DOI: 10.3390/cells12050678. PMID: 36899815.
[2] Čoma M, et al. Molecular Changes Underlying Hypertrophic Scarring Following Burns Involve Specific Deregulations at All Wound Healing Stages (Inflammation, Proliferation and Maturation)[J]. Int J Mol Sci, 2021. DOI: 10.3390/ijms22020897. PMID: 33477421.
[3] Lin X, et al. Scarring Skin: Mechanisms and Therapies[J]. Int J Mol Sci, 2024. DOI: 10.3390/ijms25031458. PMID: 38338767.
[4] Pereira D, et al. A Scarless Healing Tale: Comparing Homeostasis and Wound Healing of Oral Mucosa With Skin and Oesophagus[J]. Front Cell Dev Biol, 2021. DOI: 10.3389/fcell.2021.682143. PMID: 34381771.
[5] Brewer CM, et al. Adaptations in Hippo-Yap signaling and myofibroblast fate underlie scar-free ear appendage wound healing in spiny mice[J]. Dev Cell, 2021. DOI: 10.1016/j.devcel.2021.09.008. PMID: 34610329.
[6] Singer AJ, et al. Healing Mechanisms in Cutaneous Wounds: Tipping the Balance[J]. Tissue Eng Part B Rev, 2022. DOI: 10.1089/ten.teb.2021.0114. PMID: 34915757.
[7] Zhou S, et al. New insights into balancing wound healing and scarless skin repair[J]. J Tissue Eng, 2023. DOI: 10.1177/20417314231185848. PMID: 37529248.
[8] Parry D, et al. Is the future scarless? – Fibroblasts as targets for scarless wound healing: a narrative review[J]. Scars Burn Heal, 2022. DOI: 10.1177/20595131221095348. PMID: 36082315.
[9] Lin X, et al. Morphogenesis, Growth Cycle and Molecular Regulation of Hair Follicles[J]. Front Cell Dev Biol, 2022. DOI: 10.3389/fcell.2022.899095. PMID: 35646909.
[10] Kinde MZ, et al. Molecular Mechanisms of Hair Follicle Development[J]. ScientificWorldJournal, 2024. DOI: 10.1155/tswj/5259055. PMID: 39628556.
[11] de Groot SC, et al. Back to the Future: From Appendage Development Toward Future Human Hair Follicle Neogenesis[J]. Front Cell Dev Biol, 2021. DOI: 10.3389/fcell.2021.661787. PMID: 33912569.
[12] Zhou Z, et al. Research progress of hair follicle and related stem cells in scar-free wound healing[J]. Zhongguo Xiu Fu Chong Jian Wai Ke Za Zhi, 2021. DOI: 10.7507/1002-1892.202005086. PMID: 33624481.
[13] Plikus MV, et al. Epithelial stem cells and implications for wound repair[J]. Semin Cell Dev Biol, 2012. DOI: 10.1016/j.semcdb.2012.10.001. PMID: 23085626.
[14] Joost S, et al. Single-Cell Transcriptomics of Traced Epidermal and Hair Follicle Stem Cells Reveals Rapid Adaptations during Wound Healing[J]. Cell Rep, 2018. DOI: 10.1016/j.celrep.2018.09.059. PMID: 30332640.
[15] Wang J, et al. Cellular Heterogeneity and Plasticity of Skin Epithelial Cells in Wound Healing and Tumorigenesis[J]. Stem Cell Rev Rep, 2022. DOI: 10.1007/s12015-021-10295-8. PMID: 35143021.
[16] Lim CH, et al. Dermal beta-Catenin Is Required for Hedgehog-Driven Hair Follicle Neogenesis[J]. J Invest Dermatol, 2024. DOI: 10.1016/j.jid.2024.04.025. PMID: 38810955.
[17] Oak ASW, et al. Wnt signaling modulates mechanotransduction in the epidermis to drive hair follicle regeneration[J]. Sci Adv, 2025. DOI: 10.1126/sciadv.adq0638. PMID: 39970220.
[18] Yan L, et al. Epithelial-mesenchymal transition in keloid tissues and TGF-beta1-induced hair follicle outer root sheath keratinocytes[J]. Wound Repair Regen, 2015. DOI: 10.1111/wrr.12320. PMID: 26036684.
[19] Joulai Veijouye S, et al. Bulge Region as a Putative Hair Follicle Stem Cells Niche: A Brief Review[J]. Iran J Public Health, 2017. PMID: 29026781.
[20] Wu Z, et al. Dermal white adipose tissue: A new modulator in wound healing and regeneration[J]. Regen Ther, 2024. DOI: 10.1016/j.reth.2024.11.015. PMID: 39717110.
[21] Wang X, et al. Regulation of signaling pathways in hair follicle stem cells[J]. Burns Trauma, 2022. DOI: 10.1093/burnst/tkac022. PMID: 35795256.
[22] Jaks V, et al. Lgr5 marks cycling, yet long-lived, hair follicle stem cells[J]. Nat Genet, 2008. DOI: 10.1038/ng.239. PMID: 18849992.
[23] Snippert HJ, et al. Lgr6 marks stem cells in the hair follicle that generate all cell lineages of the skin[J]. Science, 2010. DOI: 10.1126/science.1184733. PMID: 20223988.
[24] Polkoff KM, et al. LGR5 is a conserved marker of hair follicle stem cells in multiple species and is present early and throughout follicle morphogenesis[J]. Sci Rep, 2022. DOI: 10.1038/s41598-022-13056-w. PMID: 35650234.
[25] Ghotbi E, et al. Hair follicle epithelial stem cells contribute to interfollicular epidermis during homeostasis[J]. JCI Insight, 2025. DOI: 10.1172/jci.insight.193496. PMID: 40627455.
[26] Ghotbi E, et al. Transcription factor KROX20 marks epithelial stem cells for hair follicle formation[J]. J Clin Invest, 2024. DOI: 10.1172/jci180160. PMID: 39361422.
[27] Koren E, et al. Thy1 marks a distinct population of slow-cycling stem cells in the mouse epidermis[J]. Nat Commun, 2022. DOI: 10.1038/s41467-022-31629-1. PMID: 35941116.
[28] Han J, et al. Distinct bulge stem cell populations maintain the pilosebaceous unit in a beta-catenin-dependent manner[J]. iScience, 2022. DOI: 10.1016/j.isci.2022.105805. PMID: 36619975.
[29] Veniaminova NA, et al. Distinct mechanisms for sebaceous gland self-renewal and regeneration provide durability in response to injury[J]. Cell Rep, 2023. DOI: 10.1016/j.celrep.2023.113121. PMID: 37715952.
[30] Schepeler T, et al. Heterogeneity and plasticity of epidermal stem cells[J]. Development, 2014. DOI: 10.1242/dev.104588. PMID: 24961797.
[31] Burclaff J, et al. Plasticity of differentiated cells in wound repair and tumorigenesis, part II: skin and intestine[J]. Dis Model Mech, 2018. DOI: 10.1242/dmm.035071. PMID: 30171151.
[32] Zhang HL, et al. Dermal Papilla Cells: From Basic Research to Translational Applications[J]. Biology (Basel), 2024. DOI: 10.3390/biology13100842. PMID: 39452150.
[33] Hamida OB, et al. Hair Regeneration Methods Using Cells Derived from Human Hair Follicles and Challenges to Overcome[J]. Cells, 2024. DOI: 10.3390/cells14010007. PMID: 39791708.
[34] Liu Z, et al. Microenvironmental reprogramming of human dermal papilla cells for hair follicle tissue engineering[J]. Acta Biomater, 2022. DOI: 10.1016/j.actbio.2022.11.004. PMID: 36347448.
[35] Seo J, et al. Hypoxia inducible factor-1alpha promotes trichogenic gene expression in human dermal papilla cells[J]. Sci Rep, 2023. DOI: 10.1038/s41598-023-28837-0. PMID: 36707659.
[36] Su Y, et al. Pre-aggregation of scalp progenitor dermal and epidermal stem cells activates the WNT pathway and promotes hair follicle formation in in vitro and in vivo systems[J]. Stem Cell Res Ther, 2019. DOI: 10.1186/s13287-019-1504-6. PMID: 31856904.
[37] Wang YG, et al. Genetic lineage tracing in skin reveals predominant expression of HEY2 in dermal papilla during telogen and that HEY2+ cells contribute to the regeneration of dermal cells during wound healing[J]. Exp Dermatol, 2023. DOI: 10.1111/exd.14917. PMID: 37649203.
[38] Li Y, et al. A review of studies on hair follicle dermal sheath cells[J]. Sheng Wu Yi Xue Gong Cheng Xue Za Zhi, 2007. PMID: 17713291.
[39] Zhu B, et al. Exploring the role of dermal sheath cells in wound healing and fibrosis[J]. Wound Repair Regen, 2024. DOI: 10.1111/wrr.13206. PMID: 39129718.
[40] Liu F, et al. Combatting ageing in dermal papilla cells and promoting hair follicle regeneration using exosomes from human hair follicle dermal sheath cup cells[J]. Exp Dermatol, 2023. DOI: 10.1111/exd.14948. PMID: 37950506.
[41] Driskell RR, et al. Distinct fibroblast lineages determine dermal architecture in skin development and repair[J]. Nature, 2013. DOI: 10.1038/nature12783. PMID: 24336287.
[42] Woodley DT, et al. Distinct Fibroblasts in the Papillary and Reticular Dermis: Implications for Wound Healing[J]. Dermatol Clin, 2017. DOI: 10.1016/j.det.2016.07.004. PMID: 27890241.
[43] Frech S, et al. Hedgehog Signaling in Papillary Fibroblasts Is Essential for Hair Follicle Regeneration during Wound Healing[J]. J Invest Dermatol, 2022. DOI: 10.1016/j.jid.2021.11.026. PMID: 34922948.
[44] Teng YY, et al. Novel prospects for scarless wound healing: The roles of myofibroblasts and adipocytes[J]. J Cell Mol Med, 2022. DOI: 10.1111/jcmm.17535. PMID: 36106529.
[45] Johnston AP, et al. Sox2-mediated regulation of adult neural crest precursors and skin repair[J]. Stem Cell Reports, 2013. DOI: 10.1016/j.stemcr.2013.04.004. PMID: 24052940.
[46] Saha D, et al. Hair Follicle Grafting Therapy Promotes Re-Emergence of Critical Skin Components in Chronic Nonhealing Wounds[J]. JID Innov, 2021. DOI: 10.1016/j.xjidi.2021.100041. PMID: 34909736.
[47] Morgun EI, et al. Epidermal Stem Cells in Hair Follicle Cycling and Skin Regeneration: A View From the Perspective of Inflammation[J]. Front Cell Dev Biol, 2020. DOI: 10.3389/fcell.2020.581697. PMID: 33240882.
[48] Ma YM, et al. Beyond scarring: immune-epithelial crosstalk in wound-induced hair follicle neogenesis[J]. Front Immunol, 2026. DOI: 10.3389/fimmu.2026.1872547. PMID: 42529170.
[49] Dai C, et al. Immune Cells in Hair Follicle Physiology and Pathology[J]. Clin Cosmet Investig Dermatol, 2026. DOI: 10.2147/ccid.s594805. PMID: 42927355.
[50] Joost S, et al. Single-Cell Transcriptomics Reveals that Differentiation and Spatial Signatures Shape Epidermal and Hair Follicle Heterogeneity[J]. Cell Syst, 2016. DOI: 10.1016/j.cels.2016.08.010. PMID: 27641957.
[51] Zheng Q, et al. Understanding Mammalian Hair Follicle Ecosystems by Single-Cell RNA Sequencing[J]. Animals (Basel), 2022. DOI: 10.3390/ani12182409. PMID: 36139270.
[52] Ianoși ES, et al. RNA Coding and Transcriptional Regulation in Skin Repair: Insights from Single-Cell Profiling and Implications for Organoid-Based Regenerative Strategies[J]. Life (Basel), 2026. DOI: 10.3390/life16050784. PMID: 42195340.
[53] Díaz-García D, et al. A Beginner’s Introduction to Skin Stem Cells and Wound Healing[J]. Int J Mol Sci, 2021. DOI: 10.3390/ijms222011030. PMID: 34681688.
[54] Stevenson S, et al. Differing responses of human follicular and nonfollicular scalp cells in an in vitro wound healing assay: effects of estrogen on vascular endothelial growth factor secretion[J]. Wound Repair Regen, 2008. DOI: 10.1111/j.1524-475x.2008.00365.x. PMID: 18318810.
[55] Lee MH, et al. Conditioned media obtained from human outer root sheath follicular keratinocyte culture activates signalling pathways that contribute to maintenance of hair-inducing capacity and increases trichogenicity of cultured dermal cells[J]. Exp Dermatol, 2012. DOI: 10.1111/j.1600-0625.2012.01570.x. PMID: 22882516.
[56] Zhou L, et al. Decorin promotes proliferation and migration of ORS keratinocytes and maintains hair anagen in mice[J]. Exp Dermatol, 2018. DOI: 10.1111/exd.13770. PMID: 30099770.
[57] Renner R, et al. Transplantation of chronic wounds with epidermal sheets derived from autologous hair follicles–the Leipzig experience[J]. Int Wound J, 2009. DOI: 10.1111/j.1742-481x.2009.00609.x. PMID: 19538195.
[58] Zhang B, et al. Topical Application of Cultured Human Hair Follicle-Derived Epithelial Progenitor Cells Enhances Wound Healing and Epithelialization[J]. Plast Reconstr Surg, 2026. DOI: 10.1097/prs.0000000000013458. PMID: 42747264.
[59] Xue Y, et al. Mechanical tension mobilizes Lgr6+ epidermal stem cells to drive skin growth[J]. Sci Adv, 2022. DOI: 10.1126/sciadv.abl8698. PMID: 35476447.
[60] Zhang Y, et al. Hair follicle stem cells promote epidermal regeneration under expanded condition[J]. Front Physiol, 2024. DOI: 10.3389/fphys.2024.1306011. PMID: 38455843.
[61] Bai R, et al. The Roles of WNT Signaling Pathways in Skin Development and Mechanical-Stretch-Induced Skin Regeneration[J]. Biomolecules, 2023. DOI: 10.3390/biom13121702. PMID: 38136575.
[62] Wu W, et al. Mechanical stimuli-induced CCL2 restores adult mouse cells to regenerate hair follicles[J]. Mol Ther Nucleic Acids, 2023. DOI: 10.1016/j.omtn.2023.03.002. PMID: 37020681.
[63] Kwack MH, et al. MLPH-mediated activation of dermal papilla IGF-1 signaling drives human hair shaft elongation and anagen induction[J]. Biomed Pharmacother, 2026. DOI: 10.1016/j.biopha.2026.119114. PMID: 41687550.
[64] Ji S, et al. Cocktail Cell-Reprogrammed Hydrogel Microspheres Achieving Scarless Hair Follicle Regeneration[J]. Adv Sci (Weinh), 2024. DOI: 10.1002/advs.202306305. PMID: 38225741.
[65] Shang Y, et al. Exosomes derived from mouse vibrissa dermal papilla cells promote hair follicle regeneration during wound healing by activating Wnt/beta-catenin signaling pathway[J]. J Nanobiotechnology, 2024. DOI: 10.1186/s12951-024-02689-w. PMID: 39030543.
[66] Liang W, et al. Autografted hair follicles with dermal papilla removed promote wound repair and regeneration in Bama mini-pigs[J]. J Mol Histol, 2025. DOI: 10.1007/s10735-025-10420-8. PMID: 40338340.
[67] Zhou H, et al. Role of the Wnt/beta-Catenin Signaling Pathway in Mediating Outer Root Sheath Stem Cells to Promote Hair Follicle Regeneration and Skin Wound Healing in Mice[J]. Cells, 2026. DOI: 10.3390/cells15111038. PMID: 42274630.
[68] Ito M, et al. Wnt-dependent de novo hair follicle regeneration in adult mouse skin after wounding[J]. Nature, 2007. DOI: 10.1038/nature05766. PMID: 17507982.
[69] Wang X, et al. Principles and mechanisms of regeneration in the mouse model for wound-induced hair follicle neogenesis[J]. Regeneration (Oxf), 2015. DOI: 10.1002/reg2.38. PMID: 26504521.
[70] Bhoopalam M, et al. Wound Induced Hair Neogenesis – A Novel Paradigm for Studying Regeneration and Aging[J]. Front Cell Dev Biol, 2020. DOI: 10.3389/fcell.2020.582346. PMID: 33178696.
[71] Oak ASW, et al. Wound-Induced Hair Neogenesis: A Portal to the Development of New Therapies for Hair Loss and Wound Regeneration[J]. Cold Spring Harb Perspect Biol, 2023. DOI: 10.1101/cshperspect.a041239. PMID: 36123030.
[72] Lim C, et al. Wound-Induced Hair Follicle Neogenesis as a Promising Approach for Hair Regeneration[J]. Mol Cells, 2023. DOI: 10.14348/molcells.2023.0071. PMID: 37650216.
[73] Helm M, et al. Cell Population Dynamics in Wound-Induced Hair Follicle Neogenesis Model[J]. Life (Basel), 2022. DOI: 10.3390/life12071058. PMID: 35888146.
[74] Shang M, et al. Single-Cell Analysis of Late-Stage Wound-Induced Hair Follicle Neogenesis Reveals Keratinocyte Heterogeneity and Enrichment of Infundibular Basal Keratinocytes[J]. Exp Dermatol, 2026. DOI: 10.1111/exd.70300. PMID: 42316874.
[75] Lee SH, et al. Molecular Signaling Pathways in Wound-Induced Hair-Follicle Neogenesis[J]. Cells, 2025. DOI: 10.3390/cells14060440. PMID: 40136689.
[76] Shang M, et al. From Wound to Hair Follicle: Unravelling the Mechanisms and Molecular Networks in Wound-Induced Hair Follicle Neogenesis[J]. Wound Repair Regen, 2025. DOI: 10.1111/wrr.70093. PMID: 41001723.
[77] Pincha N, et al. Parallels in signaling between development and regeneration in ectodermal organs[J]. Curr Top Dev Biol, 2022. DOI: 10.1016/bs.ctdb.2022.02.006. PMID: 35606061.
[78] Frech S, et al. Modulating embryonic signaling pathways paves the way for regeneration in wound healing[J]. Front Physiol, 2024. DOI: 10.3389/fphys.2024.1367425. PMID: 38434140.
[79] Gay D, et al. Fgf9 from dermal gammadelta T cells induces hair follicle neogenesis after wounding[J]. Nat Med, 2013. DOI: 10.1038/nm.3181. PMID: 23727932.
[80] Lee P, et al. Stimulation of hair follicle stem cell proliferation through an IL-1 dependent activation of gammadeltaT-cells[J]. Elife, 2017. DOI: 10.7554/elife.28875. PMID: 29199946.
[81] Li X, et al. TLR9 activation in large wound induces tissue repair and hair follicle regeneration via γδT cells[J]. Cell Death Dis, 2024. DOI: 10.1038/s41419-024-06994-y. PMID: 39153998.
[82] Wang X, et al. Macrophages induce AKT/beta-catenin-dependent Lgr5+ stem cell activation and hair follicle regeneration through TNF[J]. Nat Commun, 2017. DOI: 10.1038/ncomms14091. PMID: 28345588.
[83] Yang G, et al. Injury-induced interleukin-1 alpha promotes Lgr5 hair follicle stem cells de novo regeneration and proliferation via regulating regenerative microenvironment in mice[J]. Inflamm Regen, 2023. DOI: 10.1186/s41232-023-00265-7. PMID: 36803580.
[84] Luan J, et al. CD80 on skin stem cells promotes local expansion of regulatory T cells upon injury to orchestrate repair within an inflammatory environment[J]. Immunity, 2024. DOI: 10.1016/j.immuni.2024.04.003. PMID: 38677291.
[85] Knoedler S, et al. Regulatory T cells in skin regeneration and wound healing[J]. Mil Med Res, 2023. DOI: 10.1186/s40779-023-00484-6. PMID: 37867188.
[86] Wang G, et al. Commensal microbiome promotes hair follicle regeneration by inducing keratinocyte HIF-1alpha signaling and glutamine metabolism[J]. Sci Adv, 2023. DOI: 10.1126/sciadv.abo7555. PMID: 36598999.
[87] Kirby CS, et al. RNase L represses hair follicle regeneration through altered innate immune signaling[J]. J Clin Invest, 2025. DOI: 10.1172/jci172595. PMID: 39903537.
[88] Stewart DC, et al. TYPE III COLLAGEN REGULATES MATRIX ARCHITECTURE AND MECHANOSENSING DURING WOUND HEALING[J]. J Invest Dermatol, 2024. DOI: 10.1016/j.jid.2024.08.013. PMID: 39236902.
[89] Ryu YC, et al. Wnt/beta-catenin signaling activator restores hair regeneration suppressed by diabetes mellitus[J]. BMB Rep, 2022. PMID: 36016500.
[90] Wu YT, et al. Peptide Cy RL-QN15 accelerates hair regeneration in diabetic mice by binding to the Frizzled-7 receptor[J]. Zool Res, 2024. DOI: 10.24272/j.issn.2095-8137.2024.134. PMID: 39479995.
[91] Xu S, et al. Aging of hair follicle stem cells and their niche: mechanisms and regenerative therapeutic strategies[J]. Cell Commun Signal, 2026. DOI: 10.1186/s12964-026-03086-6. PMID: 42723052.
[92] Rinkevich Y, et al. Skin fibrosis. Identification and isolation of a dermal lineage with intrinsic fibrogenic potential[J]. Science, 2015. DOI: 10.1126/science.aaa2151. PMID: 25883361.
[93] Mascharak S, et al. Preventing Engrailed-1 activation in fibroblasts yields wound regeneration without scarring[J]. Science, 2021. DOI: 10.1126/science.aba2374. PMID: 33888614.
[94] Jiang D, et al. Converting fibroblastic fates leads to wound healing without scar[J]. Signal Transduct Target Ther, 2021. DOI: 10.1038/s41392-021-00738-6. PMID: 34471094.
[95] Jiang D, et al. Two succeeding fibroblastic lineages drive dermal development and the transition from regeneration to scarring[J]. Nat Cell Biol, 2018. DOI: 10.1038/s41556-018-0073-8. PMID: 29593327.
[96] Niti A, et al. Fibroblast Lineage Switching as the Developmental Origin of Scarring and Target for Regenerative Healing[J]. Biology (Basel), 2026. DOI: 10.3390/biology15050409. PMID: 41823836.
[97] Leavitt T, et al. Prrx1 Fibroblasts Represent a Pro-fibrotic Lineage in the Mouse Ventral Dermis[J]. Cell Rep, 2020. DOI: 10.1016/j.celrep.2020.108356. PMID: 33176144.
[98] Hamad RS, et al. LRRC15+ Myofibroblasts as a Stromal State Linking Repair, Fibrosis, and Scarring[J]. Wound Repair Regen, 2026. DOI: 10.1111/wrr.70206. PMID: 42684020.
[99] Knoedler S, et al. Fibroblasts – the cellular choreographers of wound healing[J]. Front Immunol, 2023. DOI: 10.3389/fimmu.2023.1233800. PMID: 37646029.
[100] Plotczyk M, et al. Anagen hair follicles transplanted into mature human scars remodel fibrotic tissue[J]. NPJ Regen Med, 2023. DOI: 10.1038/s41536-022-00270-3. PMID: 36609660.
[101] Li H, et al. Mesenchymal Stem Cells From Mouse Hair Follicles Reduce Hypertrophic Scarring in a Murine Wound Healing Model[J]. Stem Cell Rev Rep, 2022. DOI: 10.1007/s12015-021-10288-7. PMID: 35080748.
[102] Ding JY, et al. Mesenchymal stem cell-derived extracellular vesicles in skin wound healing: roles, opportunities and challenges[J]. Mil Med Res, 2023. DOI: 10.1186/s40779-023-00472-w. PMID: 37587531.
[103] Zare S, et al. Exploring the dermatological applications of human mesenchymal stem cell secretome: a comprehensive review[J]. Stem Cell Res Ther, 2025. DOI: 10.1186/s13287-025-04311-8. PMID: 40221781.
[104] Chen K, et al. Disrupting biological sensors of force promotes tissue regeneration in large organisms[J]. Nat Commun, 2021. DOI: 10.1038/s41467-021-25410-z. PMID: 34489407.
[105] Harn HI, et al. Topological Distribution of Wound Stiffness Modulates Wound-Induced Hair Follicle Neogenesis[J]. Pharmaceutics, 2022. DOI: 10.3390/pharmaceutics14091926. PMID: 36145674.
[106] Rognoni E, et al. The Roles of YAP/TAZ and the Hippo Pathway in Healthy and Diseased Skin[J]. Cells, 2019. DOI: 10.3390/cells8050411. PMID: 31058846.
[107] Chu CQ, et al. Fibroblast Yap/Taz Signaling in Extracellular Matrix Homeostasis and Tissue Fibrosis[J]. J Clin Med, 2024. DOI: 10.3390/jcm13123358. PMID: 38929890.
[108] Pankratova MD, et al. YAP/TAZ Signalling Controls Epidermal Keratinocyte Fate[J]. Int J Mol Sci, 2024. DOI: 10.3390/ijms252312903. PMID: 39684613.
[109] Yin J, et al. Mechanotransduction in skin wound healing and scar formation: Potential therapeutic targets for controlling hypertrophic scarring[J]. Front Immunol, 2022. DOI: 10.3389/fimmu.2022.1028410. PMID: 36325354.
[110] Tang Y, et al. Hmmr+ Fibroblasts Facilitate Hair Regeneration by Biomechanical Sensing of Extracellular Matrix Viscoelasticity[J]. Research (Wash D C), 2026. DOI: 10.34133/research.1430. PMID: 42741478.
[111] Ryu YC, et al. KY19382, a novel activator of Wnt/beta-catenin signalling, promotes hair regrowth and hair follicle neogenesis[J]. Br J Pharmacol, 2021. DOI: 10.1111/bph.15438. PMID: 33751552.
[112] Chen Y, et al. PI3K/Akt signaling pathway is essential for de novo hair follicle regeneration[J]. Stem Cell Res Ther, 2020. DOI: 10.1186/s13287-020-01650-6. PMID: 32245516.
[113] Bellani D, et al. Pathophysiological mechanisms of hair follicle regeneration and potential therapeutic strategies[J]. Stem Cell Res Ther, 2025. DOI: 10.1186/s13287-025-04420-4. PMID: 40518544.
[114] Ryu YC, et al. Pyruvate Kinase M2 Promotes Hair Regeneration by Connecting Metabolic and Wnt/β-Catenin Signaling[J]. Pharmaceutics, 2022. DOI: 10.3390/pharmaceutics14122774. PMID: 36559274.
[115] Lin H, et al. Direct fibroblast reprogramming: an emerging strategy for treating organic fibrosis[J]. J Transl Med, 2025. DOI: 10.1186/s12967-024-06060-3. PMID: 40016790.
[116] Martínez ML, et al. Hair follicle-containing punch grafts accelerate chronic ulcer healing: A randomized controlled trial[J]. J Am Acad Dermatol, 2016. DOI: 10.1016/j.jaad.2016.02.1161. PMID: 27745629.
[117] Martínez Martínez ML, et al. Hair-follicle Transplant Into Chronic Ulcers: A New Graft Concept[J]. Actas Dermosifiliogr, 2017. DOI: 10.1016/j.ad.2017.02.013. PMID: 28438262.
[118] Jansen TM, et al. Hair follicle punch grafts in hard-to-heal wounds: A monocenter study and patient survey[J]. Health Sci Rep, 2024. DOI: 10.1002/hsr2.2319. PMID: 39144406.
[119] Neuenschwander J, et al. Effectiveness of Punch Grafting in Promoting Healing and Reducing Pain in Hard-to-Heal Leg Ulcers[J]. Wound Repair Regen, 2026. DOI: 10.1111/wrr.70126. PMID: 41531201.
[120] Jimenez F, et al. From Hair to Healing: Follicular Unit Transplantation for Chronic Ulcer Management-A Case Series[J]. Int Wound J, 2026. DOI: 10.1111/iwj.70973. PMID: 42274200.
[121] Schneider M, et al. Generation of Pigmented Skin Grafts from Human Hair Follicles and Dermal Fibroblasts[J]. Tissue Eng Part A, 2021. DOI: 10.1089/ten.tea.2020.0284. PMID: 33573455.
[122] Sierra-Sánchez Á, et al. Cellular human tissue-engineered skin substitutes investigated for deep and difficult to heal injuries[J]. NPJ Regen Med, 2021. DOI: 10.1038/s41536-021-00144-0. PMID: 34140525.
[123] Li H, et al. Osteogenic Potential of Mesenchymal Stem Cells from Adipose Tissue, Bone Marrow and Hair Follicle Outer Root Sheath in a 3D Crosslinked Gelatin-Based Hydrogel[J]. Int J Mol Sci, 2021. DOI: 10.3390/ijms22105404. PMID: 34065598.
[124] Zhang Y, et al. Placental stem cells-derived exosomes stimulate cutaneous wound regeneration via engrailed-1 inhibition[J]. Front Bioeng Biotechnol, 2022. DOI: 10.3389/fbioe.2022.1044773. PMID: 36568306.
[125] Wang Y, et al. Self-organizing three-dimensional dermal papilla cell spheroids yield therapeutic extracellular vesicles that target hypertrophic scar regression via the miR-26a-5p/CCNE2 axis[J]. Burns Trauma, 2025. DOI: 10.1093/burnst/tkaf048. PMID: 42421776.
[126] Dal’Forno-Dini T, et al. Exploring the reality of exosomes in dermatology[J]. An Bras Dermatol, 2024. DOI: 10.1016/j.abd.2024.09.002. PMID: 39562240.
[127] Xu X, et al. Targeted Silencing of Engrailed-1 Reprograms Profibrotic Fibroblast Lineages for Scarless Wound Healing[J]. Mol Ther, 2025. DOI: 10.1016/j.ymthe.2025.07.031. PMID: 40708196.
[128] Li X, et al. Inhibiting dipeptidyl peptidase 4 positive fibroblasts using zinc sulfide cellulose nanofiber scaffolds to achieve scarless healing[J]. Int J Biol Macromol, 2024. DOI: 10.1016/j.ijbiomac.2024.137525. PMID: 39537047.
[129] Overmiller AM, et al. Reprogramming of epidermal keratinocytes by PITX1 transforms the cutaneous cellular landscape and promotes wound healing[J]. JCI Insight, 2024. DOI: 10.1172/jci.insight.182844. PMID: 39480496.
[130] Wang K, et al. Retinoids in scarless skin regeneration: from molecular mechanisms to therapeutic strategies[J]. Front Cell Dev Biol, 2025. DOI: 10.3389/fcell.2025.1683851. PMID: 41089674.
[131] Xavier S, et al. A Matrix-Derived Bioactive Peptide Enhances Epidermal Thickness and Hair Follicle Neogenesis in Grafted Dermal-Epidermal Composites[J]. Wound Repair Regen, 2025. DOI: 10.1111/wrr.70036. PMID: 40387415.
[132] Dou Z, et al. Bilayer Silk Fibroin/Sodium Alginate Scaffold Delivered hUC-MSCs to Enhance Skin Scarless Healing and Hair Follicle Regeneration with the IRE1/XBP1 Pathway Inhibition[J]. ACS Biomater Sci Eng, 2023. DOI: 10.1021/acsbiomaterials.3c00059. PMID: 37256923.
[133] Yu Y, et al. Biomimetic hydrogel derived from decellularized dermal matrix facilitates skin wounds healing[J]. Mater Today Bio, 2023. DOI: 10.1016/j.mtbio.2023.100725. PMID: 37483381.
[134] Zhang Y, et al. Scarless wound healing programmed by core-shell microneedles[J]. Nat Commun, 2023. DOI: 10.1038/s41467-023-39129-6. PMID: 37301874.
[135] Xiong M, et al. Programmable Artificial Skins Accomplish Antiscar Healing with Multiple Appendage Regeneration[J]. Adv Mater, 2024. DOI: 10.1002/adma.202407322. PMID: 39460410.
[136] Lv Y, et al. Materials-based hair follicle engineering: Basic components and recent advances[J]. Mater Today Bio, 2024. DOI: 10.1016/j.mtbio.2024.101303. PMID: 39498149.
[137] See G, et al. Advancements in Functional Polymeric Scaffolds for Scar-Free Skin Regeneration[J]. Polym Sci Technol, 2026. DOI: 10.1021/polymscitech.6c00019. PMID: 42799204.
[138] Kageyama T, et al. Hair Follicle Organoids Using Human iPSC-Derived Ectodermal Precursor Cells for Hair Regenerative Medicine[J]. ACS Biomater Sci Eng, 2026. DOI: 10.1021/acsbiomaterials.5c01780. PMID: 41664452.
[139] Yao X, et al. Hair follicle organoids: advances in construction, applications, and translational challenges[J]. Front Cell Dev Biol, 2026. DOI: 10.3389/fcell.2026.1836905. PMID: 42293765.
[140] Ahmed IA, et al. Human hair regeneration using organoids and hair-on-chip technologies[J]. Lab Chip, 2026. DOI: 10.1039/d6lc00095a. PMID: 42003600.
[141] Sun H, et al. Generation of Skin Organoids: Potential Opportunities and Challenges[J]. Front Cell Dev Biol, 2021. DOI: 10.3389/fcell.2021.709824. PMID: 34805138.
[142] Wang S, et al. Matrix-free cryo-microneedles array patch for 3D hair follicle organoids delivery and rapid hair regeneration[J]. Mater Today Bio, 2026. DOI: 10.1016/j.mtbio.2026.102997. PMID: 41852879.
[143] Xiao L, et al. Organoid-loaded core-shell cryomicroneedles induce biomimetic follicular units and hair regeneration[J]. Bioact Mater, 2026. DOI: 10.1016/j.bioactmat.2026.07.004. PMID: 42472089.
[144] Cao X, et al. Hair Follicle Seedling Cryomicroneedles from Hierarchical Microfluidic Organoid on a Chip[J]. Adv Sci (Weinh), 2026. DOI: 10.1002/advs.75961. PMID: 42240973.
[145] Mishra M, et al. “Bioprinting of Hair: How Far We Proceeded and What Needs to be Done”[J]. Biotechnol Bioeng, 2026. DOI: 10.1002/bit.70250. PMID: 42163626.
[146] Hosseini M, et al. Biofabrication of Human Skin with Its Appendages[J]. Adv Healthc Mater, 2022. DOI: 10.1002/adhm.202201626. PMID: 36063498.
[147] Chu X, et al. Functional regeneration strategies of hair follicles: advances and challenges[J]. Stem Cell Res Ther, 2025. DOI: 10.1186/s13287-025-04210-y. PMID: 39985119.
[148] Kretzschmar K, et al. Troy/Tnfrsf19 marks epidermal cells that govern interfollicular epidermal renewal and cornification[J]. Stem Cell Reports, 2021. DOI: 10.1016/j.stemcr.2021.07.007. PMID: 34358453.
[149] Kandyba E, et al. Chemically induced skin tumors arise from long-lived stem cells of the upper hair follicle[J]. Science, 2026. DOI: 10.1126/science.adv8291. PMID: 42275467.
[150] Ye H, et al. Distinct fibroblast assemblies establish scarless regeneration[J]. Cell Rep, 2025. DOI: 10.1016/j.celrep.2025.116767. PMID: 41447531.
[151] Wang J, et al. Reprogramming the wound microenvironment: identity remodeling strategies for fibroblasts, keratinocytes, and macrophages[J]. Front Immunol, 2026. DOI: 10.3389/fimmu.2026.1892931. PMID: 42548532.
[152] Qu H, et al. Engineering immune-competent hair follicle microphysiological systems: from organoid assembly to dynamic immune modelling[J]. Front Bioeng Biotechnol, 2026. DOI: 10.3389/fbioe.2026.1846566. PMID: 42339464.
相关专页:内减张技术专页 · 全量文章索引 · 医生主页 · 治疗案例记录
相关问答:疤痕增生期多久结束? · 疤痕可以完全消除吗? · 缝线疤痕多久变淡?时间线
关于本文:本文撰写与审核:吕开阳,执业医师,整形外科(主任医师),上海三甲医院。本站为个人科普站点,内容为医学教育材料,不构成对任何个体的诊疗建议;诊断与治疗方案须由具备资质的医师面诊确定,效果存在个体差异。本站不提供在线诊疗与首诊,就医请通过医院官方渠道挂号。沪ICP备2025119709号-1