发布于 2026-11-13 · 内容最后核查:2026-11-18 · 撰写与审核:吕开阳(执业医师,整形外科·主任医师,上海三甲医院)
真皮成分对皮肤瘢痕增生机制的影响
近二十年(2006—2026)文献描述性综述
Dermal Components in the Pathogenesis of Hypertrophic Scarring:
A Descriptive Review of Two Decades of Evidence
| 文献类型 | 描述性综述(narrative / descriptive review),非系统评价或 Meta 分析 |
|---|---|
| 检索时段 | 2006 年 1 月 — 2026 年 11 月(检索执行日:2026 年 11 月 13 日) |
| 数据来源 | BioMCP 联邦检索:PubMed / Europe PMC / PubTator3 / Semantic Scholar;PMC 全文复核;中文期刊补充 |
| 题录核准 | NCBI E-utilities 批量核对 86 条 PMID;另纳入 3 篇中文文献 |
| 内容结构 | 11 章正文 + 3 个附录;9 幅机制示意图 + 11 张表格;参考文献 89 条 |
| 配图说明 | 全部机制图由作者依据文献自绘,用于表达调控关系,非组织学显微照片 |
本文为文献综述与机制分析,不构成临床诊疗建议;所述术式应由具备资质的临床医师结合患者情况判断。
目 录
(按章节顺序列出;页码请使用 Word 的「更新域」功能生成)
摘要
第一章 引言、检索策略与概念界定
第二章 真皮的结构与成分基础
第三章 病理性瘢痕的真皮表型:描述性基线
第四章 胶原体系:合成、排列、交联与降解的失衡
第五章 非胶原基质成分:决定”质”的那一半
第六章 真皮细胞成分:谁在制造瘢痕
第七章 力学微环境:真皮成分影响瘢痕的核心通路
第八章 真皮深层与内减张:从机制到技术
第九章 从机制到靶点:预防与治疗的转化图谱
第十章 研究模型、方法与证据局限
第十一章 结论与展望
附录 A 近二十年代表性研究线索
附录 B 缩略语表
附录 C 检索式与数据来源说明
参考文献
图表清单
图 图 1 正常皮肤真皮的层次结构与主要成分。注意网状真皮是胶原束与张力承载的主体,也是病理性瘢痕的主要发生层次。
图 图 2 正常真皮与病理性瘢痕的细胞外基质结构对比(示意图)。左侧篮状编织、中间平行排列的粗大胶原束与结节、右侧粗大玻璃样且无序的胶原束。
图 图 3 真皮基质成分经膜受体与胞内通路影响细胞结局的机制网络。左列为成分改变,中列为感受器与通路,右列为细胞与基质结局。
图 图 4 真皮细胞互作网络与促纤维化信号。中央为肌成纤维细胞,外周为参与瘢痕微环境的细胞群。
图 图 9 创面愈合时相中真皮成分、细胞与组织张力的动态演变,以及”闭合前聚拢—闭合后持续减张”的两阶段解读。
图 图 5 真皮力学信号转导级联:从组织张力、膜感受器、细胞骨架与核力学到促纤维化基因表达。
图 图 6 ”力-化-生”耦合的自我强化正反馈环,以及力学、化学、生物学三类干预窗口。
图 图 7 真皮深层力学承载与内减张缝合的机制示意。A 为常规缝合下张力集中于创缘;B 为慢吸收线在网状真皮深层锚定、承担水平牵张。
图 图 8 由真皮成分机制衍生的分层治疗靶点全景:力学层、化学/信号层、细胞/基质层与再生/结构层。
表 表 1 真皮主要细胞外基质成分及其与瘢痕增生的关系
表 表 2 生理性瘢痕、增生性瘢痕与瘢痕疙瘩的比较(真皮视角)
表 表 3 胶原代谢关键分子及其在病理性瘢痕中的变化
表 表 4 非胶原基质成分在病理性瘢痕中的改变及其机制含义
表 表 5 真皮主要细胞群及其促纤维化机制
表 表 6 关键机械转导分子、证据类型与可干预性
表 表 7 减张与力学干预机制的对照
表 表 8 代表性治疗靶点、作用环节与转化阶段
表 表 9 主要证据冲突的来源核查与解释
表 表 A1 按年份梳理的机制认识演进(代表性文献,非穷尽)
表 表 B1 主要缩略语
摘要
背景 皮肤瘢痕增生(增生性瘢痕与瘢痕疙瘩)本质上是真皮损伤后,以细胞外基质(extracellular matrix, ECM)过度沉积与结构重构失败为特征的纤维化过程。近二十年的研究把认识的焦点从”成纤维细胞过度增殖”推进到”真皮成分—力学微环境—细胞命运”的动态耦合:真皮的胶原、弹性纤维、蛋白聚糖、透明质酸、基底膜以及栖居其中的多种细胞,既是损伤的承受者,也是促纤维化信号的产生者与放大器。目的 对 2006 年 1 月至 2026 年 11 月间关于真皮成分影响皮肤瘢痕增生机制的文献进行描述性综述,梳理证据链、争议与转化方向。方法 以 BioMCP 生物医学检索通道联合检索 PubMed、Europe PMC、PubTator3 与 Semantic Scholar,并补充中文期刊与 PubMed Central 全文;按”结构分子—细胞—力学微环境—界面与附属器”四个层次归类提取。结果 真皮网状层是张力承载与病理性瘢痕的核心效应层次:深部网状真皮成纤维细胞贡献了大部分 TGF-β1,损伤后 Engrailed-1 谱系阴性成纤维细胞在机械张力下转化为促纤维化谱系,构成瘢痕成纤维细胞的 40%–50%。胶原Ⅰ/Ⅲ比例与取向、LOX 交联、MMP/TIMP 失衡构成”量”的改变;弹性纤维断裂、decorin/fibromodulin 下降、versican 升高、透明质酸减少与片段化、纤连蛋白 EDA 剪接体增加构成”质”的改变;二者共同提高基质刚度,经整合素—黏着斑—FAK、Piezo1、钙黏蛋白与 YAP/TAZ、TGF-β/Smad 等通路形成自我强化的正反馈环。结论 真皮成分并非被动的填充物,而是瘢痕增生的主动调控者;以真皮深层为着力点的持续性减张(含埋没皮内缝合等内减张技术)在机制上与上述链条高度契合,但其长期疗效仍需随机对照研究验证。
关键词 真皮;细胞外基质;增生性瘢痕;瘢痕疙瘩;成纤维细胞异质性;机械转导;YAP/TAZ;蛋白聚糖;透明质酸;减张缝合
第一章 引言、检索策略与概念界定
1.1 问题的提出:为什么必须从”真皮成分”切入
成年哺乳动物皮肤损伤后几乎必然以瘢痕而非再生方式修复。瘢痕组织与正常皮肤的差异可归纳为三点:缺乏毛囊、皮脂腺等皮肤附属器;胶原纤维由正常真皮的”篮状编织”(basket-weave)变为致密平行排列;由此导致顺应性、延展性与抗拉强度的下降(Mascharak 等,2021,Science,PMID 33888614)。这三点全部发生在真皮。换言之,瘢痕不是表皮的问题,而是真皮的结构性失败。
临床上,烧伤后增生性瘢痕的发生率可高达 72%(Kohlhauser 等,2024,PMID 39519131),瘢痕挛缩、瘙痒、疼痛与功能障碍给患者带来长期负担。既往机制叙述多以”炎症—增殖—重塑”时相为轴,把成纤维细胞视作同质化的效应细胞。近二十年,尤其是 2021 年以后单细胞转录组、空间组学与力学生物学的引入,改变了这一图景:真皮成纤维细胞存在明确的层级与谱系异质性,其促纤维化表型由所在层次的基质成分与局部力学状态共同决定(Solé-Boldo 等、Deng 等,见 Kohlhauser 等 2024 综述所引文献 96、97;PMID 34140509、37148203)。
因此,本综述采用”成分—结构—力学—细胞”四层框架,讨论真皮各成分如何参与、放大并维持瘢痕增生。与系统评价不同,本文为描述性综述(narrative/descriptive review):目标是整合机制证据、呈现概念演变与争议,而非对某一干预效应量进行合并分析;文中数据多来自组织学、体外与动物模型,外推至临床时须注明证据等级。
1.2 检索策略与文献来源
数据源与通道:以 BioMCP 生物医学检索服务为主通道,联邦检索 PubMed、Europe PMC、PubTator3、Semantic Scholar(部分时段降级)与 LitSense2 语义排序;对纳入的重点综述通过 PubMed Central 获取全文并逐段核对;中文文献通过公开期刊官网与 PubMed Central 中文版页面补充。
时间窗:2006 年 1 月至 2026 年 11 月(检索执行日 2026 年 11 月 13 日)。少数早于该窗口的经典观察(如 1977 年关于松弛皮肤张力线与切口设计的研究、2002 年苦味酸天狼星红偏振法对胶原分型的定量)仅作为概念背景在正文中提及,不列入主要参考文献。
检索主题组(每组以自由词与主题词组合、并按综述/研究类型与年份分层):① hypertrophic scar / keloid / pathomechanisms;② dermal extracellular matrix / collagen / proteoglycan / decorin / versican / hyaluronan / elastin / fibronectin;③ papillary versus reticular fibroblast / fibroblast heterogeneity / single-cell;④ mechanotransduction / mechanical tension / YAP-TAZ / Piezo1 / integrin-FAK / Engrailed-1;⑤ immune microenvironment / macrophage / mast cell / dermal white adipose tissue / neuroregulation / angiogenesis-hypoxia;⑥ tension offloading / intradermal suture / stress shielding / silicone / pressure therapy / botulinum toxin;⑦ fetal scarless healing / wound regeneration / hair follicle neogenesis。
题录核准:所有英文文献的作者、标题、期刊、年份、卷期、页码与 DOI 均经 NCBI E-utilities 批量回查,共核准 86 条 PMID;中文文献按原刊著录。文末参考文献按”中文文献—英文文献”分组,英文文献附 PMID 与 DOI 以便逐条核验。文中采用”作者等,年份”的标注方式;同一结论存在分歧时,在正文与第十章中并列列出不同来源及其方法学差异。
局限说明:本检索未采用 PRISMA 流程、未做双人筛选与偏倚评价,也未覆盖 Embase、Web of Science 全库与灰色文献;因此文献集合属于”代表性证据”而非”穷尽性证据”,不宜用于计算合并效应量。
1.3 概念与术语界定
为避免讨论中的概念漂移,先界定四组术语。
生理性瘢痕:创面愈合重塑期的正常结局,平坦、色淡、局限于原创面,胶原由Ⅲ型逐步替换为Ⅰ型并交联成熟,肌成纤维细胞在完成收缩后凋亡,MMP 与 TIMP 保持平衡(Kohlhauser 等,2024,PMID 39519131)。
增生性瘢痕(hypertrophic scar, HTS):伤后 4–8 周出现、6 个月内快速增生、数年内可部分消退;隆起、发红、质硬,不超出原创缘;组织学以Ⅲ型胶原为主的平行排列粗大胶原束、结节样结构与炎症浸润为特征,常继发于累及真皮深层的烧伤、手术切口与撕裂伤。
瘢痕疙瘩(keloid):可在伤后数年缓慢形成,超出原创缘呈侵袭性生长,无自发消退;以粗大玻璃样Ⅰ型胶原束、成纤维细胞结节、炎症浸润稀少、糖胺聚糖增多为特征,具有遗传易感性与中心—外围异质性。
真皮成分:本文按四个层次使用这一术语——(1)结构分子:胶原、弹性纤维、蛋白聚糖/糖胺聚糖、黏连糖蛋白、基底膜分子、基质细胞蛋白;(2)细胞成分:成纤维细胞各亚群、肌成纤维细胞、免疫细胞、内皮/周细胞、脂肪细胞、神经与附属器上皮;(3)物理微环境:基质刚度、张力、黏弹性、含水量与氧分压;(4)界面与附属器:真皮-表皮交界(DEJ)、毛囊-皮脂腺单位、汗腺及真皮-皮下交界。四层之间并无清晰边界,例如胶原既是结构分子,也通过交联决定刚度,并通过整合素直接传递信号。
阅读提示:本文所有机制图均为作者依据文献自绘的示意图,用于表达调控关系与层次,不代表真实组织的显微形貌或比例;图中箭头表示”主要调控方向”,不构成穷尽性通路图。
第二章 真皮的结构与成分基础
2.1 层次解剖:从表皮到皮下
人类皮肤由表皮、真皮与皮下组织构成。真皮并非均质一层,而是可分为上方的乳头真皮(papillary dermis)与下方的网状真皮(reticular dermis),其下经真皮-皮下交界与含脂肪的皮下组织及真皮白色脂肪组织(dermal white adipose tissue, dWAT)相接(Kohlhauser 等,2024,PMID 39519131)。二者在厚度、细胞密度、纤维口径、蛋白聚糖谱与力学行为上都不同:
乳头真皮较薄,含疏松的细胶原纤维、丰富的毛细血管袢与神经末梢;其弹性纤维系统呈典型的”烛台样”(candelabra-like)垂直分支,向基底膜方向延伸;成纤维细胞呈细长梭形、体外增殖能力更强、寿命更长,分泌较多 decorin 与胶原酶。
网状真皮较厚,由粗大的Ⅰ型胶原束交织成篮状结构,是皮肤抗拉强度的主要来源;成纤维细胞较扁平铺展、α-SMA 基础表达更高、胶原合成更旺盛、胶原酶表达更低,并偏向分泌大分子蛋白聚糖 versican(Kohlhauser 等 2024 所引文献 76、79–83;PMID 39519131)。
真皮-皮下交界存在一组参与 ECM 组织与重塑的特殊成纤维细胞;小鼠谱系追踪提示网状层与皮下层成纤维细胞是真皮修复的主要贡献者(Driskell 等;Haydont 等,见 PMID 39519131 所引文献 84、85)。
这一层次差异具有直接的临床含义:病理性瘢痕几乎总是继发于累及真皮深层的损伤,而浅表、仅及表皮或乳头层的损伤通常不留瘢痕。伤及网状真皮时,参与修复的正是那群”更容易产胶原、更容易表达 α-SMA、降解能力更弱”的细胞。
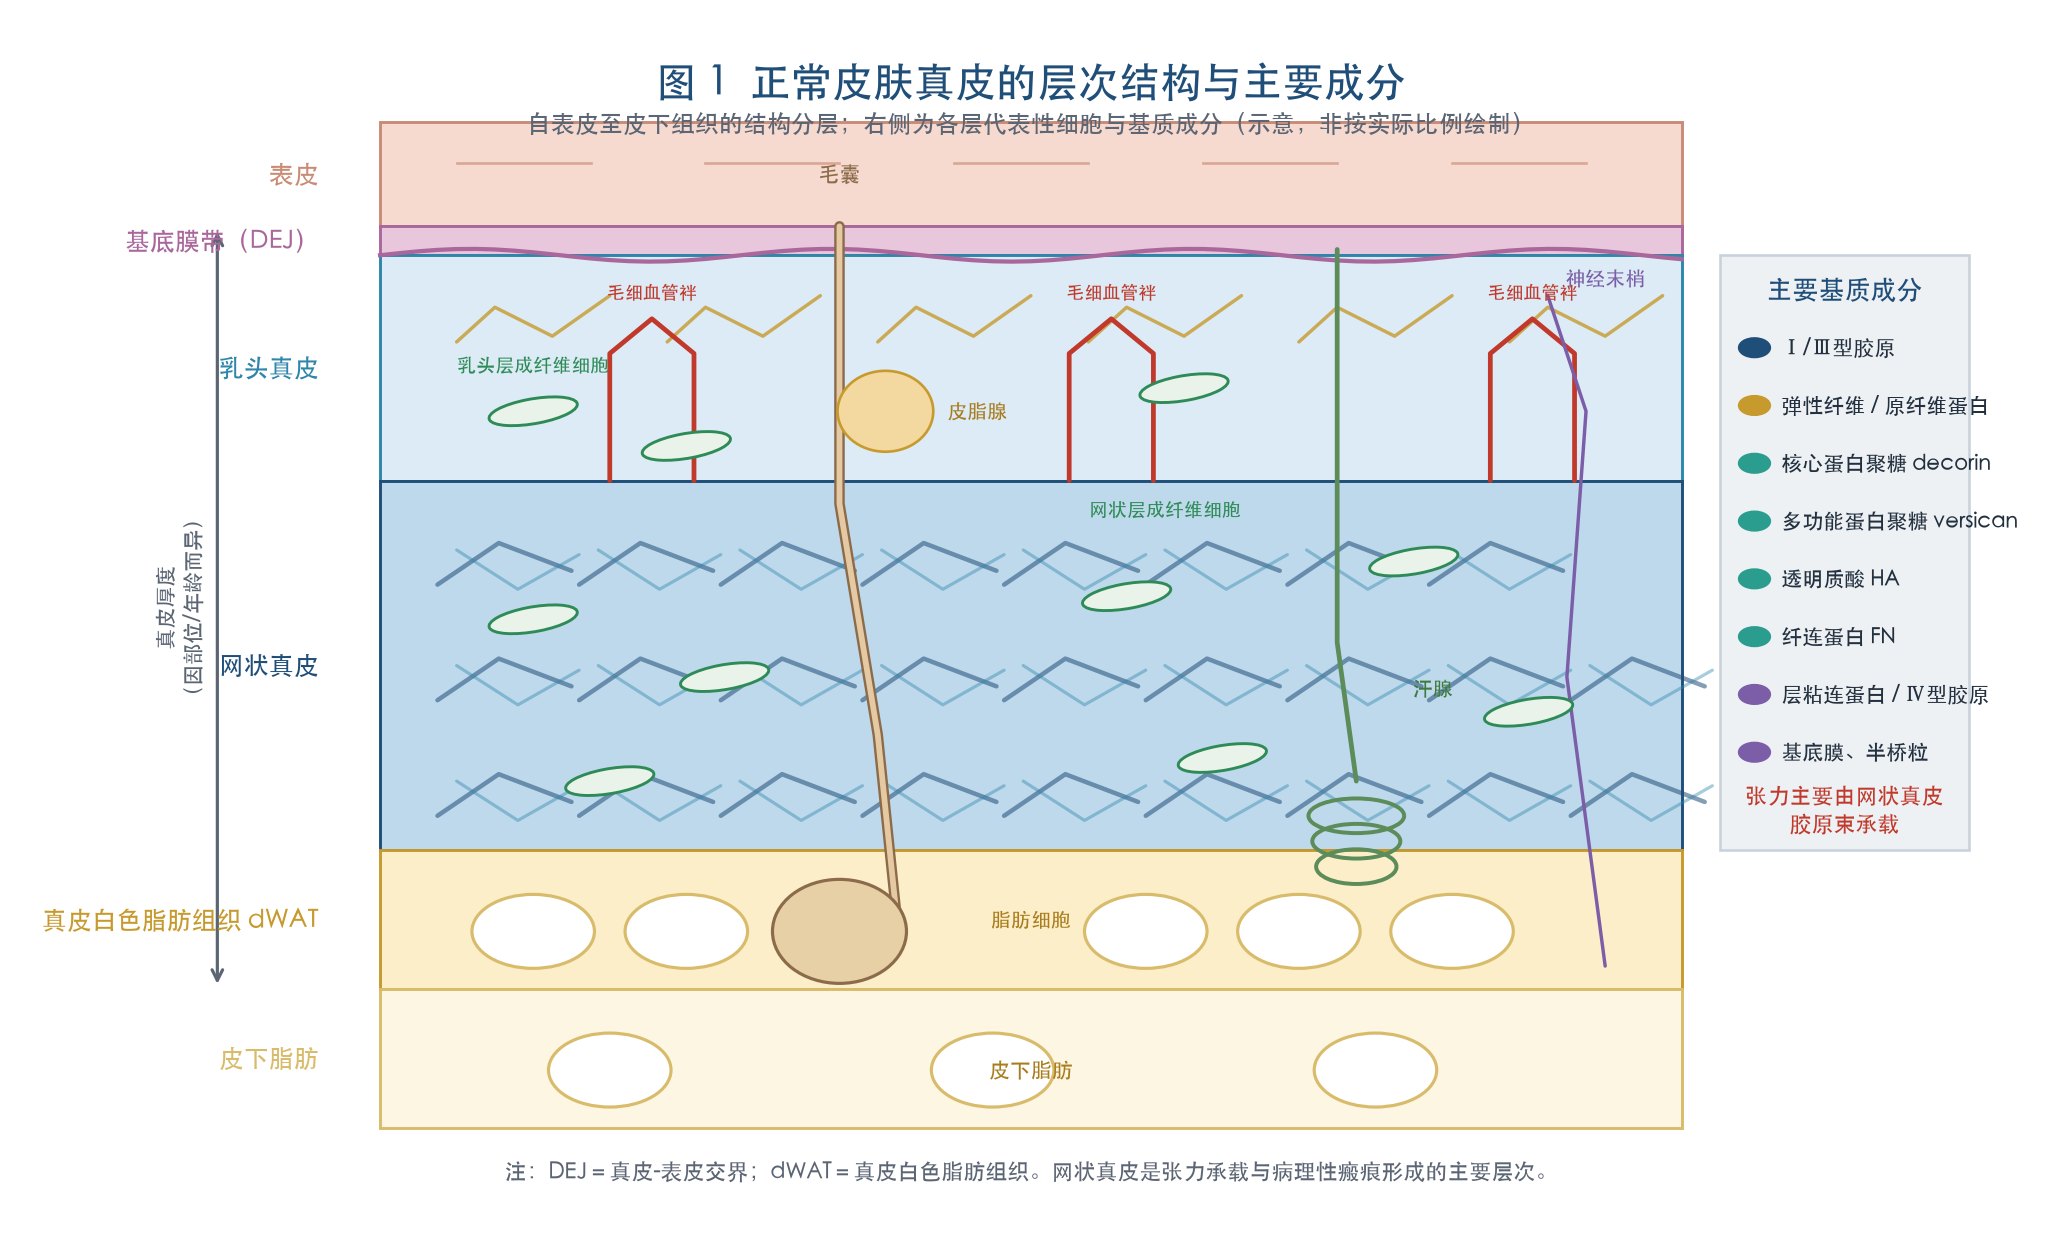
图 1 正常皮肤真皮的层次结构与主要成分。注意网状真皮是胶原束与张力承载的主体,也是病理性瘢痕的主要发生层次。
2.2 细胞外基质分子谱
真皮 ECM 由四大类分子构成,其相对含量与空间组织共同决定组织的力学与信号属性。
纤维性胶原:以Ⅰ型(约占真皮胶原主体的 80%–90%)与Ⅲ型为主,另有Ⅴ型调控纤维直径、Ⅵ型形成微纤维网络、Ⅳ型构成基底膜。Ⅰ型提供抗拉强度,Ⅲ型形成较细的网状纤维,在胚胎与早期肉芽组织中比例较高。
弹性纤维系统:以交联的弹性蛋白(elastin)为核心、外周包绕原纤维蛋白(fibrillin)微纤维,另有 fibulin、LTBP 等辅助蛋白;负责回弹与顺应性。LTBP 同时是潜伏 TGF-β 结合蛋白,把”弹性结构”与”生长因子储备”直接联系起来。
蛋白聚糖与糖胺聚糖:小富亮氨酸重复蛋白聚糖(small leucine-rich proteoglycans, SLRP)如 decorin、fibromodulin、lumican,通过核心蛋白结合胶原纤维调控其直径与排列,并可隔离 TGF-β;大分子聚集型蛋白聚糖 versican、aggrecan 带有大量硫酸软骨素链,具强亲水性、产生组织膨压;透明质酸(hyaluronan, HA)是不与核心蛋白共价结合的大分子糖胺聚糖,通过 CD44、RHAMM 等受体调节细胞迁移、增殖与炎症。
黏连糖蛋白与基质细胞蛋白:纤连蛋白(fibronectin, FN)在损伤后形成临时基质,其 EDA 剪接变体(EDA-FN)是肌成纤维细胞分化的必要许可信号;层粘连蛋白、nidogen、perlecan 构成基底膜;骨膜蛋白(periostin, POSTN)、腱生蛋白-C(tenascin-C)、CCN2/CTGF、SPARC、dermatopontin 等属”基质细胞蛋白”,不承担主要结构角色,而是调节细胞-基质相互作用与生长因子可用性。
表 1 真皮主要细胞外基质成分及其与瘢痕增生的关系
| 成分类别 | 代表分子 | 正常真皮中的主要功能 | 病理性瘢痕中的典型改变 | 参与瘢痕增生的机制 |
|---|---|---|---|---|
| 纤维性胶原 | Ⅰ型、Ⅲ型、Ⅴ型胶原 | 抗拉强度、组织支架;Ⅰ/Ⅲ比例随成熟升高 | 总量显著增加(HTS 胶原合成约为正常皮肤 7 倍);Ⅲ型比例升高;平行束取代篮状编织 | 提供整合素/DDR 配体、提高刚度、抵抗降解 |
| 基底膜胶原 | Ⅳ型、Ⅶ型胶原 | DEJ 锚定、屏障与极性 | DEJ flattening、锚定纤维减少 | 表皮-真皮信号串扰异常、角质形成细胞持续活化 |
| 弹性纤维 | elastin、fibrillin-1、LTBP | 回弹与顺应性;LTBP 储存潜伏 TGF-β | 断裂、碎片化、烛台样结构消失;HTS 深真皮 elastin 减少 | 顺应性下降、张力集中;TGF-β 生物利用度改变 |
| SLRP 类蛋白聚糖 | decorin、fibromodulin、lumican | 调控胶原纤维口径;结合并中和 TGF-β | decorin 在 HTS 中下降约 75%;fibromodulin 同步下降 | 失去对 TGF-β 的”分子刹车”,肌成纤维细胞分化增强 |
| 大分子蛋白聚糖 | versican | 保水、抗压、形成疏松基质 | 网状层来源细胞高表达;HTS 中约升高 6 倍 | 亲水性膨压与组织僵硬;促进细胞迁移与炎症 |
| 糖胺聚糖 | 透明质酸 HA | 高分子量 HA 维持水合、抑制过度炎症 | 总量下降;片段化 HA 增加;2026 年专题综述重申其病理意义 | 高分子 HA 抗纤维化 vs 低分子片段经 TLR4/CD44 促炎 |
| 黏连糖蛋白 | 纤连蛋白(含 EDA-FN)、层粘连蛋白 | 临时基质、细胞黏附与迁移 | EDA-FN、层粘连蛋白、FN 表达升高 | EDA-FN/α5β1 与 TGF-β 协同诱导 α-SMA |
| 基质细胞蛋白 | POSTN、tenascin-C、CTGF/CCN2、dermatopontin | 调节细胞-基质黏附与生长因子呈递 | POSTN 显著升高;dermatopontin 下降 | POSTN 标记促纤维化间充质亚群,促胶原交联与血管生成 |
| 交联酶 | 赖氨酰氧化酶 LOX 家族 | 胶原/弹性蛋白共价交联、成熟 | 交联增加、基质刚度上升 | 形成”刚度→YAP→更多胶原/LOX”的正反馈 |
| 降解系统 | MMP-1/8/13、MMP-2/9、TIMP-1、PAI-1 | ECM 周转、 remodeling | MMP-1 下降、TIMP-1 升高、PAI-1 升高 | 合成/降解失衡导致净沉积 |
2.3 细胞成分与”位置信息”
真皮内的细胞远不止成纤维细胞。除各层成纤维细胞及其活化后的肌成纤维细胞外,还包括常驻与募集的巨噬细胞、肥大细胞、树突细胞与 T 细胞、血管内皮细胞与周细胞、脂肪细胞、施万细胞与游离神经末梢,以及毛囊、皮脂腺与汗腺上皮。单细胞研究在人真皮中至少区分出分泌型乳头层、分泌型网状层、促炎型与间充质型四类成纤维细胞,其中 POSTN 高表达的间充质亚群被认为与瘢痕疙瘩关系最密切(Solé-Boldo 等;Deng 等,见 PMID 39519131、37148203)。
更重要的是,成纤维细胞携带位置信息(positional information):不同解剖部位与不同深度的细胞具有不同的 HOX 基因表达谱、胚胎起源(颅面源自神经嵴、背侧源自皮肌节、腹侧与肢体源自侧板中胚层)与 ECM 合成程序,并在体外传代后仍部分保留。这解释了为什么瘢痕好发于胸骨前、肩背、耳垂等部位,也解释了为什么同一患者不同部位的创面结局可以截然不同(PMID 38423396,2024 年关于位置信息决定真皮成纤维细胞命运的综述)。
2.4 生物力学属性:张力、刚度与各向异性
真皮是一种非线性、黏弹性、各向异性的复合材料。其张力由两部分构成:静态内力来自胶原束与弹性纤维的预拉伸及组织含水量,动态外力来自肌肉收缩、关节活动、呼吸、表情与体位。皮肤表面可见的松弛皮肤张力线(relaxed skin tension lines, RSTL;历史上亦称 Langer 线)反映胶原-弹性纤维网络的优势取向;切口方向与 RSTL 一致时瘢痕更窄,夹角大于 30° 时瘢痕更明显(赵倩楠等,2021,中华烧伤杂志)。
从材料学角度看,正常真皮在低应变下由弹性纤维承担、高应变下由拉直的胶原纤维承担,因而兼具柔顺与强韧;瘢痕组织因胶原束平行致密、弹性纤维缺失,早期即进入”高刚度”区,应变集中在其与正常皮肤的交界处。这种力学不连续性本身即是持续的机械刺激来源。
2.5 真皮-表皮交界与附属器:被忽视的”再生单元”
DEJ 由基底膜、半桥粒与锚定纤维组成,既是物理界面,也是角质形成细胞与成纤维细胞双向信号的枢纽。毛囊-皮脂腺单位含有上皮干细胞与真皮乳头细胞,可通过 Wnt/β-catenin、Shh 等通路在损伤后参与再上皮化乃至伤口诱导的毛囊新生(wound-induced hair neogenesis)。成人瘢痕最恒定的组织学特征之一正是附属器永久缺失:瘢痕区域内不见毛囊、皮脂腺与汗腺,因而缺乏再生性修复的细胞来源(Mascharak 等,2021,PMID 33888614)。
值得注意的是,2021 年 Science 研究显示,用维替泊芬抑制 YAP 或成纤维细胞特异性敲除 YAP 阻断 En1 激活后,小鼠创面在 30 天内不仅恢复了毛囊与皮脂腺,还恢复了正常真皮超微结构与力学强度。这说明”附属器缺失”并非不可避免的终点,而是可被力学-谱系干预逆转的表型,也把真皮成分的研究目标从”减少胶原”提升到”重建真皮结构”。
第三章 病理性瘢痕的真皮表型:描述性基线
3.1 生理性与病理性瘢痕的时相分岔
正常愈合分为止血、炎症、增殖与重塑四个相互重叠的阶段,重塑期可持续数月至两年(Kohlhauser 等,2024,PMID 39519131)。损伤后血小板脱颗粒释放 PDGF 与 TGF-β,纤维蛋白/纤连蛋白临时基质形成,DAMP 与 PAMP 经 TLR 激活常驻免疫细胞;中性粒细胞与 M1 巨噬细胞清除病原与碎片并分泌 IL-1β、IL-6、TNF-α;随后 M1 向 M2 极化,分泌 IL-10、TGF-β、VEGF、IGF-1,推动增殖期;增殖期以成纤维细胞迁移、肉芽组织、血管新生与再上皮化为特征;重塑期则以胶原类型转换、交联与肌成纤维细胞凋亡收尾。
病理性瘢痕可被理解为这条链条在多个节点同时失控:炎症期延长且强度升高、M1→M2 转换时相异常、TGF-β1/PDGF/IL-6/IL-11 持续高表达、成纤维细胞获得自分泌 TGF-β1 能力、肌成纤维细胞逃避凋亡、MMP/TIMP 平衡向净沉积倾斜。这些事件并非线性因果,而是互相放大的网络。
3.2 增生性瘢痕的组织学与分子表型
HTS 的典型描述包括:真皮内大量平行排列于表皮的粗大胶原束、结节样结构、淋巴细胞与巨噬细胞浸润、血管密度高于生理性瘢痕、肌成纤维细胞持续存在。Kohlhauser 等(2024,PMID 39519131)汇总的关键量化证据包括:HTS 胶原合成约为未损伤皮肤的 7 倍;Ⅲ型胶原合成上调;MMP-1 表达下降伴 TIMP-1 升高;胶原束由正常真皮的篮状编织变为与表皮平行的小束状/结节状排列。国内综述亦强调 HTS 内”排列紊乱、异常增多且较厚的玻璃样胶原纤维”,并指出整合素 β1、FAK、ERK1/2 在 HTS 表皮与真皮中表达均高于正常皮肤(赵倩楠等,2021)。
3.3 瘢痕疙瘩的组织学表型与空间异质性
瘢痕疙瘩以Ⅰ型与Ⅲ型胶原大量沉积、粗大玻璃样且方向紊乱的胶原束、真皮内成纤维细胞结节、缺乏炎症浸润、糖胺聚糖增多为特征,临床上超出原创缘且无自发消退。单细胞与空间分析进一步揭示:同一瘢痕疙瘩内部存在中心与外围、浅层与深层的成纤维细胞差异;结节型瘢痕疙瘩的中央网状层成纤维细胞产生更高水平的成熟胶原、TGF-β、HIF-1α 与 α-SMA,被认为是 ECM 生产的主阵地并呈离心性扩展;而广泛型瘢痕疙瘩的外围成纤维细胞迁移能力与牵引力更强(Serror 等,见 PMID 39519131 所引文献 180;PMID 37148203)。这一”中心产基质、外围促侵袭”的分工,为理解瘢痕疙瘩的扩张行为提供了空间维度。
3.4 关于Ⅰ/Ⅲ型胶原比例的证据分歧与来源核查
文献中关于胶原分型的表述存在表面矛盾,有必要并列核对来源与方法:
HTS 以Ⅲ型胶原为主:Kohlhauser 等(2024,PMID 39519131)的生理/病理对照表与正文均指出 HTS 以Ⅲ型胶原为主、与表皮平行排列,反映其”停留在早期重塑阶段”的特征。
瘢痕疙瘩Ⅰ/Ⅲ比值升高:一篇专门比较 HTS 与瘢痕疙瘩病理生理的综述(Adv Skin Wound Care,约 2017 年)汇总免疫组化与共聚焦数据称,瘢痕疙瘩Ⅰ/Ⅲ型胶原比值显著升高(有报道约 17:1),而 HTS 的Ⅲ/Ⅰ比值更高(约 6:1);同一综述还指出弹性蛋白在浅真皮于两类瘢痕中均减少,但在深真皮仅 HTS 减少、瘢痕疙瘩反而升高。
早期偏振光定量:2002 年苦味酸天狼星红偏振法测得 HTS 中Ⅰ型胶原约 (73.95±3.22)%、Ⅲ型约 (21.13±3.57)%,即仍以Ⅰ型占优。
这些差异并不必然互相否定,而更可能来自三个方法学因素:①检测对象不同(HTS vs 瘢痕疙瘩、早期 vs 成熟期、烧伤后 vs 手术切口);②方法不同(免疫组化抗体特异性与交叉反应、偏振光双折颜色判读、羟脯氨酸/生化定量、基因表达 vs 蛋白沉积);③取样层次不同(浅真皮 vs 深真皮、中心 vs 外围)。描述性结论宜表述为:与正常成熟真皮相比,HTS 的Ⅲ型胶原相对比例升高、成熟Ⅰ型交联胶原的更替受阻;而瘢痕疙瘩则常见Ⅰ型胶原为主的粗大玻璃样束。临床上不应把单一比值当作诊断阈值。
3.5 真皮深层是核心效应层次:三条独立证据
把注意力从”瘢痕整体”收窄到”真皮深层”,是近十年最重要的认识转变之一,也是本综述后续讨论内减张技术的机制基础。三条相对独立的证据线支持这一判断:
证据一(细胞因子来源):Wang 等的研究显示,HTS 中约 72.7% 的 TGF-β1 产生自深部网状真皮成纤维细胞,且相当比例的肌成纤维细胞由这群细胞分化而来(转引自 Kohlhauser 等,2024,PMID 39519131 所引文献 83)。也就是说,促纤维化的”信号源”在深层。
证据二(谱系可塑性):Mascharak 等(2021,Science,PMID 33888614)用移植与转基因谱系追踪发现,网状(深)真皮的 En1 谱系阴性成纤维细胞(ENF)在创面力学环境中被激活 En1,转化为出生后 EPF(pEPF),构成瘢痕成纤维细胞的约 40%–50%;软基质培养或 YAP 抑制可阻断该转化。深真皮因此是”命运开关”所在。
证据三(临床-力学对应):高张力部位(胸骨前下段、肩背、四肢伸侧)与深真皮损伤更易出现 HTS;切口闭合张力与术后一年瘢痕宽度正相关;红色杜洛克猪高张力闭合创面可复现人样瘢痕,而应力屏蔽可显著减轻(Gurtner 等,2011,PMID 21606834;赵倩楠等,2021)。真皮深层正是缝合时承担张力的层次。
表 2 生理性瘢痕、增生性瘢痕与瘢痕疙瘩的比较(真皮视角)
| 维度 | 生理性瘢痕 | 增生性瘢痕(HTS) | 瘢痕疙瘩(Keloid) |
|---|---|---|---|
| 出现时间 | 与重塑期同步,数月至 2 年成熟 | 伤后 4–8 周,6 个月内快速增生 | 可在伤后数年至十余年出现 |
| 与原创缘关系 | 局限于原创面 | 局限于原创面 | 超出原创缘、呈侵袭性生长 |
| 自然史 | 平坦、色淡、稳定 | 数年内可部分自行消退 | 无自发消退,切除后易复发 |
| 主要胶原类型 | Ⅲ型逐步被Ⅰ型替换并交联 | Ⅲ型相对增多,成熟替换受阻 | Ⅰ型为主的粗大玻璃样束,Ⅰ/Ⅲ比值升高 |
| 纤维排列 | 小束平行,接近正常 | 与表皮平行的粗大束 + 结节 | 方向紊乱、玻璃样变 |
| 弹性纤维 | 部分恢复 | 断裂、碎片化、烛台样结构消失 | 排列与分布异常,深真皮 elastin 可升高 |
| 炎症浸润 | 轻微、短暂 | 明显(淋巴细胞、巨噬细胞、肥大细胞) | 相对稀少 |
| 肌成纤维细胞 | 重塑完成后凋亡 | 凋亡缺失、持续存在 | 持续增殖,对张力不敏感但对刚度敏感 |
| 血管/缺氧 | 逐渐退化 | 血管密度升高 | 血管生成活跃、HIF-1α 上调 |
| 附属器 | 可部分保留 | 缺失 | 缺失 |
| 好发层次/部位 | 各类浅表损伤 | 深真皮损伤、高张力部位(胸前、肩背、关节) | 耳垂、胸骨前、肩部等,具遗传易感性 |
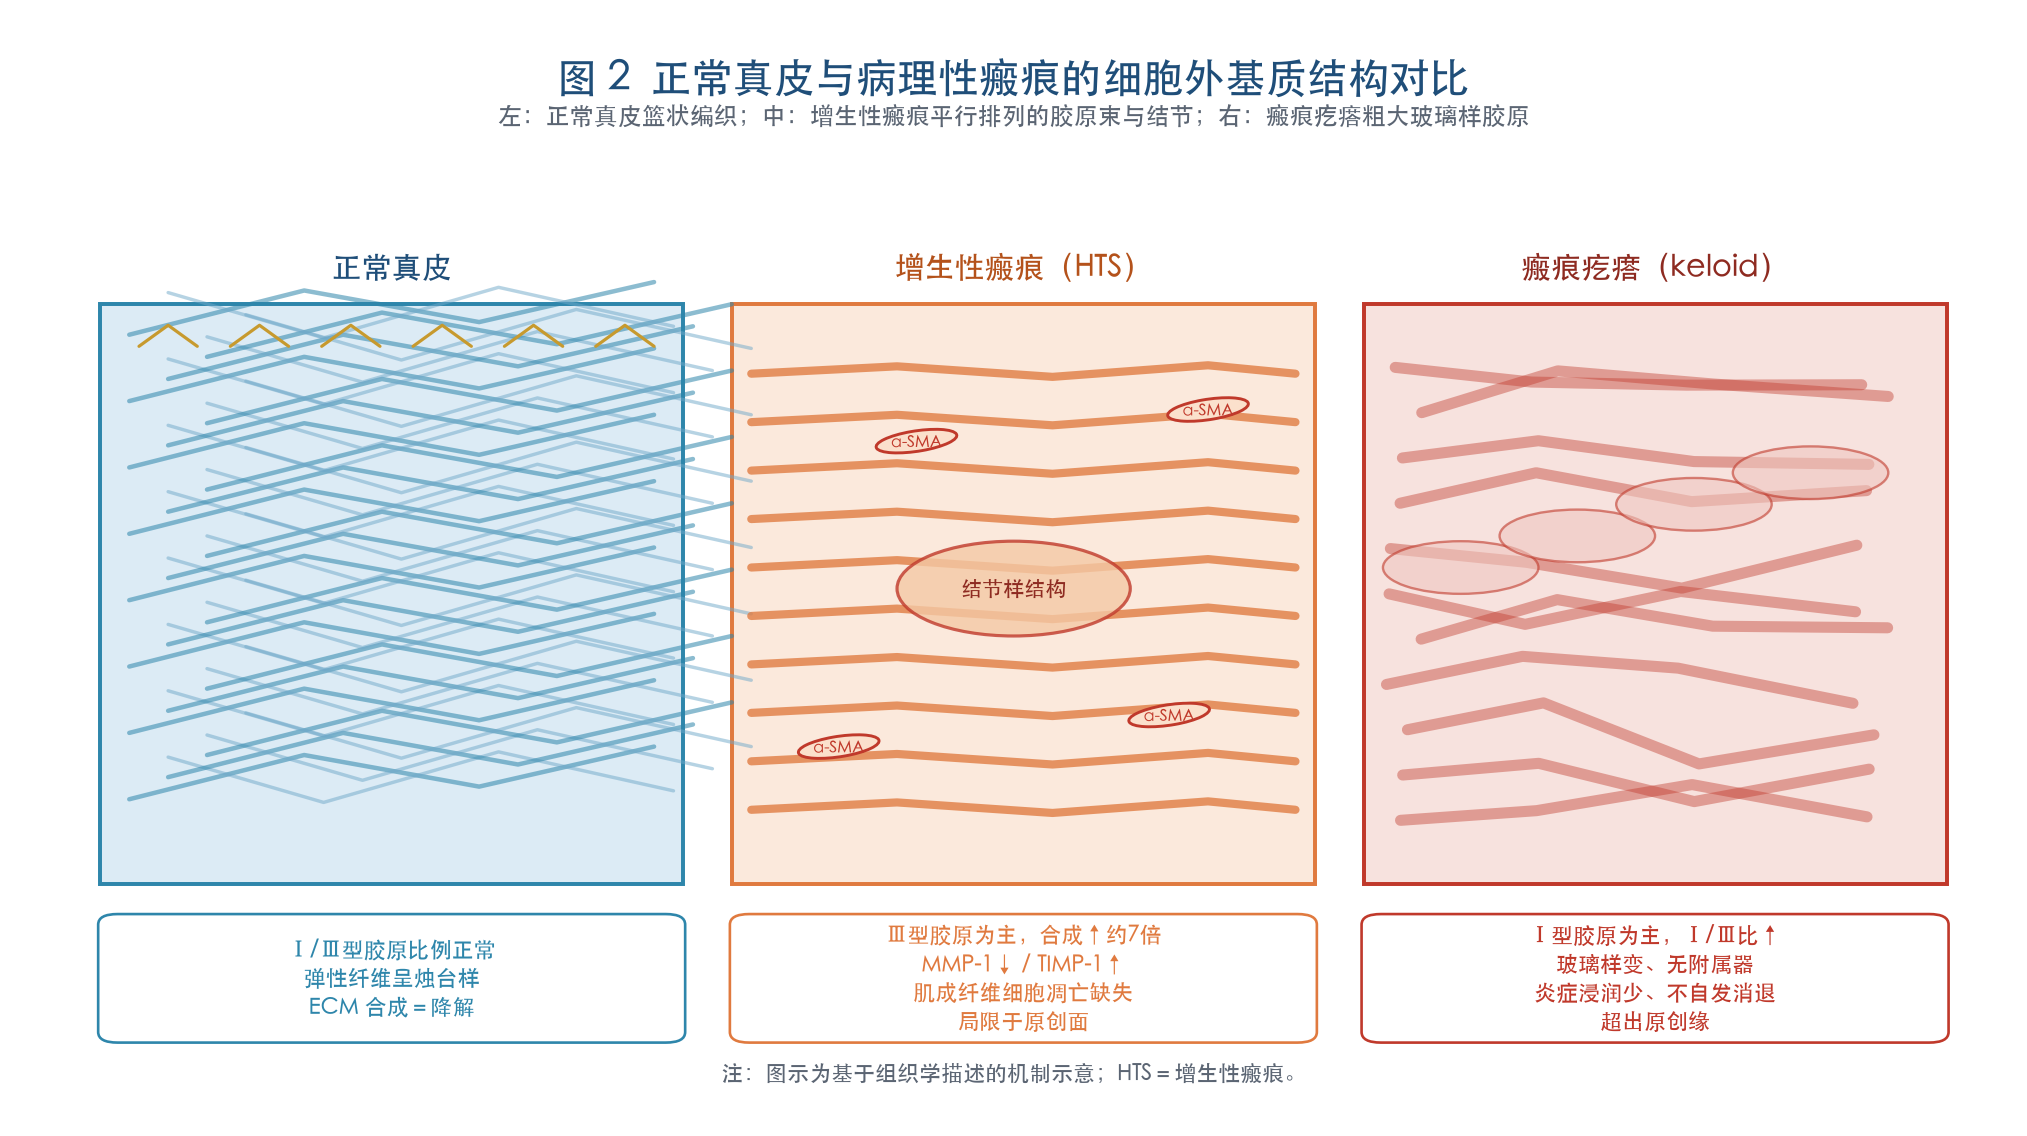
图 2 正常真皮与病理性瘢痕的细胞外基质结构对比(示意图)。左侧篮状编织、中间平行排列的粗大胶原束与结节、右侧粗大玻璃样且无序的胶原束。
第四章 胶原体系:合成、排列、交联与降解的失衡
4.1 从”量”到”质”:胶原代谢的四个控制点
胶原的净沉积由四个环节决定,任一环节失控均可导致纤维化:①合成(COL1A1/COL1A2/COL3A1 转录、脯氨酸与赖氨酸羟化、前胶原分泌);②装配与取向(纤维直径、纤维间交联、细胞牵引决定的排列方向);③交联(LOX 家族介导的共价交联,决定不可溶性与刚度);④降解(MMP 与 TIMP、PAI-1 对纤溶/基质降解级联的调控)。TGF-β1/Smad 通路几乎同时作用于这四个环节:上调胶原基因转录、促进 LOX 表达、抑制 MMP-1、诱导 TIMP-1 与 PAI-1(PMID 39519131;PMID 41424791 关于 PI3K/AKT/mTOR 的综述亦涉及合成调控)。
4.2 排列方向与”篮状编织”的丧失
正常真皮之所以能承受多方向应力,在于胶原束交织成篮状网络。HTS 中的胶原束则沿表皮平行、致密排列并聚成结节,导致各向异性剧增:沿纤维方向刚度极高,垂直方向延展性差,皮肤活动时的应变因而集中到瘢痕-正常皮肤交界处。这一结构并非单纯”胶原多了”,而是细胞牵引与力学边界条件共同塑造的结果:体外循环拉伸可使正常皮肤成纤维细胞在 0.1 Hz、10% 拉伸幅度、持续 5 天的条件下呈现 HTS 成纤维细胞的典型特征;拉伸还会引导应力纤维与胶原沿力线重排(赵倩楠等,2021;PMID 37143767 关于机械力对培养成纤维细胞行为影响的综述)。
二次谐波成像(SHG)、偏振光显微镜与原子力显微镜的应用,使”排列”从形态描述变成可量化指标;也可用于评价减张或激光干预后基质超微结构的恢复程度。
4.3 LOX 交联与基质刚度:从结构到信号的桥梁
赖氨酰氧化酶(LOX)及其家族成员把胶原与弹性蛋白分子间形成共价交联,是组织成熟的必要条件,但过度交联使基质变硬、抗降解。硬基质反过来通过整合素-黏着斑-Rho/ROCK 与 YAP/TAZ 促进成纤维细胞铺展、应力纤维形成与胶原/LOX 的进一步表达,构成”交联→刚度→更多交联”闭环(D’Urso 与 Kurniawan,2020,见 PMID 39519131 所引文献 42;PMID 36325354 机械转导综述)。
这条闭环解释了一个临床现象:成熟瘢痕即使炎症已消退,仍长期保持硬、紧、不易软化。也解释了为什么泛 LOX 抑制剂(如 PXS-5505)、低模量水凝胶敷料与”软化基质”策略会成为抗瘢痕研究的新方向(PMID 42263899,2026 年低模量水凝胶减少瘢痕形成的研究)。
4.4 MMP/TIMP 与 PAI-1:降解端失衡
人体已鉴定 23 种 MMP 亚型,其中胶原酶 MMP-1、-8、-13 切割Ⅰ/Ⅱ/Ⅲ型间质胶原,明胶酶 MMP-2、-9 降解变性胶原;TIMP 则抑制 MMP 活性。生理性重塑依赖二者动态平衡,把早期Ⅲ型胶原逐步替换为抗拉强度更高的Ⅰ型胶原。HTS 中 MMP-1 表达下降、TIMP-1 升高,导致净沉积(PMID 39519131)。上游的纤溶酶原激活物抑制物-1(PAI-1)通过抑制纤溶酶生成减少 MMP 活化,而 decorin 与 fibromodulin 恰能降低 TGF-β1 诱导的 PAI-1 表达——这就是”蛋白聚糖减少”与”降解受阻”之间的机制连接。
需要指出,胶原降解并非越强越好:过度降解会造成创面不愈、萎缩性瘢痕与皮肤脆弱。萎缩性瘢痕(常见于痤疮后)恰以胶原、弹性蛋白等基质成分丢失、真皮变薄为特征,与 HTS 构成方向相反的两极(PMID 39519131)。因此治疗目标应是恢复动态平衡与正常超微结构,而非单向抑制胶原。
4.5 胶原作为信号分子:matrikines 与受体
胶原不仅是结构材料。细胞通过整合素 α1β1、α2β1、α11β1 与盘状结构域受体 DDR1/DDR2 感知胶原;胶原降解片段(matrikines)可具趋化或促血管活性;潜伏 TGF-β 结合蛋白(LTBP)把生长因子锚定于 ECM,整合素 αvβ6/αvβ8 牵拉 LAP 复合物即可释放活性 TGF-β——这是”力学直接激活化学信号”最清晰的分子实例(吕开阳、李亚舒,2026;PMID 36325354)。此外,成纤维细胞具有”机械记忆”:在硬基质上培养后即使转移到软环境,YAP/TAZ 相关表观遗传改变仍可维持一段时间,这为早期力学干预的重要性提供了细胞学依据。
4.6 Ⅲ型胶原与”再生型基质”
胎儿早期创伤可实现无瘢痕愈合,其真皮基质特征是高分子量透明质酸丰富、Ⅲ型胶原比例高、炎症反应微弱、TGF-β3/TGF-β1 比值高(PMID 21039435,2011 年关于向胎儿皮肤学习防瘢痕策略的综述;PMID 20048602)。这一”再生型基质”启发了两条转化路径:一是补充外源性Ⅲ型胶原或重组人源化Ⅲ型胶原生物材料以重塑基质(PMID 42959459,2026);二是通过调控 TGF-β 亚型比例(提高 TGF-β3、降低 β1/β2)而非全面阻断 TGF-β,避免影响正常愈合。
表 3 胶原代谢关键分子及其在病理性瘢痕中的变化
| 环节 | 分子 | 变化方向 | 后果 | 主要上游调控 |
|---|---|---|---|---|
| 合成 | COL1A1/COL1A2/COL3A1 | ↑(约 7 倍合成速率) | 胶原净沉积 | TGF-β/Smad、IL-11/ERK、YAP/TAZ |
| 合成 | TGF-β1 自分泌 | ↑ | 促纤维化自我放大 | 机械张力、IL-6、PDGF |
| 装配 | EDA-FN、α5β1 整合素 | ↑ | 肌成纤维细胞分化许可 | TGF-β、TLR4 |
| 交联 | LOX / LOXL1–4 | ↑ | 基质硬化、抗降解 | TGF-β、HIF-1α、机械张力 |
| 降解 | MMP-1、-8、-13 | ↓ | 间质胶原清除减少 | TGF-β、TIMP-1、PAI-1 |
| 降解 | MMP-2、-9 | 早期↑、后期失衡 | 基底膜重塑异常、血管生成 | 炎症因子、HIF-1α |
| 抑制 | TIMP-1、PAI-1 | ↑ | 降解级联受抑 | TGF-β1/Smad、decorin 缺失 |
| 受体 | 整合素 β1、αvβ6/β8、DDR1/2 | ↑ | 力学感知与潜伏 TGF-β 活化 | 基质刚度、ECM 配体 |
| 负反馈 | Smad7 | 相对不足 | TGF-β 信号去抑制 | TGF-β 负反馈环路受损 |
第五章 非胶原基质成分:决定”质”的那一半
5.1 弹性纤维:从回弹丧失到 TGF-β 储备改变
弹性纤维由弹性蛋白核心与原纤维蛋白微纤维组成。HTS 中该系统的破坏具有层次特异性:弹性纤维主要残留于乳头层且分布不均,网状层部分区域完全缺如;乳头层 fibrillin 失去正常烛台样构型,网状层 fibrillin 断裂、弹性蛋白仅见于散在沉积物;两者总体积均低于正常皮肤与生理性瘢痕(Bhangoo 等,见 PMID 39519131 所引文献 152–154)。比较性综述进一步指出,fibrillin-1 在两类瘢痕的浅、深真皮均减少且两者间无显著差异,而弹性蛋白在深真皮仅于 HTS 减少、瘢痕疙瘩反而显著升高——提示两类病变的力学缺陷来自不同分子组合。
后果是双重的:机械上,回弹能力丧失使皮肤在每一次牵拉后把更多应变传递给胶原网络与创缘;信号上,弹性纤维相关微纤维(含 LTBP)是潜伏 TGF-β 的储存库,其断裂改变了生长因子的空间分布与释放动力学。弹性纤维几乎不能有效再生,这也是成熟瘢痕长期”僵硬”难以逆转的原因之一。
5.2 SLRP:decorin 与 fibromodulin 构成的”分子刹车”
decorin 与 fibromodulin 属小富亮氨酸重复蛋白聚糖,兼具三项功能:结合胶原纤维控制口径与间距、结合并中和 TGF-β、下调 TGF-β1 诱导的 PAI-1。HTS 来源成纤维细胞中二者表达明显低于正常真皮;decorin 在 HTS 组织中下降约 75%,且其水平随瘢痕消退而回升(Honardoust 等,2011,见 PMID 39519131 所引文献 141;另见 Adv Skin Wound Care 综述)。
更关键的是层次差异:网状真皮成纤维细胞本就比乳头层合成分泌更少的 decorin 与 fibromodulin、更多的 versican。因此一旦损伤深达网状层,局部基质天然缺少抗纤维化”刹车”。重组人 decorin 可下调瘢痕疙瘩成纤维细胞 TGF-β1 产生并抑制其生长,提示补充 SLRP 或模拟其功能是一条有机制依据的抗纤维化路径(PMID 21838832 关于 ECM 分子与异常瘢痕的系统梳理亦持此观点)。
fibromodulin 的作用更具情境依赖性:早期通过 TGF-β1/Smad 支持成纤维细胞迁移与肌成纤维细胞转分化,随后抑制 TGF-β1 表达与自诱导,从而限制 ECM 过度沉积、形成更小但抗拉强度更好的瘢痕。这提示”抗纤维化”不等于”抑制所有基质分子”,时相与剂量同样重要。
5.3 versican:被低估的刚度贡献者
versican 是带大量糖胺聚糖链的大分子聚集型蛋白聚糖,在网状层成纤维细胞中高表达,具强亲水性。HTS 中 versican 可达正常组织的约 6 倍,被认为通过其吸水膨胀特性参与瘢痕僵硬(PMID 39519131 所引文献 148、149)。此外,versican 可与透明质酸形成巨大复合物、结合趋化因子并促进炎症细胞滞留,是连接”基质含水量—炎症—力学”的枢纽分子。与 SLRP 的下降形成镜像:一个”刹车”被拆除,一个”膨胀剂”被加装。
5.4 透明质酸:分子量的双相效应
HA 是损伤后最早升高的基质分子之一,参与肉芽组织形成与肌成纤维细胞的出现和维持,随后经透明质酸酶与活性氧受控降解。比较性综述指出异常瘢痕中 HA 水平异常降低,提示其对正常愈合的调节作用;2026 年的专题综述《The Role of Hyaluronan in Keloid and Hypertrophic Scar Pathogenesis and Treatment》重新梳理了 HA 在两类瘢痕中的合成酶(HAS1–3)、降解酶(HYAL)、受体(CD44、RHAMM)与治疗应用(PMID 42345033)。
HA 的效应高度依赖分子量:高分子量 HA 具抗炎、抑制成纤维细胞过度增殖与水合作用,胎儿无瘢痕基质富含高分子量 HA;低分子量片段则作为 DAMP 经 TLR4/CD44 促炎、促血管生成与促纤维化(PMID 18282267,2008 年关于 HA 及其片段对成纤维细胞差异效应的研究)。因此”补充 HA”不能一概视为抗瘢痕,制剂分子量、交联程度与降解速率是决定方向的关键变量。这一区分在解读含 HA 敷料与填充剂的临床结果时尤其重要。
5.5 纤连蛋白与临时基质
损伤后血浆纤连蛋白与血小板产物共同构成纤维蛋白-纤连蛋白临时基质,为细胞迁移提供支架;随后细胞合成的 EDA-FN 通过 α5β1 整合素与 TLR4 参与 TGF-β1 依赖的 α-SMA 表达,被视为肌成纤维细胞分化的”许可信号”。异常瘢痕中纤连蛋白、层粘连蛋白、periostin 与 tenascin 表达升高,而 dermatopontin、decorin 下降(PMID 21838832,2011 年 ECM 分子综述)。dermatopontin 的减少会改变胶原纤维的聚集方式,进一步强化平行束结构。
5.6 基底膜、periostin 与基质细胞蛋白
DEJ 的重建速度影响表皮-真皮信号串扰:基底膜不完整时角质形成细胞持续分泌 IL-1β、TGF-β 与 MCP-1,维持真皮炎症。periostin(POSTN)是近年最受关注的基质细胞蛋白:单细胞研究把 POSTN 高表达的间充质型成纤维细胞识别为瘢痕疙瘩的主要贡献亚群,并在其内皮细胞中观察到 TGF-β/SMAD 通路上调,提示 POSTN 同时连接纤维化与血管生成(PMID 39519131 所引文献 97、178–181;PMID 42138176,2026 年 POSTN⁺ 成纤维细胞与 SPP1⁺ 巨噬细胞综述)。POSTN 亦被视为潜在的无创/组织学分层标志物。
5.7 从”成分清单”到”网络”:一个整合视角
把上述成分按图 3 的方式串接,可以看到一条反复出现的结构:任一成分的量的改变,都会同时改变组织的力学属性与细胞的信号输入。例如 LOX 交联↑既提高刚度又激活整合素;decorin↓既削弱胶原纤维的有序装配又解除对 TGF-β 的隔离;HA 片段↑既降低水合又经 TLR4 放大炎症。这正是”真皮成分”不能被简化为”填充物”的原因,也是为什么单纯抑制某一个细胞因子往往难以取得理想临床效果。
表 4 非胶原基质成分在病理性瘢痕中的改变及其机制含义
| 成分 | 正常真皮 | HTS / 瘢痕疙瘩中的改变 | 力学后果 | 信号后果 | 潜在干预 |
|---|---|---|---|---|---|
| 弹性蛋白 / fibrillin-1 | 弹性蛋白核心 + 微纤维;乳头层烛台样构型 | 断裂、碎片化、体积减少;深真皮弹性蛋白在两类瘢痕中变化方向不同 | 回弹丧失、应变集中于创缘 | LTBP 相关的潜伏 TGF-β 空间分布改变 | 促进弹性纤维再生(尚属难点) |
| decorin | 结合胶原调控纤维口径,隔离 TGF-β | HTS 中下降约 75%,随瘢痕消退回升 | 纤维口径不均、排列紊乱 | TGF-β 抑制解除、PAI-1 升高 | 重组 decorin / SLRP 模拟肽 |
| fibromodulin | 与 decorin 协同 | 下降;早期促迁移、后期抑制 TGF-β1 自诱导 | 影响瘢痕抗拉强度 | 时相依赖的双向调节 | 时相化补充,避免早期抑制 |
| versican | 网状层相对较高 | HTS 中约升高 6 倍 | 亲水膨压、组织僵硬 | 趋化因子滞留、炎症细胞募集 | 抑制合成 / 酶解大分子聚集体 |
| 透明质酸 | 高分子量为主,维持水合 | 总量下降、片段化增加 | 水合下降、基质致密 | 片段经 CD44/TLR4 促炎;高分子量抗炎 | 按分子量设计制剂,调节 HAS/HYAL |
| 纤连蛋白 EDA 变体 | 临时基质,随后被替换 | 持续高表达 | 提供细胞牵引锚点 | α5β1/TLR4 许可 α-SMA 分化 | 阻断 EDA-FN/α5β1 |
| 基底膜 / 层粘连蛋白 | DEJ 完整、极性明确 | 重建延迟、锚定纤维减少 | 界面应变传递异常 | 角质形成细胞持续释放 IL-1β、MCP-1 | 促进基底膜成熟 |
| POSTN / tenascin-C | 低水平、损伤后短暂 | 持续升高;POSTN 标记促纤维化亚群 | 促胶原交联 | 连接纤维化与血管生成 | 抗 POSTN / 靶向该亚群 |
| dermatopontin | 调控胶原纤维聚集 | 下降 | 平行粗束形成 | 与 decorin 协同缺失 | 补充研究阶段 |
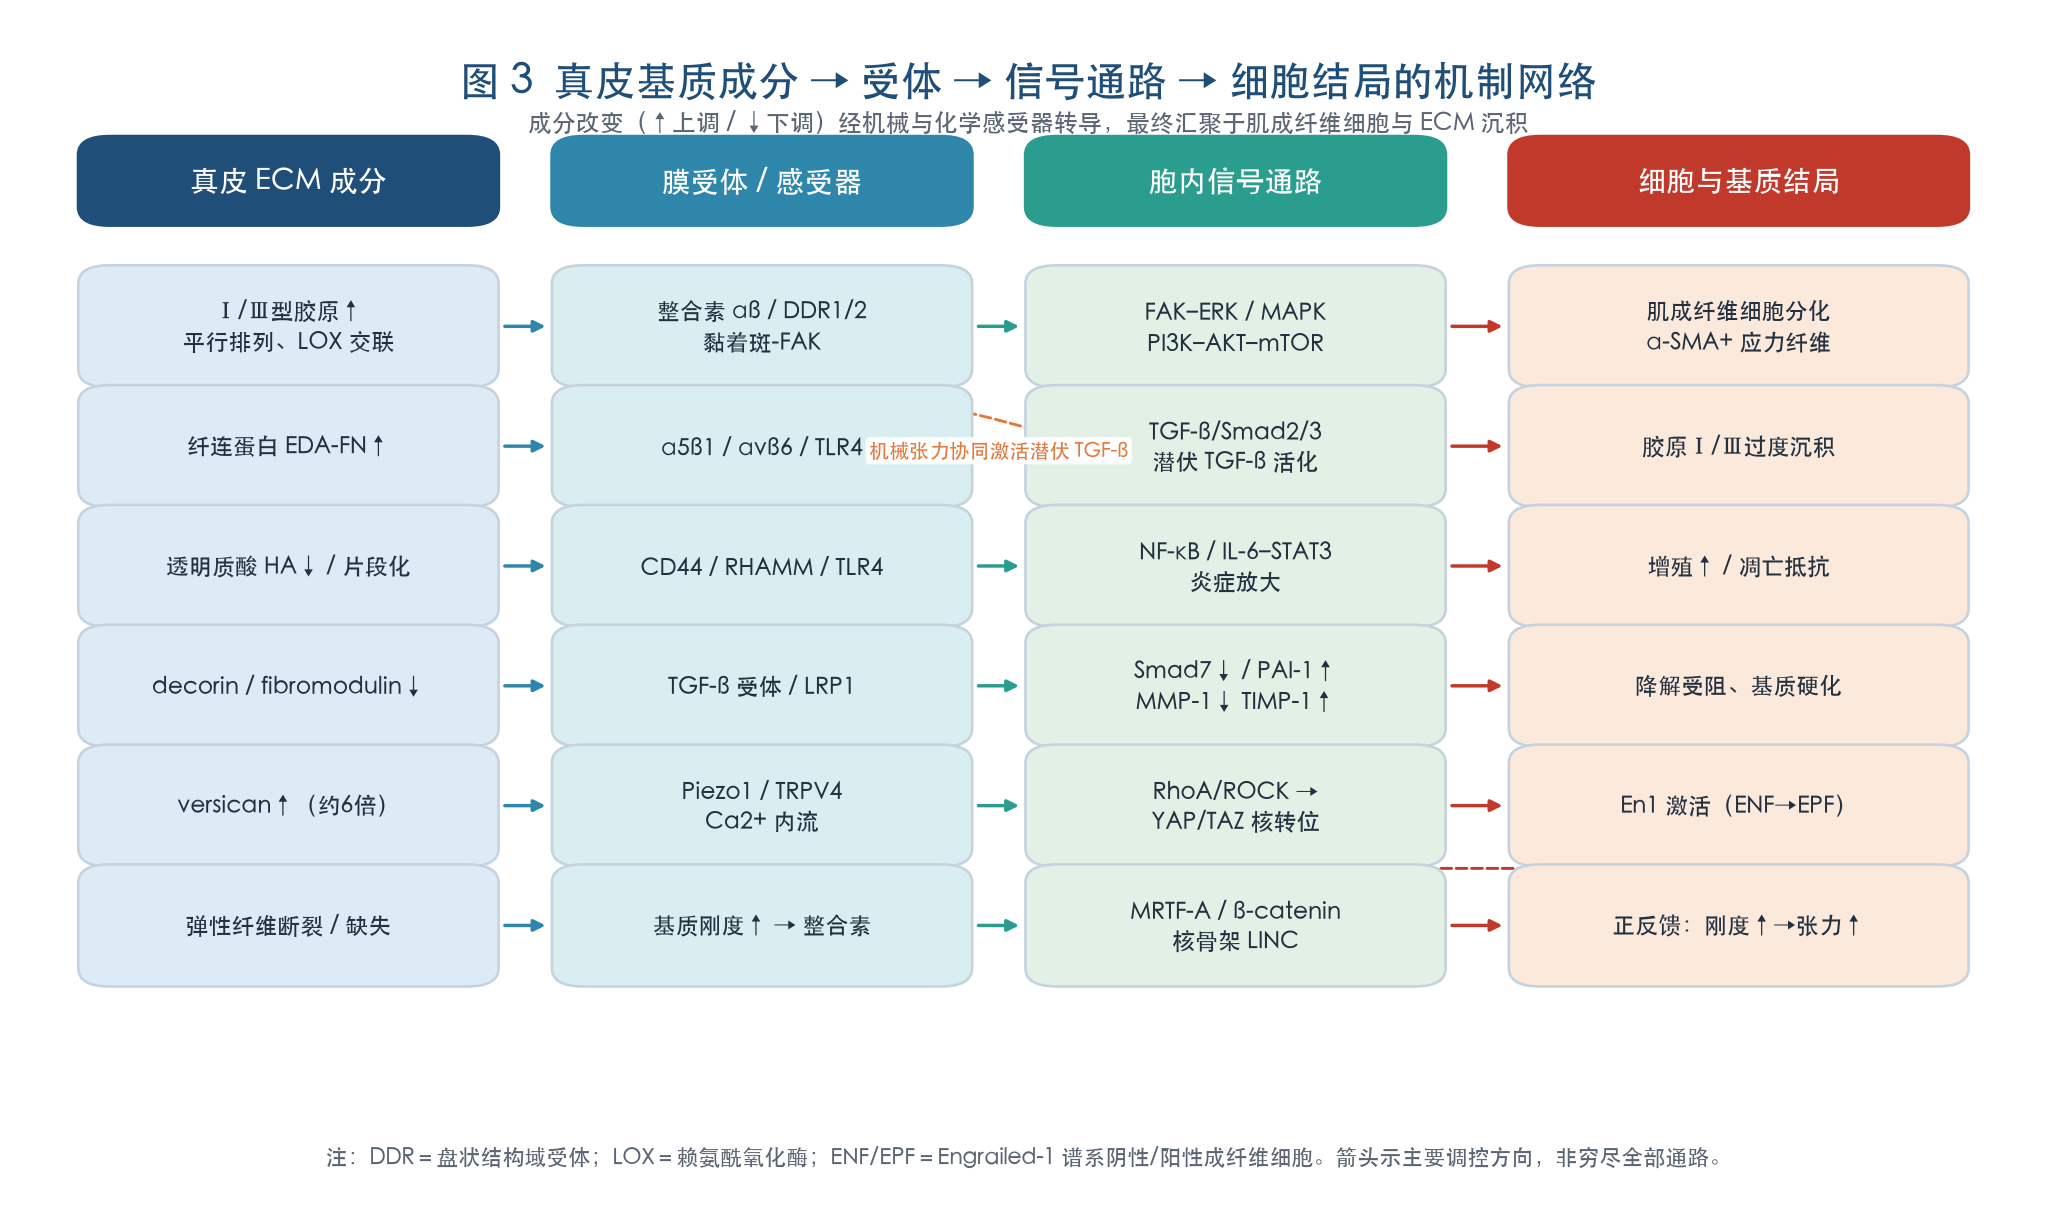
图 3 真皮基质成分经膜受体与胞内通路影响细胞结局的机制网络。左列为成分改变,中列为感受器与通路,右列为细胞与基质结局。
第六章 真皮细胞成分:谁在制造瘢痕
6.1 成纤维细胞异质性与谱系可塑性
“成纤维细胞”是一个集合名词。近二十年,尤其是 2021 年后单细胞转录组研究,把它拆解为多个功能不同的亚群(PMID 34140509;PMID 35667795《Fibroblast Heterogeneity in Healthy and Wounded Skin》;PMID 37646029《Fibroblasts — the cellular choreographers of wound healing》;PMID 39062158)。可归纳为四条互相叠加的异质性轴:
胚胎起源轴:颅面真皮源自神经嵴,背侧源自皮肌节,腹侧躯干与肢体源自侧板中胚层。这解释了不同部位瘢痕倾向的发育学基础。
层次轴:乳头层成纤维细胞细长、增殖能力强、分泌较多 decorin 与胶原酶;网状层成纤维细胞铺展、α-SMA 与胶原合成更高、胶原酶更低、versican 更高;真皮-皮下交界另有一群参与 ECM 组织与重塑的细胞(PMID 39519131 所引文献 65、76–85)。
转录亚群轴:人真皮单细胞研究区分出分泌型乳头层、分泌型网状层、促炎型与间充质型四类;Tabib 等以 SFRP2⁺CD26⁺ 与 FMO1⁺ 等标记区分主要亚群,前者位于胶原束间并高表达胶原Ⅰ、fibrillin 与纤连蛋白;POSTN 高表达的间充质亚群与瘢痕疙瘩关系最密切(PMID 39519131 所引文献 93、96、97、179)。2023 年的机器学习结合单细胞分析进一步尝试以表达谱预测纤维化相关亚群(PMID 37986676)。
活化状态轴:2021 年 Science 研究提出的 ENF→pEPF 转化说明成纤维细胞身份并非固定:机械张力经经典机械转导通路驱动 En1 激活,使约 40%–50% 的瘢痕成纤维细胞来自出生后的谱系转换;抑制 YAP 或敲除 YAP 可保留 ENF 的再生性表型(PMID 33888614)。2025–2026 年的后续工作进一步尝试以靶向沉默 En1 重编程促纤维化成纤维细胞(PMID 40708196),并提出”成纤维细胞谱系转换是纤维化疾病发育起源”的框架(PMID 41823836,2026)。
此外,HTS 乳头层中被报道存在 CD39⁺ 成纤维细胞增多,其数量与病变严重度正相关,可能通过分泌 IL-11 驱动下方 α-SMA⁺ 肌成纤维细胞产生 ECM(PMID 39519131 所引文献 126、127)。IL-11 属于 IL-6 家族,经 ERK 依赖途径促纤维化,近年被认为是比 IL-6 更”专一”的抗纤维化靶点。
6.2 肌成纤维细胞:分化的门槛与退出失败
肌成纤维细胞表达 α-SMA 应力纤维,兼具成纤维细胞的合成能力与平滑肌样的收缩能力,是创面收缩与 ECM 沉积的执行者。其分化需要三个条件同时具备:TGF-β1 信号、EDA-FN/α5β1 提供的基质许可、以及足够的机械张力或基质刚度(PMID 26681260;PMID 34439762)。在生理性瘢痕中,重塑完成后肌成纤维细胞经凋亡清除,形成细胞较少的成熟瘢痕;HTS 中这一凋亡程序失败,α-SMA⁺ 细胞持续存在、胶原持续合成(PMID 39519131)。
“退出失败”的机制涉及线粒体凋亡通路、存活信号(PI3K/AKT/mTOR、FAK)持续激活、氧化应激与自噬改变(PMID 41424791,2025 年 PI3K/AKT/mTOR 与瘢痕重塑综述;PMID 42936795,2026 年关于自噬-溶酶体证据的评述)。2025 年亦有综述把真皮成纤维细胞衰老(senescence)与 SASP 表型纳入持续纤维化的解释框架(PMID 40868181)。这些发现共同提示:治疗不仅要阻止分化,还要促进已活化细胞的清除或去活化。
6.3 免疫细胞:炎症强度与时相决定纤维化倾向
巨噬细胞:M1 型在早期清除病原与碎片并释放 IL-1β、IL-6、IL-12、TNF-α;M2 型随后分泌 IL-10、TGF-β、VEGF、IGF-1 推动增殖与血管生成。HTS 中巨噬细胞数量增加、M1 占优且向 M2 极化延迟(PMID 39519131 所引文献 104、108、109)。2026 年综述提出 POSTN⁺ 成纤维细胞与 SPP1⁺ 巨噬细胞构成促纤维化的双向生态位(PMID 42138176);同年亦有以 A 型肉毒毒素调控巨噬细胞功能的新假说(PMID 42621324)。
肥大细胞:通过 TLR 被 DAMP/PAMP 激活后释放组胺与类胰蛋白酶,诱导成纤维细胞分泌 bFGF、FGF-7 并促进其增殖;与成纤维细胞间的 connexin-43 缝隙连接可调控 α-SMA 表达,敲低 connexin-43 能阻断肌成纤维细胞转化(PMID 39519131;比较性综述指出 HTS/瘢痕疙瘩中 connexin-43 与缝隙连接通讯下降,可能使成纤维细胞失去来自邻近细胞的抑制与凋亡信号)。
T 细胞与树突细胞:中性粒细胞与 T 细胞在 HTS 中显著浸润;IL-4/IL-13 促进 M2 极化与胶原合成;Langerin⁺ 树突细胞经 TGF-β1 参与皮肤纤维化的报道见于 2025 年研究(PMID 41180114)。2025–2026 年的免疫微环境综述与难治性瘢痕免疫失调综述进一步把慢性炎症视为纤维化的”维持器”而非单纯始动因素(PMID 40718487;PMID 42121883)。
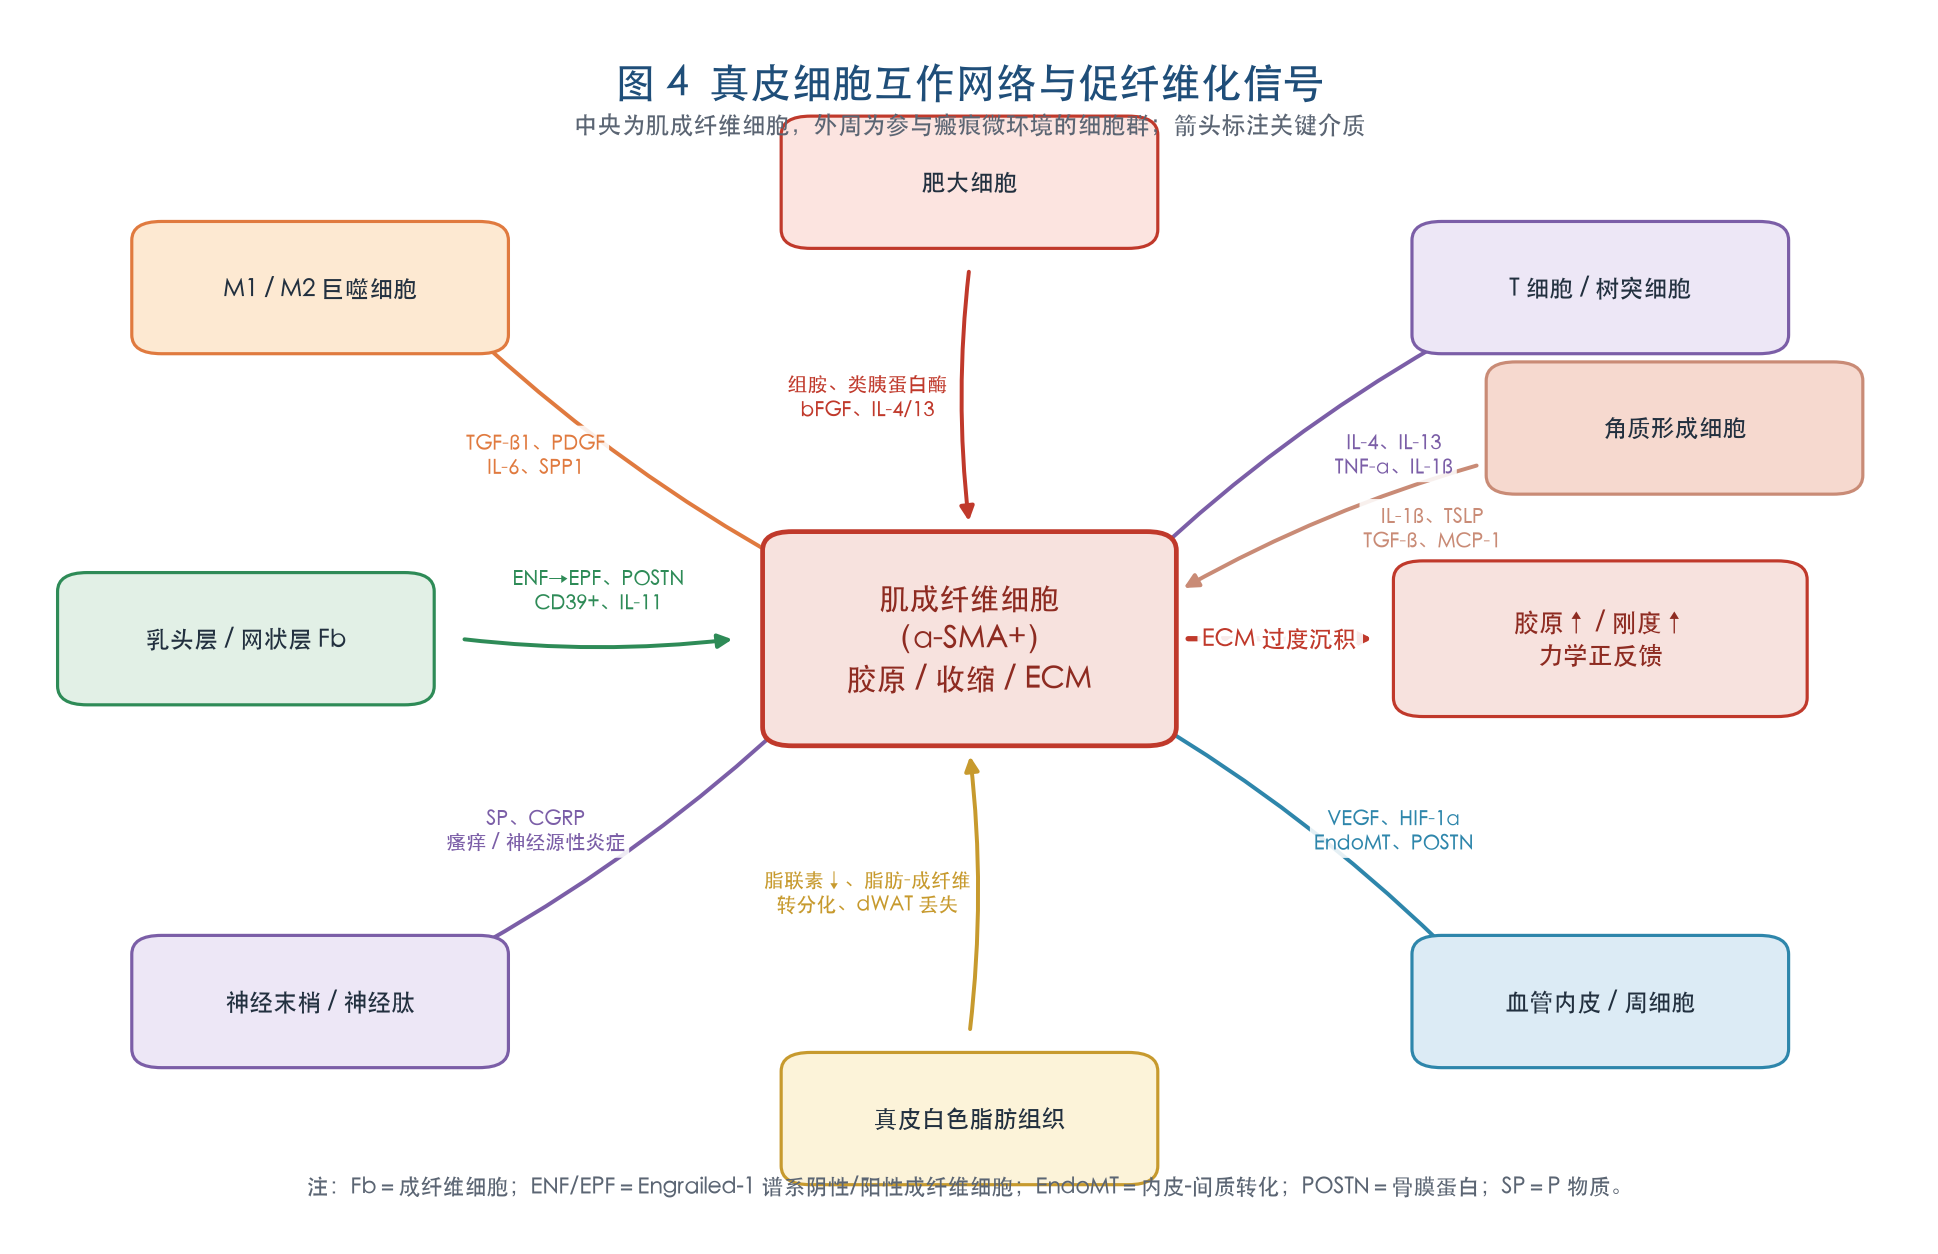
图 4 真皮细胞互作网络与促纤维化信号。中央为肌成纤维细胞,外周为参与瘢痕微环境的细胞群。
6.4 血管内皮、周细胞与缺氧
HTS 血管密度高于生理性瘢痕;瘢痕疙瘩中内皮细胞与平滑肌细胞增多、血管生成活跃(PMID 39519131 所引文献 182、183)。内皮细胞 TGF-β 信号激活被认为参与瘢痕疙瘩的广泛血管生成,TGF-β 还可经 POSTN 启动内皮细胞的间充质活化(EndoMT),把”血管”直接接入纤维化网络(PMID 39519131 所引文献 178、181;PMID 42787495,2026 年内皮系统失调驱动瘢痕疙瘩的研究)。
缺氧则通过 HIF-1α 把血管不足与纤维化连接起来:HIF-1α 促进 VEGF、LOX、胶原与糖酵解重编程,2023 年综述总结了 HIF-1α 通路在瘢痕疙瘩发生发展中的作用(PMID 37636362),2026 年又报道 HIF-1α/NREP 轴促进 HTS 成纤维细胞增殖(PMID 42332798)。这形成一个略显矛盾但合理的循环:血管数量虽多,但结构异常、灌注低效,局部仍处缺氧状态,反而强化促纤维化信号。
6.5 真皮白色脂肪组织(dWAT)
dWAT 是独立于皮下脂肪的真皮内脂肪层,与毛囊周期、免疫防御与创面修复密切相关。系统性硬化与皮肤纤维化研究显示 dWAT 丢失与脂肪细胞-成纤维细胞转分化相伴(PMID 28800024;PMID 28138823);2022 年与 2024 年的专题综述进一步把 dWAT 定义为创面愈合的新调节者,指出其丢失可促进真皮纤维化(PMID 34608987;PMID 39717110;PMID 38465261)。脂联素受体激动剂在动物模型中可减轻皮肤纤维化(PMID 30087356)。2026 年的研究还提示脂肪细胞-内皮细胞通讯破坏是纤维化驱动因素(PMID 42936212)。
对瘢痕而言,dWAT 的意义在于:深真皮损伤往往同时破坏脂肪层,失去脂肪细胞分泌的抗纤维化与促血管正常化信号,并使修复界面直接与皮下纤维间隔相接,从而形成更深、更硬的瘢痕粘连。
6.6 神经、神经肽与瘙痒
早在 2007 年即有综述提出”理解增生性瘢痕需要神经视角”(PMID 17727464)。HTS 常伴瘙痒与疼痛,其机制涉及再生神经纤维密度异常、P 物质(SP)与降钙素基因相关肽(CGRP)释放、肥大细胞脱颗粒构成的神经源性炎症环路,以及机械感受器与伤害感受器在硬化基质中的持续激活。2025 年关于神经调控在皮肤创面愈合中作用的综述(PMID 39872039)与烧伤瘢痕疼痛机制综述(PMID 41070147)进一步把神经-免疫-纤维化轴纳入框架。压力治疗可能通过环形压力降低表面张力、抑制伤害感受器活动与神经肽释放而部分缓解症状(吕开阳、李亚舒,2026)。
6.7 附属器与细胞外囊泡
成人瘢痕中毛囊、皮脂腺与汗腺永久缺失,既造成功能(排汗、皮脂屏障)与外观缺陷,也意味着局部再生细胞库的丧失。Wnt/β-catenin 通路激活与伤口诱导毛囊新生是”无瘢痕再生”研究的核心指标之一(PMID 42074048,2026 年 Wnt 跨皮肤微型器官综述;PMID 41810075,2026 年瘢痕抑制的机制与设计综述)。2026 年的 En1 与汗腺发育/再生研究(PMID 42903334)也提示汗腺再生与成纤维细胞谱系状态相关。
细胞外囊泡(EV)是 2025–2026 年最活跃的新方向:EV 介导角质形成细胞、巨噬细胞、内皮细胞与成纤维细胞间 miRNA/蛋白传递,调控炎症与胶原沉积(PMID 42306298;PMID 42798851;PMID 41612955)。它们既是机制拼图的新节点,也是无细胞治疗的候选载体。
表 5 真皮主要细胞群及其促纤维化机制
| 细胞群 | 定位/标记 | 主要介质 | 对瘢痕增生的作用 |
|---|---|---|---|
| 乳头层成纤维细胞 | 乳头真皮,decorin 高、胶原酶高 | Ⅲ型胶原、MMP | 相对”抗纤维化”,增殖能力强 |
| 网状层成纤维细胞 | 网状真皮,α-SMA/versican 高 | TGF-β1、Ⅰ型胶原 | 主要 ECM 来源,约 72.7% TGF-β1 出自深部网状层 |
| ENF / pEPF | 深真皮;En1 谱系阴性→阳性 | En1、YAP 靶基因 | 力学驱动谱系转换,贡献 40%–50% 瘢痕成纤维细胞 |
| 间充质型成纤维细胞 | POSTN⁺ | POSTN、胶原、CTGF | 瘢痕疙瘩主要贡献亚群,促交联与血管生成 |
| CD39⁺ 成纤维细胞 | HTS 乳头层 | IL-11 | 与病变严重度正相关,驱动 α-SMA⁺ 细胞产 ECM |
| 肌成纤维细胞 | α-SMA⁺ 应力纤维 | 胶原、LOX、收缩力 | 收缩与沉积;HTS 中凋亡失败 |
| M1 / M2 巨噬细胞 | 创面浸润 | IL-1β/IL-6/TNF-α;IL-10/TGF-β | 炎症放大与增殖转换;极化延迟促纤维化 |
| SPP1⁺ 巨噬细胞 | 纤维化生态位 | 骨桥蛋白、TGF-β | 与 POSTN⁺ 成纤维细胞形成促纤维化双向回路 |
| 肥大细胞 | 血管周围、神经末梢附近 | 组胺、类胰蛋白酶、IL-4/13 | 促成纤维细胞增殖、瘙痒、connexin-43 相关分化 |
| 内皮细胞 / 周细胞 | 微血管 | VEGF、HIF-1α、POSTN | 血管生成、缺氧、EndoMT |
| 脂肪细胞(dWAT) | 真皮-皮下交界 | 脂联素、脂质介质 | dWAT 丢失促进纤维化;脂肪-成纤维转分化 |
| 神经末梢 | 乳头层与附属器周围 | SP、CGRP | 神经源性炎症、瘙痒/疼痛、血管调节 |
| 角质形成细胞 | 表皮/DEJ | IL-1β、TSLP、TGF-β、MCP-1 | 基底膜未重建时持续激活真皮炎症 |
第七章 力学微环境:真皮成分影响瘢痕的核心通路
7.1 张力的来源与时空分布
作用于创面的机械张力由动态外力(肌肉收缩、关节活动、表情、呼吸、体位)与静态内力(真皮内胶原/弹性纤维预拉伸、组织含水量、瘢痕自身挛缩)叠加而成。其分布高度不均:胸骨切口下段、肩背、四肢伸侧与关节周围承受更高张力;切口与 RSTL 夹角越大,创缘所受剪切与横向牵张越强。组织学上,网状真皮的粗大胶原束是主要承力结构,这解释了为什么减张必须作用在真皮深层而非表皮。
一个近年被明确的重要时相特征是:皮肤受伤后局部张力先下降,进入瘢痕重塑期后逐步回升。闭合前(止血、炎症、增殖期)张力下降本身是激活静息成纤维细胞、促其增殖迁移的信号;闭合后(重塑期)张力回升则驱动细胞退出增殖周期、转向高效合成与重塑 ECM,并诱导类 HTS 组织形成、细胞密度增加与凋亡减少,其机制涉及 TGF-β 与 YAP 等机械通路(吕开阳、李亚舒,2026)。2025 年的中文综述亦指出,创面局部减张应贯穿愈合全过程、至少持续 3 个月。
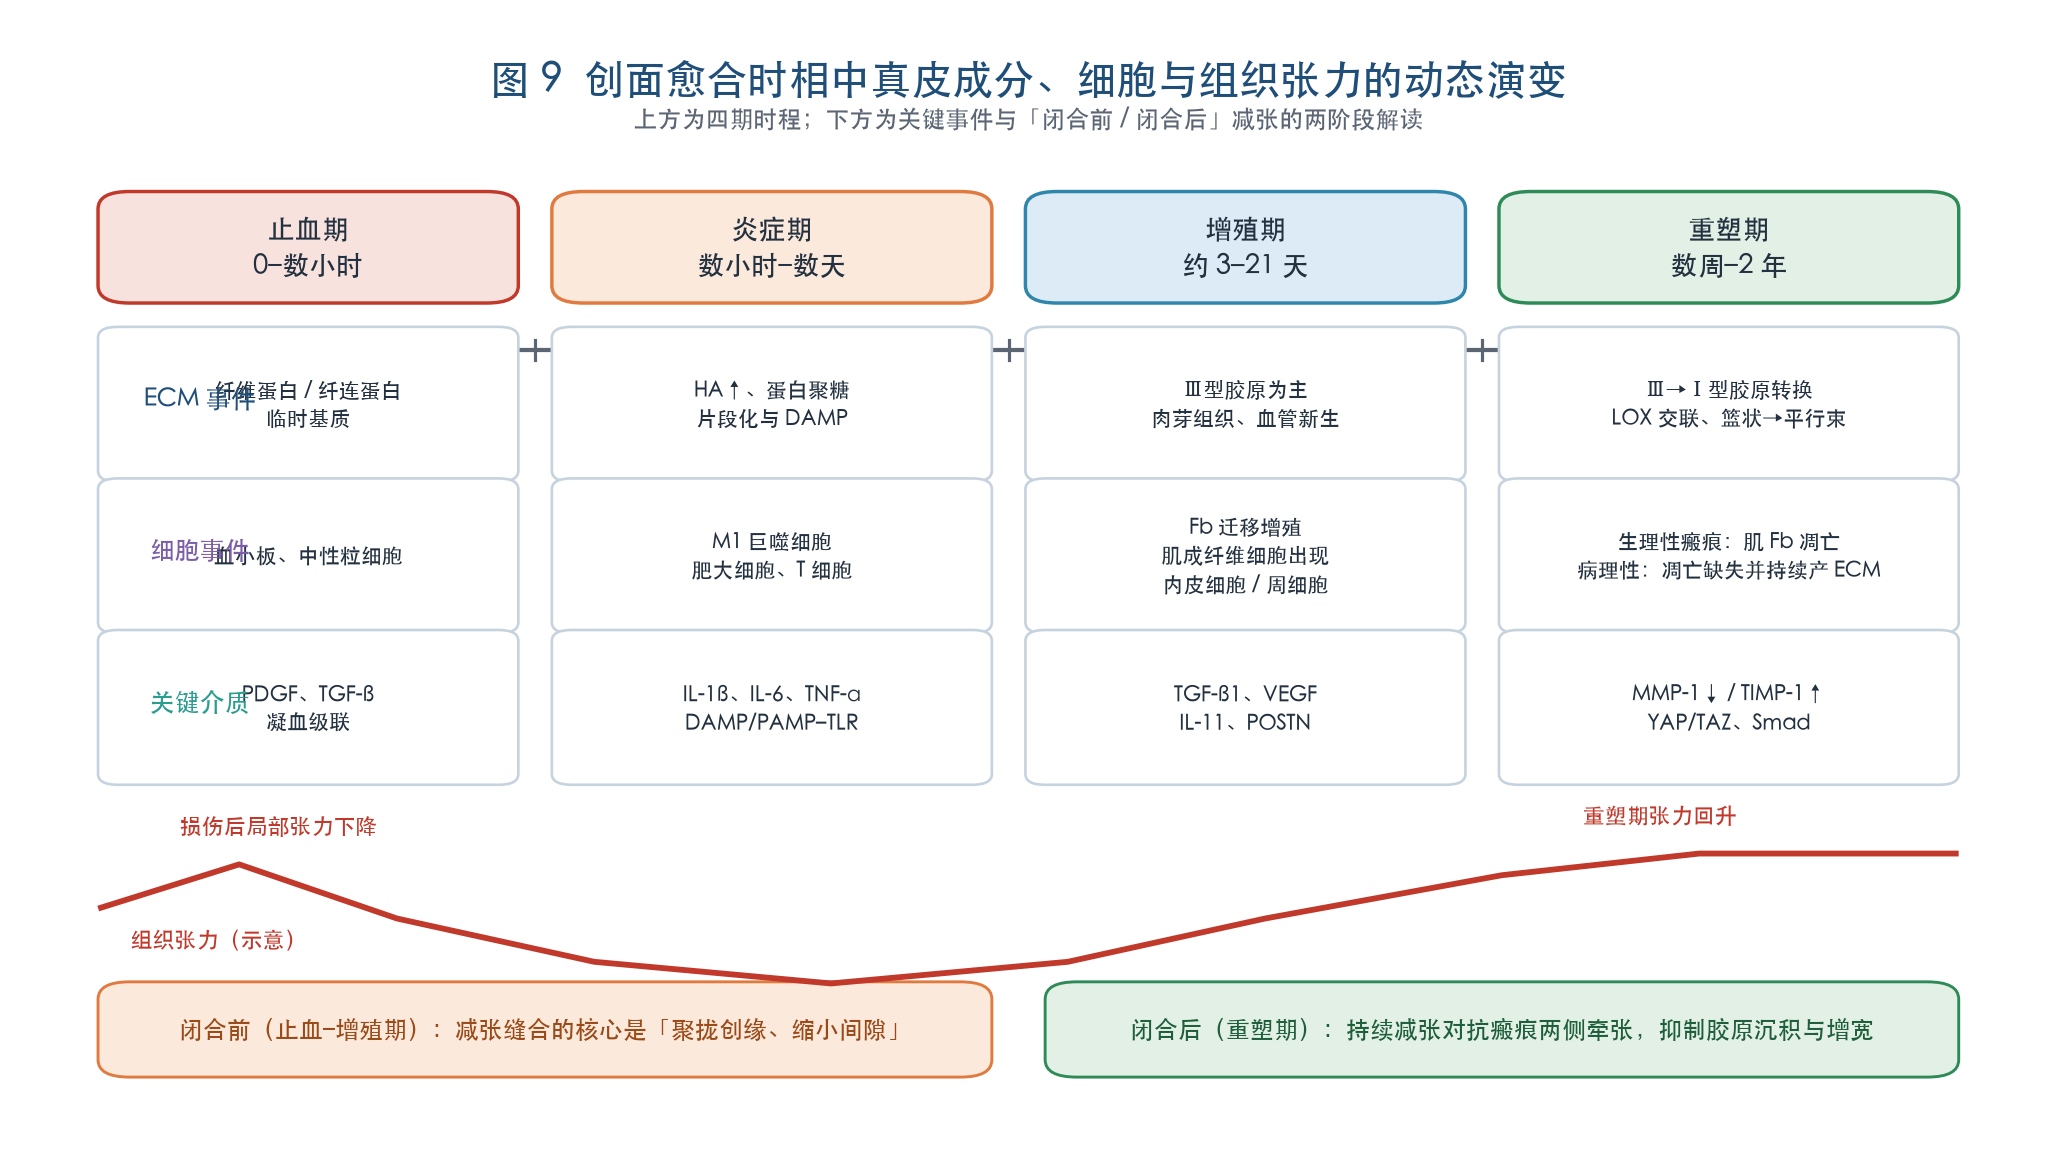
图 9 创面愈合时相中真皮成分、细胞与组织张力的动态演变,以及”闭合前聚拢—闭合后持续减张”的两阶段解读。
7.2 机械感受器:把物理力翻译成化学信号
细胞膜上存在多类机械感受装置,它们在同一细胞内并行工作、彼此串扰:
整合素-黏着斑:整合素识别 ECM 中的 RGD、YIGSR、DGEA 等序列并聚集,胞内与 talin、vinculin、paxillin 等形成黏着斑,把 ECM 与 F-actin 相连。黏着斑中的 FAK/Src 复合物激活下游 mTOR、ROCK 与 MAPK,促进成纤维细胞增殖、迁移与 TGF-β1 表达;FAK 还促进 MCP-1、IL-4、IL-13 分泌,募集巨噬细胞与 T 细胞,把力学信号接到炎症通路上(PMID 39519131;赵倩楠等,2021;吕开阳、李亚舒,2026)。
钙黏蛋白-β-catenin:细胞间黏附连接经 β-catenin/α-catenin/vinculin 连到肌动蛋白骨架;机械扰动使复合物解离、β-catenin 入核,直接启动纤连蛋白、MMP 与其他促纤维化基因。钙黏蛋白-11 在成纤维细胞与巨噬细胞表面表达,可促进 TGF-β 表达(吕开阳、李亚舒,2026)。
机械敏感性离子通道:Piezo1、TRPV4 与 L 型电压门控钙通道介导 Ca²⁺ 内流,启动钙依赖性促纤维化途径并影响肌成纤维细胞分化。循环机械拉伸可增加人皮肤成纤维细胞 Piezo1 表达及 Piezo1 介导的钙内流,皮内注射 Piezo1 抑制剂 GsMTx4 可减轻大鼠张力诱导的 HTS(PMID 33649312,2021;PMID 37752116、38267432,2023–2024 年基质刚度经 Piezo1/Wnt2 通路促进皮肤纤维化;PMID 38541702,2024 年 Piezo1 综述)。
生长因子受体与 GPCR:机械刺激可反式激活 EGFR、TGF-β 受体等;整合素 αvβ6/αvβ8 牵拉潜伏 TGF-β 复合物释放活性配体,是力学-化学耦合最直接的例证。
7.3 胞内传导与核力学:细胞骨架是”第二信使”
黏着斑捕获的力经应力纤维(F-actin 与非肌肌球蛋白Ⅱ)在胞内传递。RhoA/ROCK 通路通过激活肌球蛋白Ⅱ、抑制丝切蛋白促进肌动蛋白聚合,增强骨架收缩与稳定性;Piezo1 激活亦可促进肌动蛋白聚合。骨架张力进一步经 LINC 复合体(SUN/nesprin)、核纤层蛋白 A 传至核膜,引起核变形、核孔复合物通透性改变与染色质构象重塑,从而调控机械敏感转录因子(吕开阳、李亚舒,2026;PMID 36017082,2022 年皮肤生物力学综述)。
这一层认识把”细胞核”确立为机械感应与应答中心,也说明为何同样的 TGF-β1 浓度在软、硬基质上产生截然不同的成纤维细胞反应。
7.4 核内效应器与通路交叉
主要效应器包括 YAP/TAZ–TEAD(Hippo 通路下游,硬基质与高张力时入核,启动促增殖与 ECM 重塑基因)、MRTF-A/SRF(受 G-actin/F-actin 比值调控,驱动 α-SMA 与细胞骨架基因)、β-catenin/TCF、NF-κB 与 AP-1。它们与经典化学通路广泛交叉:TGF-β/Smad2/3(Smad7 负反馈不足)、IL-6/IL-11–JAK/STAT3 与 ERK、PI3K/AKT/mTOR、Wnt/β-catenin、Hippo/ILK、MAPK p38/JNK、ROS/NRF2(PMID 36359821;PMID 41424791;PMID 35359592;PMID 34109179;PMID 38929890;PMID 42962377)。
其中 TGF-β 与机械张力之间存在双向协同:张力促进潜伏 TGF-β 活化与 TGF-β 受体表达;TGF-β1 又增强 α-SMA 应力纤维与细胞收缩力,使细胞对同一外力产生更强响应;TGF-β1 自诱导与肌成纤维细胞自分泌形成正反馈(赵倩楠等,2021)。
7.5 关键实验证据链
按证据类型归纳,可形成一条较完整的因果链:
1. 体外拉伸:以 0.1 Hz、10% 幅度循环拉伸人正常皮肤成纤维细胞 24 小时至 5 天,可使其呈现 HTS 成纤维细胞特征(赵倩楠等,2021;PMID 37143767)。
2. 基质刚度:硬基质促进 Piezo1-Wnt2/Wnt11 依赖的皮肤纤维化;软基质或低模量水凝胶减少瘢痕形成(PMID 37752116;PMID 38267432;PMID 42263899)。
3. 谱系开关:机械张力经 YAP 驱动深真皮 ENF 激活 En1;维替泊芬或成纤维细胞特异性 YAP 敲除阻断该过程并实现附属器与力学强度的再生性恢复(PMID 33888614)。
4. 离子通道干预:GsMTx4 抑制 Piezo1 减轻大鼠张力诱导的 HTS(PMID 33649312)。
5. 体内应力屏蔽:红色杜洛克猪模型中,应力屏蔽使组织学瘢痕面积较对照与高张力状态分别减少约 6 倍与 9 倍,并显著降低促纤维化标志物表达;Ⅰ期临床中腹部切口应力屏蔽显著改善瘢痕外观(Gurtner 等,2011,PMID 21606834);后续 embrace 装置的随机对照试验亦支持减张效果(PMID 24804638;PMID 24105084)。
6. 临床减张:一项随机对照试验中,未接受胶带减张者发生 HTS 的概率约为接受 12 周胶带减张者的 13.6 倍(转引自赵倩楠等,2021); tape 管理的系统评价亦支持其价值(PMID 34290886)。
7.6 力-化-生耦合的正反馈闭环
将上述证据整合,可以勾勒出一个自我强化的循环:机械张力/刚度↑ → 整合素、Piezo1、钙黏蛋白感知 → Rho/ROCK-应力纤维与 LINC 传力 → YAP/TAZ、MRTF-A、β-catenin 入核并与 TGF-β/Smad 协同 → 肌成纤维细胞分化、胶原/LOX/versican 合成↑、MMP 下降 → 基质更硬、弹性纤维更少、挛缩更强 → 局部应力进一步集中。吕开阳、李亚舒(2026)把它形式化为”机械-化学-生物学(力-化-生)动态耦合”框架:机械力调控化学信号的产生与传递,化学信号指导效应细胞的生物学行为,细胞行为又反过来重塑微环境的力学特性。
这一框架的实践含义是:干预不必局限于某一条分子通路,在闭环的任一环节切入都可能有效;但闭环一旦充分建立,单点、短时的干预容易被其余环节代偿,这构成了”早期、持续、多环节”干预策略的理论依据。
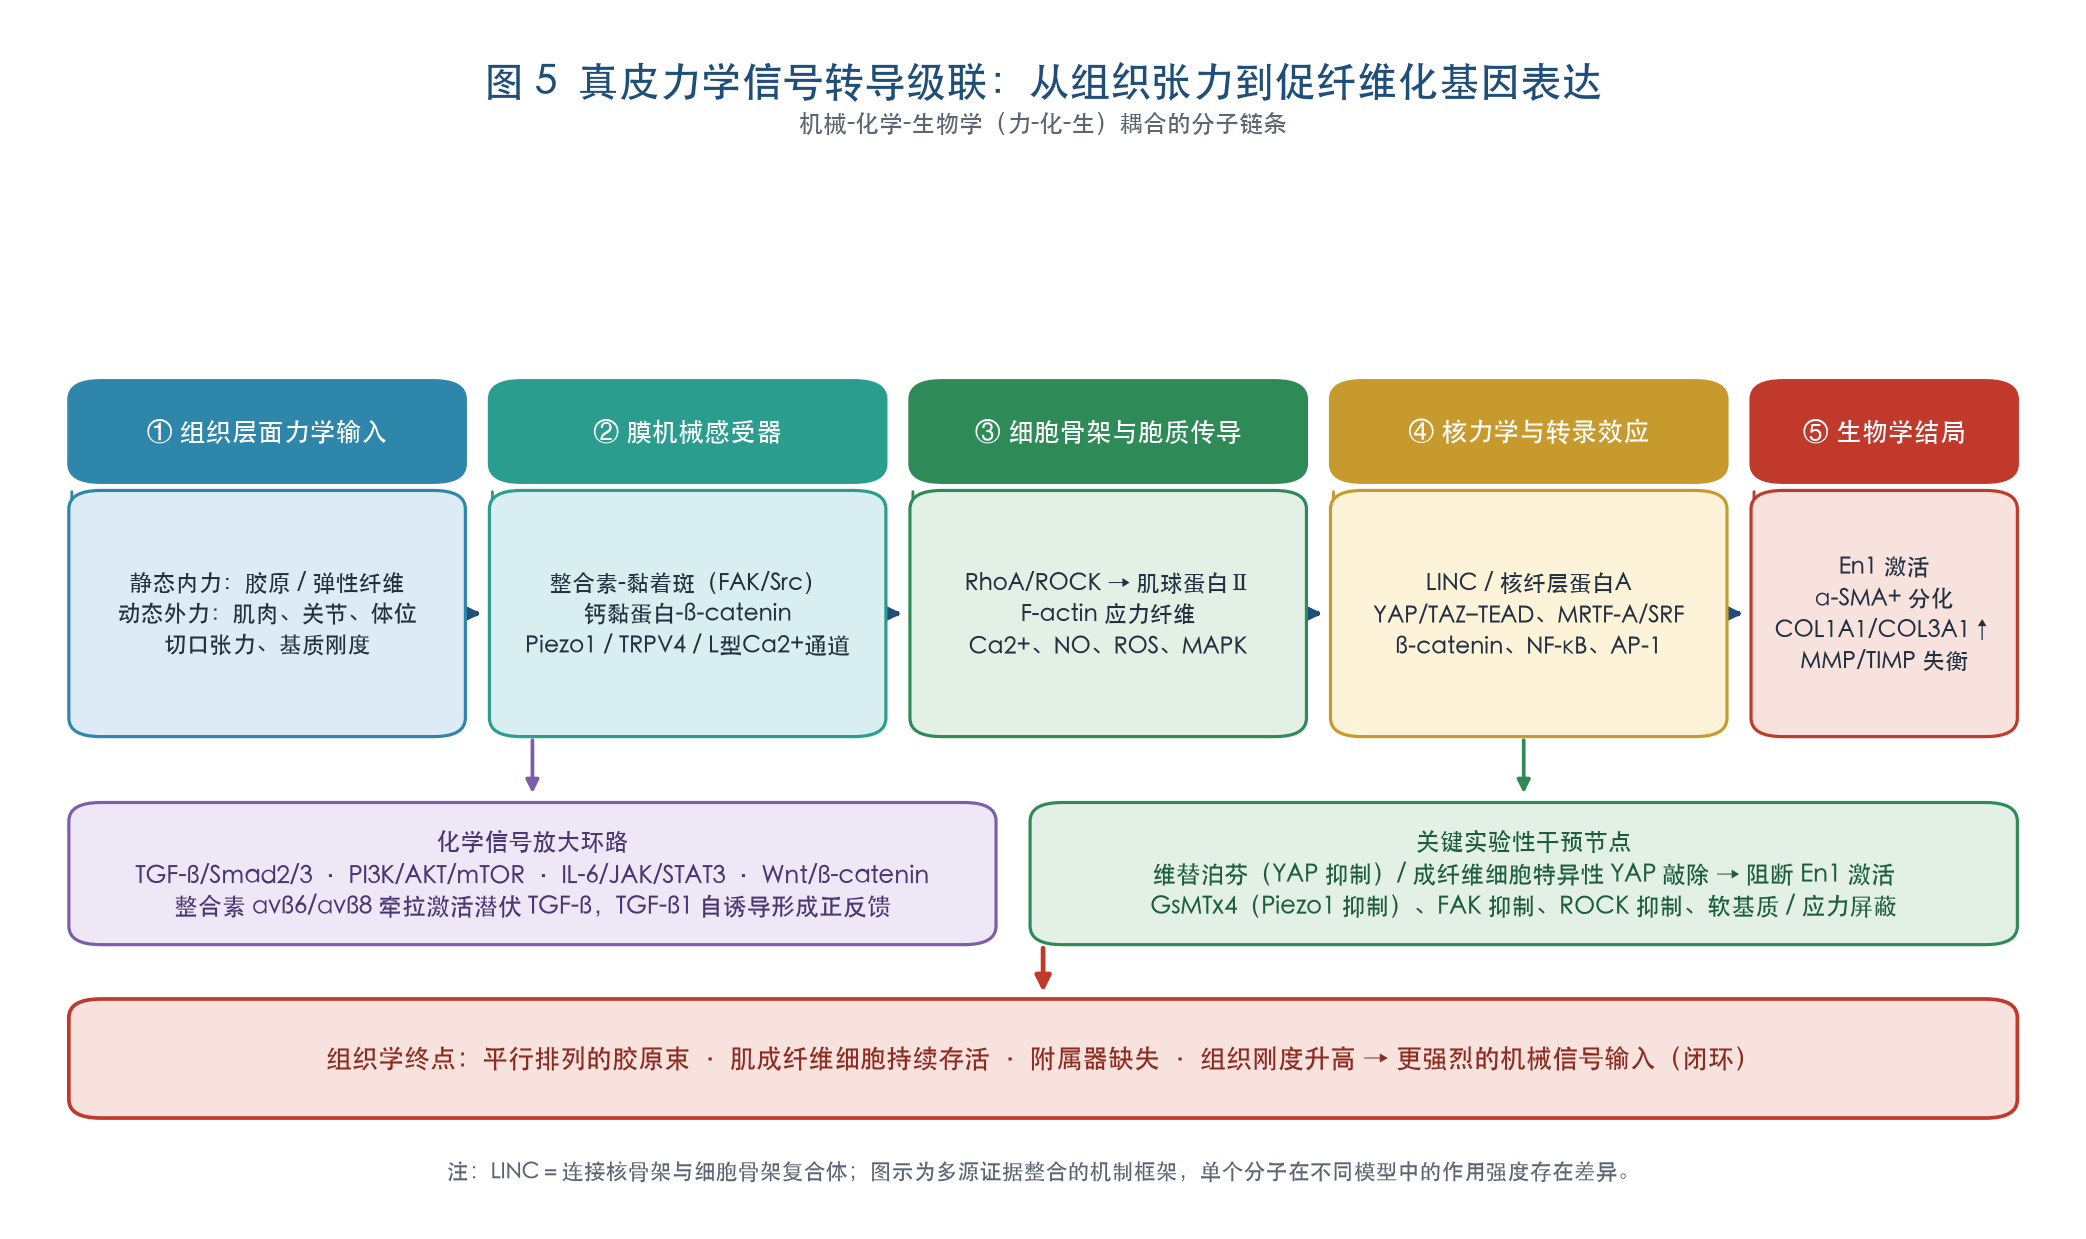
图 5 真皮力学信号转导级联:从组织张力、膜感受器、细胞骨架与核力学到促纤维化基因表达。
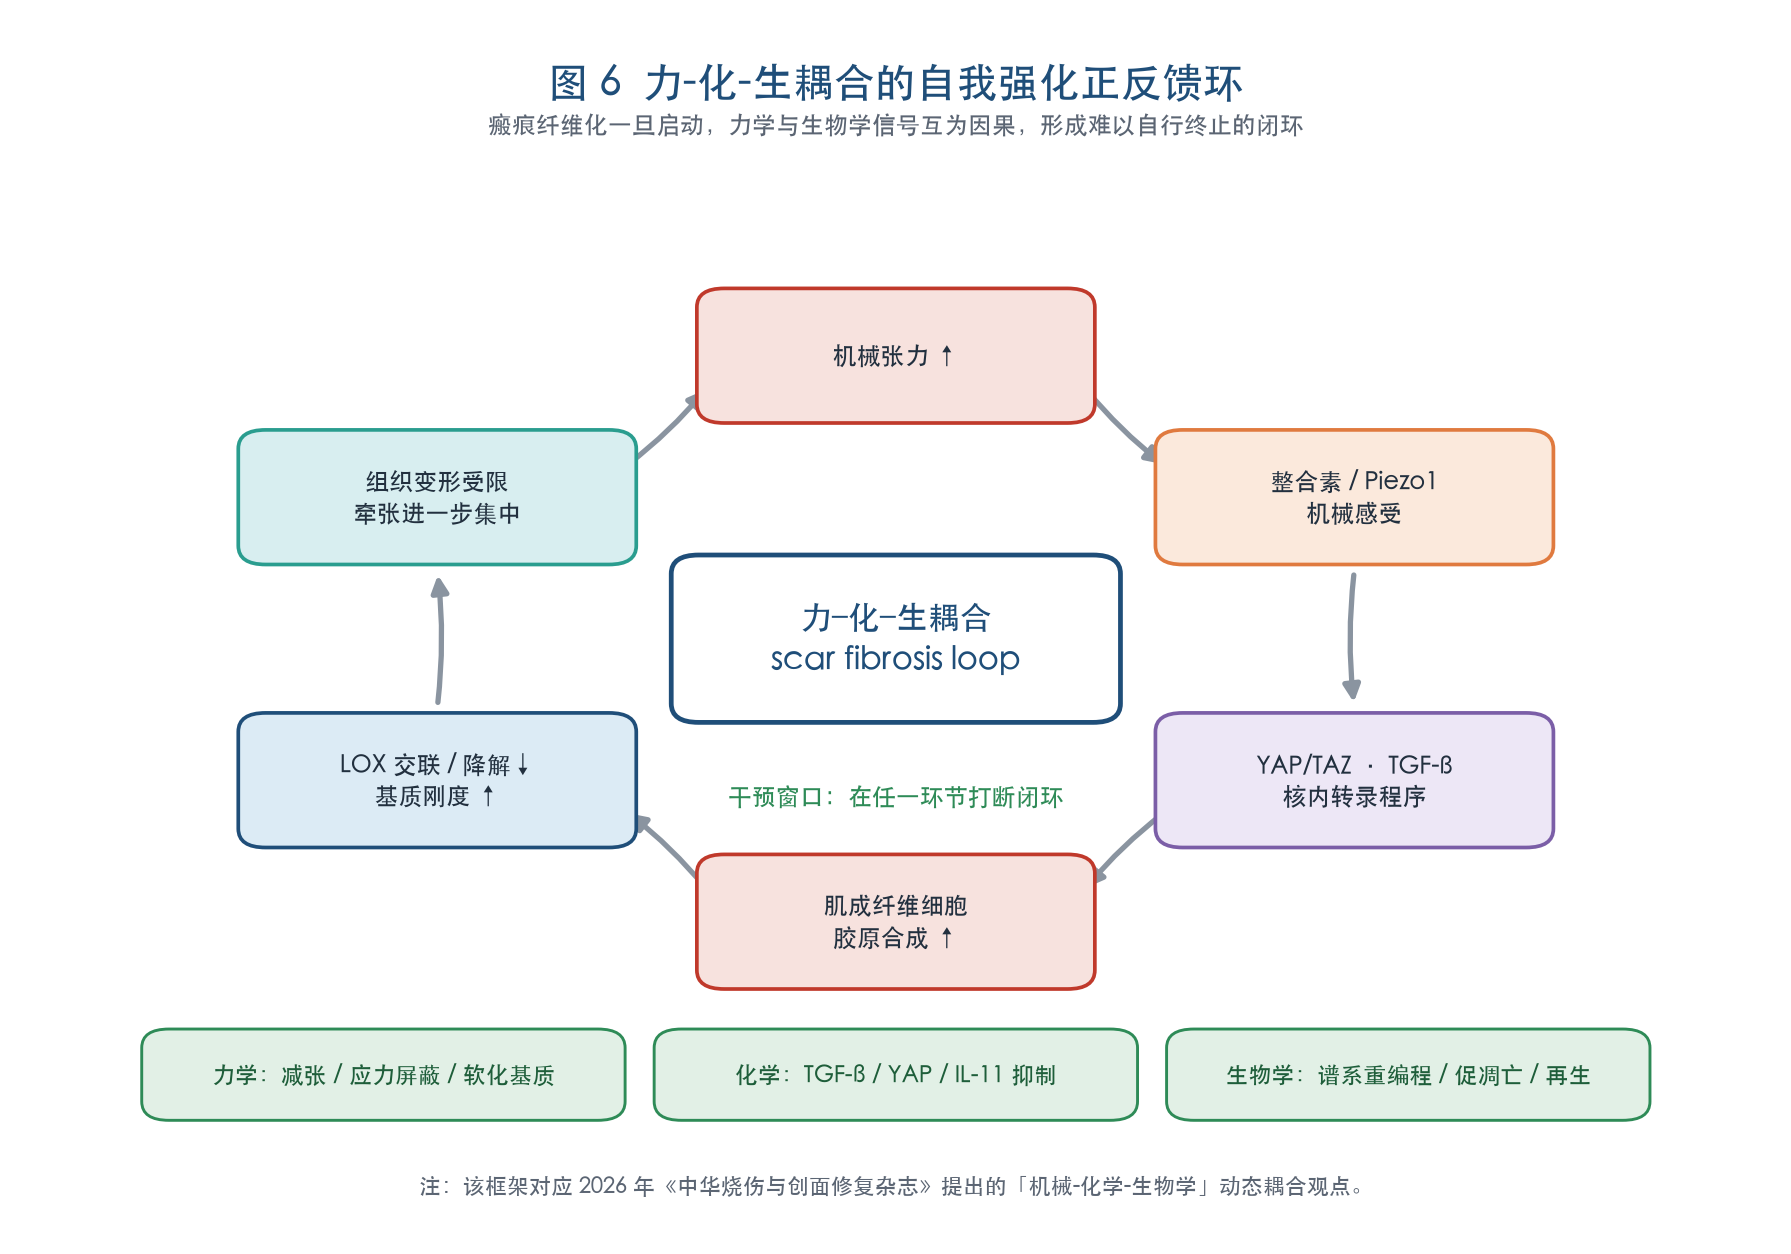
图 6 ”力-化-生”耦合的自我强化正反馈环,以及力学、化学、生物学三类干预窗口。
表 6 关键机械转导分子、证据类型与可干预性
| 层级 | 分子/结构 | 主要证据 | 实验性或临床干预 |
|---|---|---|---|
| 组织 | 静态/动态张力、RSTL | 切口张力与术后瘢痕宽度正相关;高张力部位好发 | 切口沿 RSTL、分层缝合、持续减张装置 |
| 组织 | 基质刚度 | 硬基质促成纤维细胞铺展与应力纤维;瘢痕疙瘩 Fb 对刚度敏感 | 低模量水凝胶、软化基质、LOX 抑制 |
| 膜 | 整合素 β1 / αvβ6/β8、黏着斑-FAK | HTS 中整合素 β1、FAK、ERK1/2 升高;抑制 FAK-ERK-MCP-1 减轻纤维化 | FAK 抑制剂、RGD 拮抗、减张 |
| 膜 | 钙黏蛋白-11 / β-catenin | 活化肌 Fb 中钙黏蛋白结合增强;β-catenin 入核 | 阻断细胞间力传导(研究中) |
| 膜 | Piezo1、TRPV4、L 型 Ca²⁺ 通道 | 拉伸↑Piezo1 与钙内流;刚度经 Piezo1-Wnt2 促纤维化 | GsMTx4、低频超声调节、通道抑制剂 |
| 胞质 | RhoA/ROCK、肌球蛋白Ⅱ、F-actin | 应力纤维是收缩与传力核心 | ROCK 抑制剂、细胞骨架调节剂 |
| 核 | LINC、核纤层蛋白 A、核孔 | 拉伸引起核变形、染色质重构 | 尚处基础研究阶段 |
| 核内 | YAP/TAZ–TEAD、MRTF-A/SRF | 张力驱动 ENF→EPF;YAP 抑制实现再生性愈合 | 维替泊芬、YAP 敲除/沉默(临床前) |
| 化学交叉 | TGF-β/Smad、PI3K/AKT/mTOR、IL-6/11-STAT3 | 与机械通路双向协同 | 中和抗体、TGF-β3、IL-11 阻断、mTOR 抑制剂 |
第八章 真皮深层与内减张:从机制到技术
8.1 为什么”着力点”应落在真皮深层
前述三条证据(TGF-β1 主要来自深部网状层、ENF 位于网状深真皮、网状胶原束承担主要张力)共同指向一个解剖学结论:决定瘢痕增生的力学与细胞事件集中在真皮深层。这恰是外科缝合中需要承担张力的层次。经皮缝合的减张作用很弱,绝大部分张力需由皮下/真皮内缝合承担;皮下埋没垂直褥式缝合(buried vertical mattress suture, BVMS)之所以成为经典,正因其可实现真皮深层对合并把线结埋于脂肪层(吕开阳、李亚舒,2026;皮肤性病诊疗学杂志,2025 年早期干预综述)。
从力学角度,深层锚定还有第二个好处:缝线路径距创缘较远、位于低应变的组织深部,可把水平牵张”绕开”正在重塑的瘢痕带,使创缘处于无张力甚至轻度负张力环境;而浅层缝合的力直接作用于新生上皮与浅真皮,易造成切割、针痕与表面凹陷。
8.2 时相再解读:闭合前”聚拢”与闭合后”持续减张”
吕开阳、李亚舒(2026,《中华烧伤与创面修复杂志》42(2):133-142,DOI: 10.3760/cma.j.cn501225-20251013-00424)提出,应把减张缝合的作用按切口闭合前、闭合后两阶段分别理解:
闭合前(止血、炎症、增殖期):局部张力本已下降,此时”减张缝合”的实质是促进两侧皮肤聚拢、缩小创面间隙、减轻组织损伤程度、降低对成纤维细胞迁移增殖与 ECM 沉积总量的需求,从而加快皮肤完整性恢复。
闭合后(重塑期):新生瘢痕组织局部张力开始回升,瘢痕有增生与扩张趋势,此时减张缝合才真正发挥”对抗两侧皮肤张力、减轻胶原沉积与变宽”的功效。
这一区分有直接的技术含义:常规可吸收缝线提供的减张一般仅持续约 1 个月;当缝线被一定程度吸收后,减张作用即不复存在,而瘢痕重塑期可长达数月至 1–2 年。因此”术中一次性减张”与”术后长期张力管理”之间存在明显的时间窗缺口。现实中使用的外用减张胶带/拉链、压力治疗等,正是为填补这一缺口,但各有局限。
8.3 内减张技术的机制学描述
上述 2026 年论文提出的方案可概括为”慢吸收缝线 + 原位回针 + 真皮深层拉紧”:切口闭合后缝线无法再经原切口进入皮肤内部,亦应尽量避免新切口,故采用原位进针、原位出针的原位回针技术;为延长作用时间,选用慢吸收的聚对二氧环己酮(PDO)光滑线或倒刺线。光滑线在每个跨越瘢痕的矩形缝合单元起针点(亦为收针点)拉紧打结,线结埋藏于真皮深层或皮下;倒刺线则可跨越瘢痕区作连续 W 形或多个矩形单元缝合,最后整体收紧,依靠倒刺与组织咬合维持两侧皮肤的持久收紧。
其进一步细化的水平埋没皮内缝合(HBIS)要点包括:使用 4-0/5-0 PDO 缝线并将缝合针前半部掰直以便在真皮深层均匀走行;以 11 号刀片作约 1 mm 小切口深达真皮深层或皮下作为埋线结入口;每个矩形缝合单元在切口两侧各设 2 个距切缘 < 0.5 cm 的进针点、同侧间距 0.5–1.0 cm;从同一出针点反穿形成水平缝线圈,最终线结埋入真皮层内。作者报告单次操作可维持约 3–5 周有效减张,并建议拆线后 1 个月内开始、每月 1 次、连续 3 次,以覆盖瘢痕形成早期的关键 3 个月;与 CO₂ 点阵激光联合应用可加速重塑。
机制解释:深层水平牵张被缝线承担后,创缘区的整合素-黏着斑-FAK、Piezo1 钙内流与细胞骨架张力下降,YAP/TAZ 核转位与 En1 激活受抑,TGF-β1/Smad 与 IL-6/IL-11 级联减弱,肌成纤维细胞分化与胶原净沉积减少,MMP/TIMP 更可能回到平衡;宏观上表现为瘢痕宽度变窄、硬度下降。CO₂ 点阵激光则通过阵列式微热损伤区诱导胶原与弹性纤维新生重塑、降低治疗区杨氏模量;若缺乏减张,高张力部位治疗后仍存在瘢痕变宽风险,故二者在机制上互补。
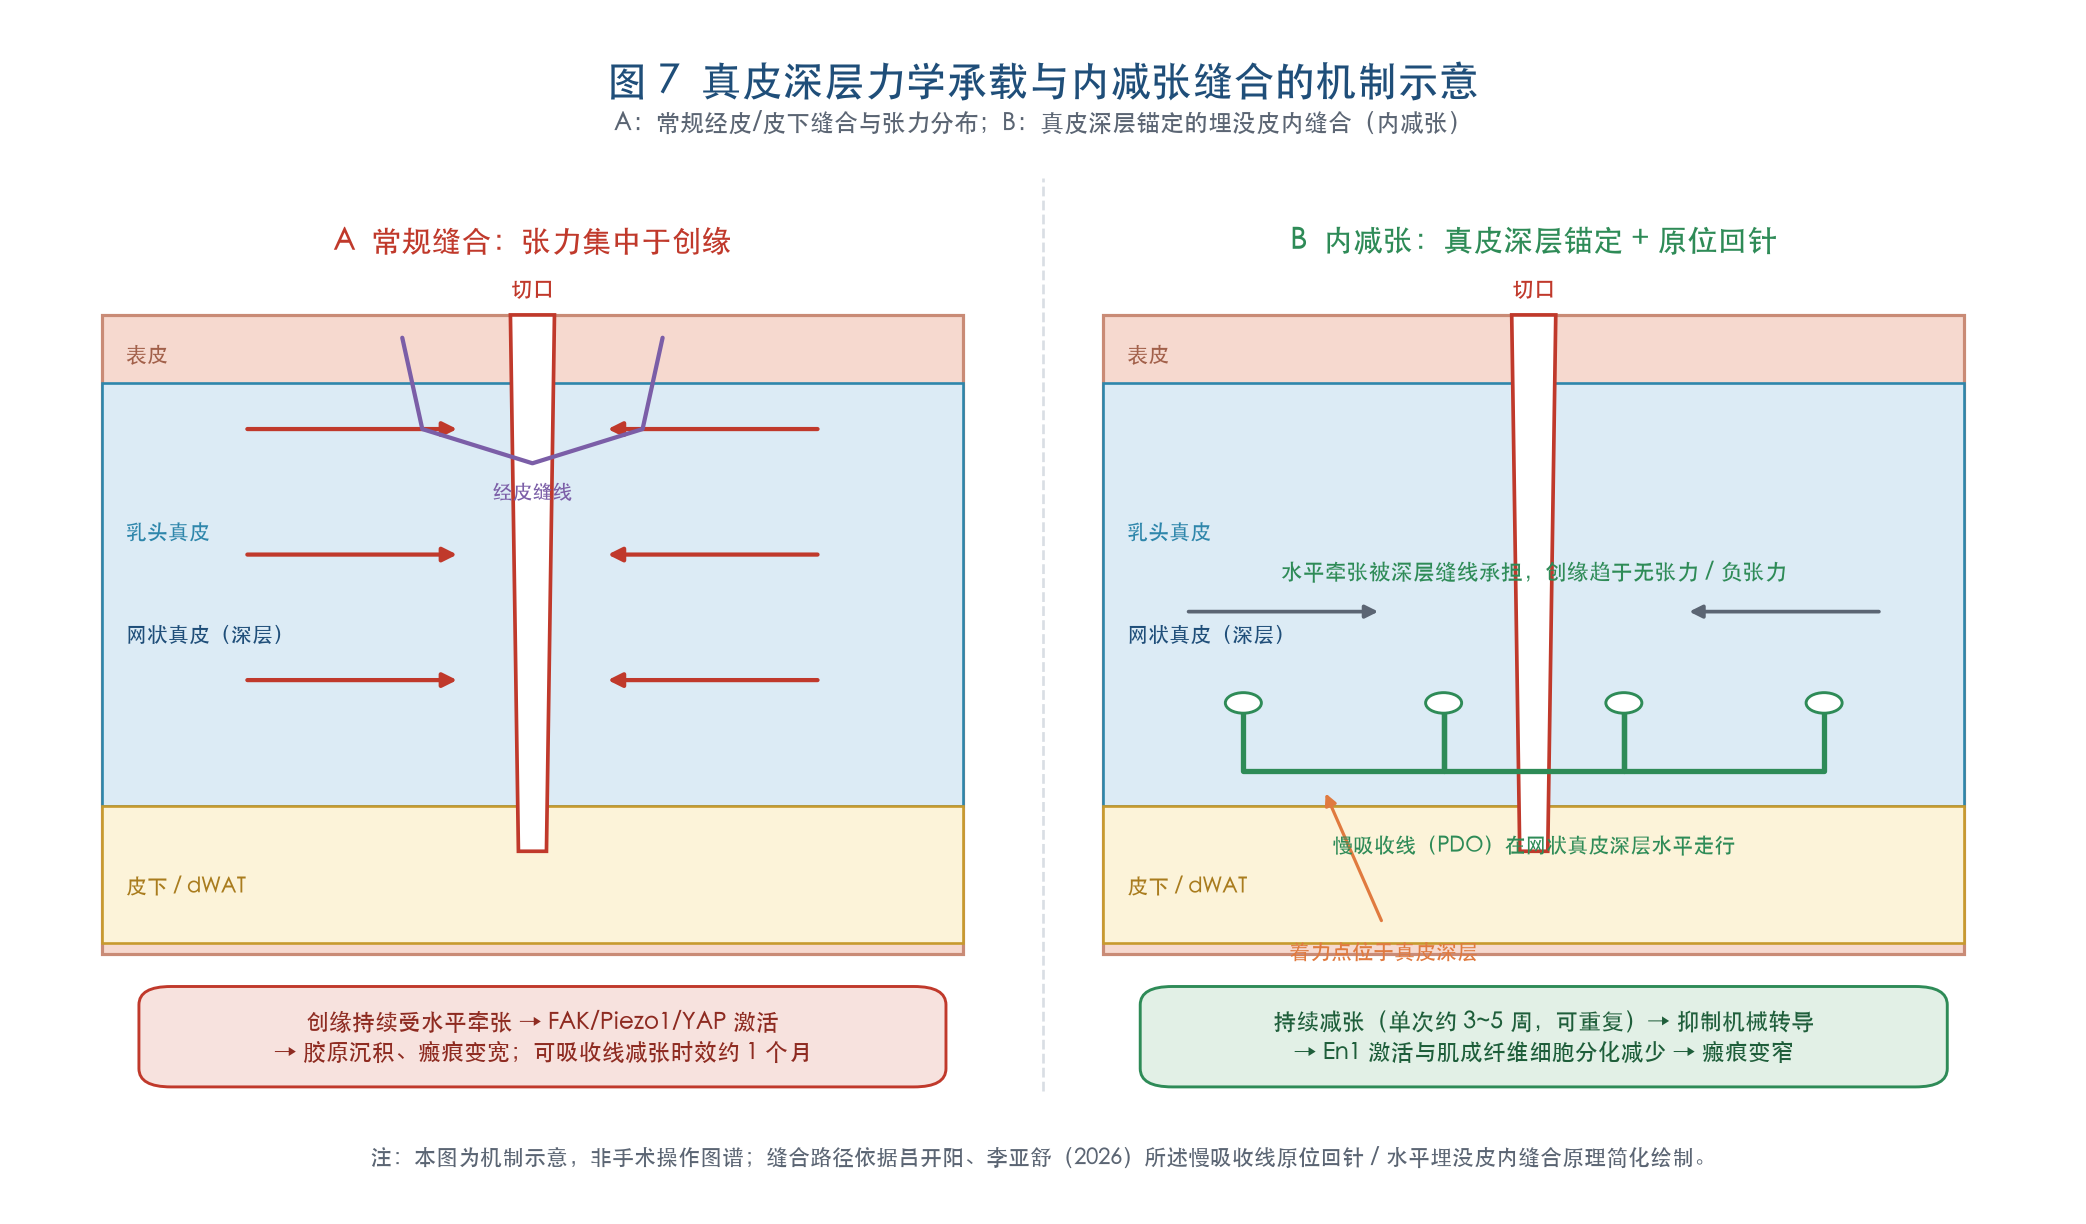
图 7 真皮深层力学承载与内减张缝合的机制示意。A 为常规缝合下张力集中于创缘;B 为慢吸收线在网状真皮深层锚定、承担水平牵张。
8.4 与其他减张/力学干预的对照
术中减张缝合:BVMS、埋没水平褥式缝合(BHMS)及心形缝合、章氏超减张缝合、逐步渐进超减张、双 W 形、蝴蝶缝合等改良术式,共同点是缝合位点尽量远离切缘、注重真皮内路径与线结深埋;逐步渐进超减张缝合在高张力部位报告平均约 13.6 周的减张维持(吕开阳、李亚舒,2026;皮肤性病诊疗学杂志,2025)。局限是可吸收线降解后作用消失。
应力屏蔽装置:聚合物装置通过改变已闭合创面的应力状态显著降低瘢痕形成(Gurtner 等,2011,PMID 21606834;PMID 29392093 关于机械力与新兴治疗综述);随机对照试验支持 embrace 类装置(PMID 24804638;PMID 24105084)。局限为易脱落、皮肤刺激、外观影响与依从性。
减张胶带/拉链:简便、成本低、有随机对照证据(PMID 34290886),但易因出汗摩擦脱落,儿童依从性差。
压力治疗:常用压力衣、硅胶面罩与弹力绷带,报告有效率 60%–85%;系统性综述建议伤后 2 个月内开始、维持 20–25 mmHg 至少 12 个月乃至 18–24 个月。机制涉及降低灌注与水肿、抑制成纤维细胞活性、促进 PGE₂ 释放与增强 MMP 活性。局限是不同部位实际压力差异可达 9–90 mmHg,且几乎无法缩小瘢痕宽度(吕开阳、李亚舒,2026)。
硅酮制剂:硅凝胶片可能通过角质层水合、降低瘢痕边缘机械张力、下调成纤维细胞 TGF-β1/β2 表达而减少 HTS;多项随机对照试验与荟萃分析支持其预防价值(赵倩楠等,2021)。
A 型肉毒毒素:通过抑制神经肌肉接头乙酰胆碱释放实现”化学性减张”,并有报道涉及巨噬细胞功能调节(PMID 42621324);与皮下心形缝合联用可形成双重减张(赵倩楠等,2021)。
表 7 减张与力学干预机制的对照
| 干预 | 作用层次 | 主要机制 | 作用时效 | 证据与局限 |
|---|---|---|---|---|
| 切口沿 RSTL 设计 | 真皮整体 | 降低切口横向牵张与剪切 | 永久 | 经典观察,临床共识 |
| 分层/超减张缝合(BVMS 等) | 网状真皮深层 | 深层对合、远位承力、创缘无张力 | 数周(受缝线吸收限制) | 多项临床对照;观察性为主 |
| 慢吸收线内减张(HBIS/原位回针) | 网状真皮深层 | 切口闭合后持续承担水平牵张 | 单次约 3–5 周,可重复 | 2026 年初步临床应用,尚缺 RCT |
| 应力屏蔽聚合物装置 | 表皮-真皮整体 | 屏蔽动态应力、下调促纤维化标志物 | 术后数周至数月 | 大动物 + Ⅰ期 + RCT(PMID 21606834 等) |
| 减张胶带/拉链 | 表皮-浅真皮 | 横向拉近创缘 | 需持续佩戴 ≥3 个月 | 有 RCT;易脱落、刺激、依从性问题 |
| 压力治疗 | 瘢痕整体 | 降低灌注、抑制 Fb、增强 MMP | ≥12 个月 | 有效率 60%–85%;压力分布不均、不改善宽度 |
| A 型肉毒毒素 | 肌层-真皮 | 化学性降低动态张力 | 约 3–6 个月 | 与缝合联用有报道;剂量与安全性需规范 |
| 硅酮制剂 | 角质层-浅真皮 | 水合、降低边缘张力、下调 TGF-β | 需持续数月 | 多项 RCT/荟萃支持 |
| 剥脱性点阵激光 | 真皮全层 | 微热损伤区诱导胶原/弹性纤维重塑、降低杨氏模量 | 多次治疗 | 改善色泽质地;高张力部位单用仍可变宽 |
8.5 证据等级、争议与研究缺口
必须明确:内减张/持续减张的理念与上述机制链条高度一致,且有间接证据(应力屏蔽动物与临床研究、体外机械转导、谱系追踪)支持,但针对具体内减张术式的高质量临床证据仍有限。原作者本人指出该技术尚缺乏随机对照试验结果,临床应用需谨慎(吕开阳、李亚舒,2026)。具体缺口包括:
1. 缺乏统一、可重复的在体张力定量方法(现有多为间接评估或主观量表);
2. 缝线材质、降解速率、倒刺构型与减张维持时间之间缺乏剂量-效应数据;
3. 结局指标不一致(VSS、POSAS、瘢痕宽度、超声厚度、弹性成像、患者报告结局),随访时长普遍不足;
4. 部位、年龄、肤色、遗传背景与瘢痕类型(HTS vs 瘢痕疙瘩)的分层不足——瘢痕疙瘩成纤维细胞被报道对张力变化不敏感但对基质刚度异常敏感,提示不同病变对减张的反应可能不同(吕开阳、李亚舒,2026);
5. 深层缝合的潜在风险(异物反应、线结外露、囊肿、感觉异常、感染)需系统记录;
6. “减张”与”加压”在机制上并不等价:前者降低水平牵张,后者增加垂直压力并改变灌注,二者不可互相替代。
小结:把缝合的着力点转移至真皮深层、并让这种减张在重塑期持续存在,是把”真皮成分—力学—细胞命运”基础认识转化为临床技术的代表性尝试。其合理性来自三个层次一致的证据,但其疗效边界仍需前瞻性随机对照研究界定。
第九章 从机制到靶点:预防与治疗的转化图谱
9.1 力学层:最靠近病因的干预
既然机械张力是可控的上游输入,力学干预具有”病因治疗”的性质。分层列举:
术前/术中:沿 RSTL 设计切口(夹角 > 30° 时可考虑 W 成形等改形);分层对合、把张力交给真皮深层与皮下层;避免经皮缝线承担张力;选择强度足够、组织反应小、降解速率与重塑期匹配的缝线;关节部位考虑制动或减张支具。
术后早期:减张胶带/拉链或应力屏蔽装置持续至少 3 个月;高风险部位与儿童需兼顾依从性与皮肤耐受;pressure therapy 用于烧伤后大面积 HTS 时按 20–25 mmHg、≥12 个月规范执行并监测压力分布。
重塑期:这是常规可吸收缝线失效后的空窗。以慢吸收线原位回针的真皮深层内减张(HBIS)为代表的技术试图填补该空窗,并可联合点阵激光加速基质重塑(吕开阳、李亚舒,2026)。A 型肉毒毒素提供约 3–6 个月的化学性动态减张,适用于表情肌活跃部位。
材料学路径:低模量水凝胶、软基质敷料与可调控降解的仿生支架,通过降低局部刚度直接削弱 YAP/Piezo1 通路(PMID 42263899;PMID 42799204,2026 年功能性聚合物支架促进无瘢痕愈合综述)。
9.2 化学/信号层:分子靶点及其成熟度
TGF-β 轴:中和 TGF-β1/β2、补充 TGF-β3、抑制 TGF-β 受体Ⅰ激酶、恢复 Smad7 负反馈。2026 年综述系统梳理了 TGF-β 信号在瘢痕疙瘩中的复杂性,指出单纯广谱抑制可能影响正常愈合(PMID 42074238)。胎儿无瘢痕愈合研究提示改善 TGF-β3/β1 比值比全面阻断更接近生理(PMID 21039435)。
YAP/TAZ–TEAD:维替泊芬是最常被引用的 YAP 抑制剂,在动物模型中阻断 En1 激活并实现再生性愈合(PMID 33888614);2025 年靶向沉默 En1 重编程促纤维化成纤维细胞是同一逻辑的延伸(PMID 40708196)。需注意维替泊芬的光敏剂属性与脱靶效应,临床转化仍受限。
Piezo1 / 钙通道:GsMTx4 在动物模型减轻张力诱导的 HTS(PMID 33649312);低频超声调节 Piezo1 通道的研究提示物理手段亦可调控该通路(PMID 38311578)。
FAK / ROCK / MAPK / mTOR:FAK-ERK-MCP-1 通路把力学与炎症连接,抑制 FAK 可减轻纤维化;PI3K/AKT/mTOR 在瘢痕重塑与瘢痕疙瘩形成中的作用被 2025 年综述系统总结(PMID 41424791);p38/JNK/ERK 与 ERK 依赖的 IL-11 促纤维化效应亦为候选靶点。
IL-6 / IL-11 / JAK-STAT3:IL-11 因促纤维化作用相对专一而受到关注;IL-6 兼具炎症与修复双重角色,需时相化干预。
LOX / 交联:泛 LOX 抑制剂 PXS-5505 在多器官纤维化模型中有效(PMID 35628342);局部外用不可逆小分子抑制剂亦有报道(PMID 36138009)。
MMP/TIMP 与 PAI-1:增强 MMP-1 活性、抑制 TIMP-1/PAI-1、补充 decorin/fibromodulin 以恢复降解端;但须避免创面不愈与萎缩性瘢痕。
HIF-1α / ROS / NRF2:HIF-1α 通路(PMID 37636362;PMID 42332798)与氧化应激的时相依赖性作用(2026 年 NRF2 阶段性氧化还原枢纽综述,PMID 42962377)提示抗氧化干预需分期而非全程。
透明质酸:按分子量区分策略——高分子量 HA 抗炎抗纤维化,抑制 HA 片段-TLR4 信号或调节 HAS/HYAL 平衡(PMID 42345033;PMID 18282267)。
9.3 细胞与基质层:重塑微环境
包括:保留 ENF 再生性表型、抑制 EPF 扩增、促进肌成纤维细胞凋亡或去活化;调节巨噬细胞 M1→M2 时相、阻断 POSTN⁺/SPP1⁺ 促纤维化生态位(PMID 42138176);稳定肥大细胞、恢复 connexin-43 缝隙连接通讯;纠正内皮细胞 TGF-β/POSTN 信号与异常血管生成(PMID 42787495);保护 dWAT、抑制脂肪细胞-成纤维细胞转分化(PMID 39717110);补充 SLRP 或抑制 versican 过度沉积;调节神经肽释放以缓解瘙痒与神经源性炎症(PMID 39872039)。
9.4 再生层:从”少瘢痕”到”无瘢痕”
最高目标是重建真皮的正常超微结构与附属器。路径包括:Wnt/β-catenin 依赖的伤口诱导毛囊新生(PMID 42074048);胎儿样基质(高分子 HA、Ⅲ型胶原、低炎症)仿生(PMID 21039435;PMID 37569321,2023 年多能干细胞来源中胚层细胞实现无瘢痕愈合的研究);基因激活支架与 3D 生物材料(PMID 34832950;PMID 38399319);细胞外囊泡与无细胞治疗(PMID 42306298;PMID 42798851);以及 2026 年提出的”从被动抗纤维化转向主动再生”的整体策略(PMID 41732917;PMID 41810075)。
9.5 临床常规与阶梯化管理
已广泛使用的措施包括硅酮凝胶/贴片、病灶内糖皮质激素(可联合 5-FU、博来霉素)、冷冻、剥脱性点阵激光、脉冲染料激光、压迫、手术切除联合术后辅助(激素注射、放疗、减张)等。2026 年的分层管理与儿科瘢痕预防指南强调按瘢痕类型、部位、张力、年龄与患者偏好组合干预(PMID 41728580;PMID 41281968;PMID 41018317)。需强调的是:任何单一手段都难以覆盖力-化-生闭环的所有环节,临床趋势是多模式联合——例如”深层持续减张 + 早期激光重塑 + 硅酮/压力维持”,并把干预窗口前移至瘢痕形成早期。
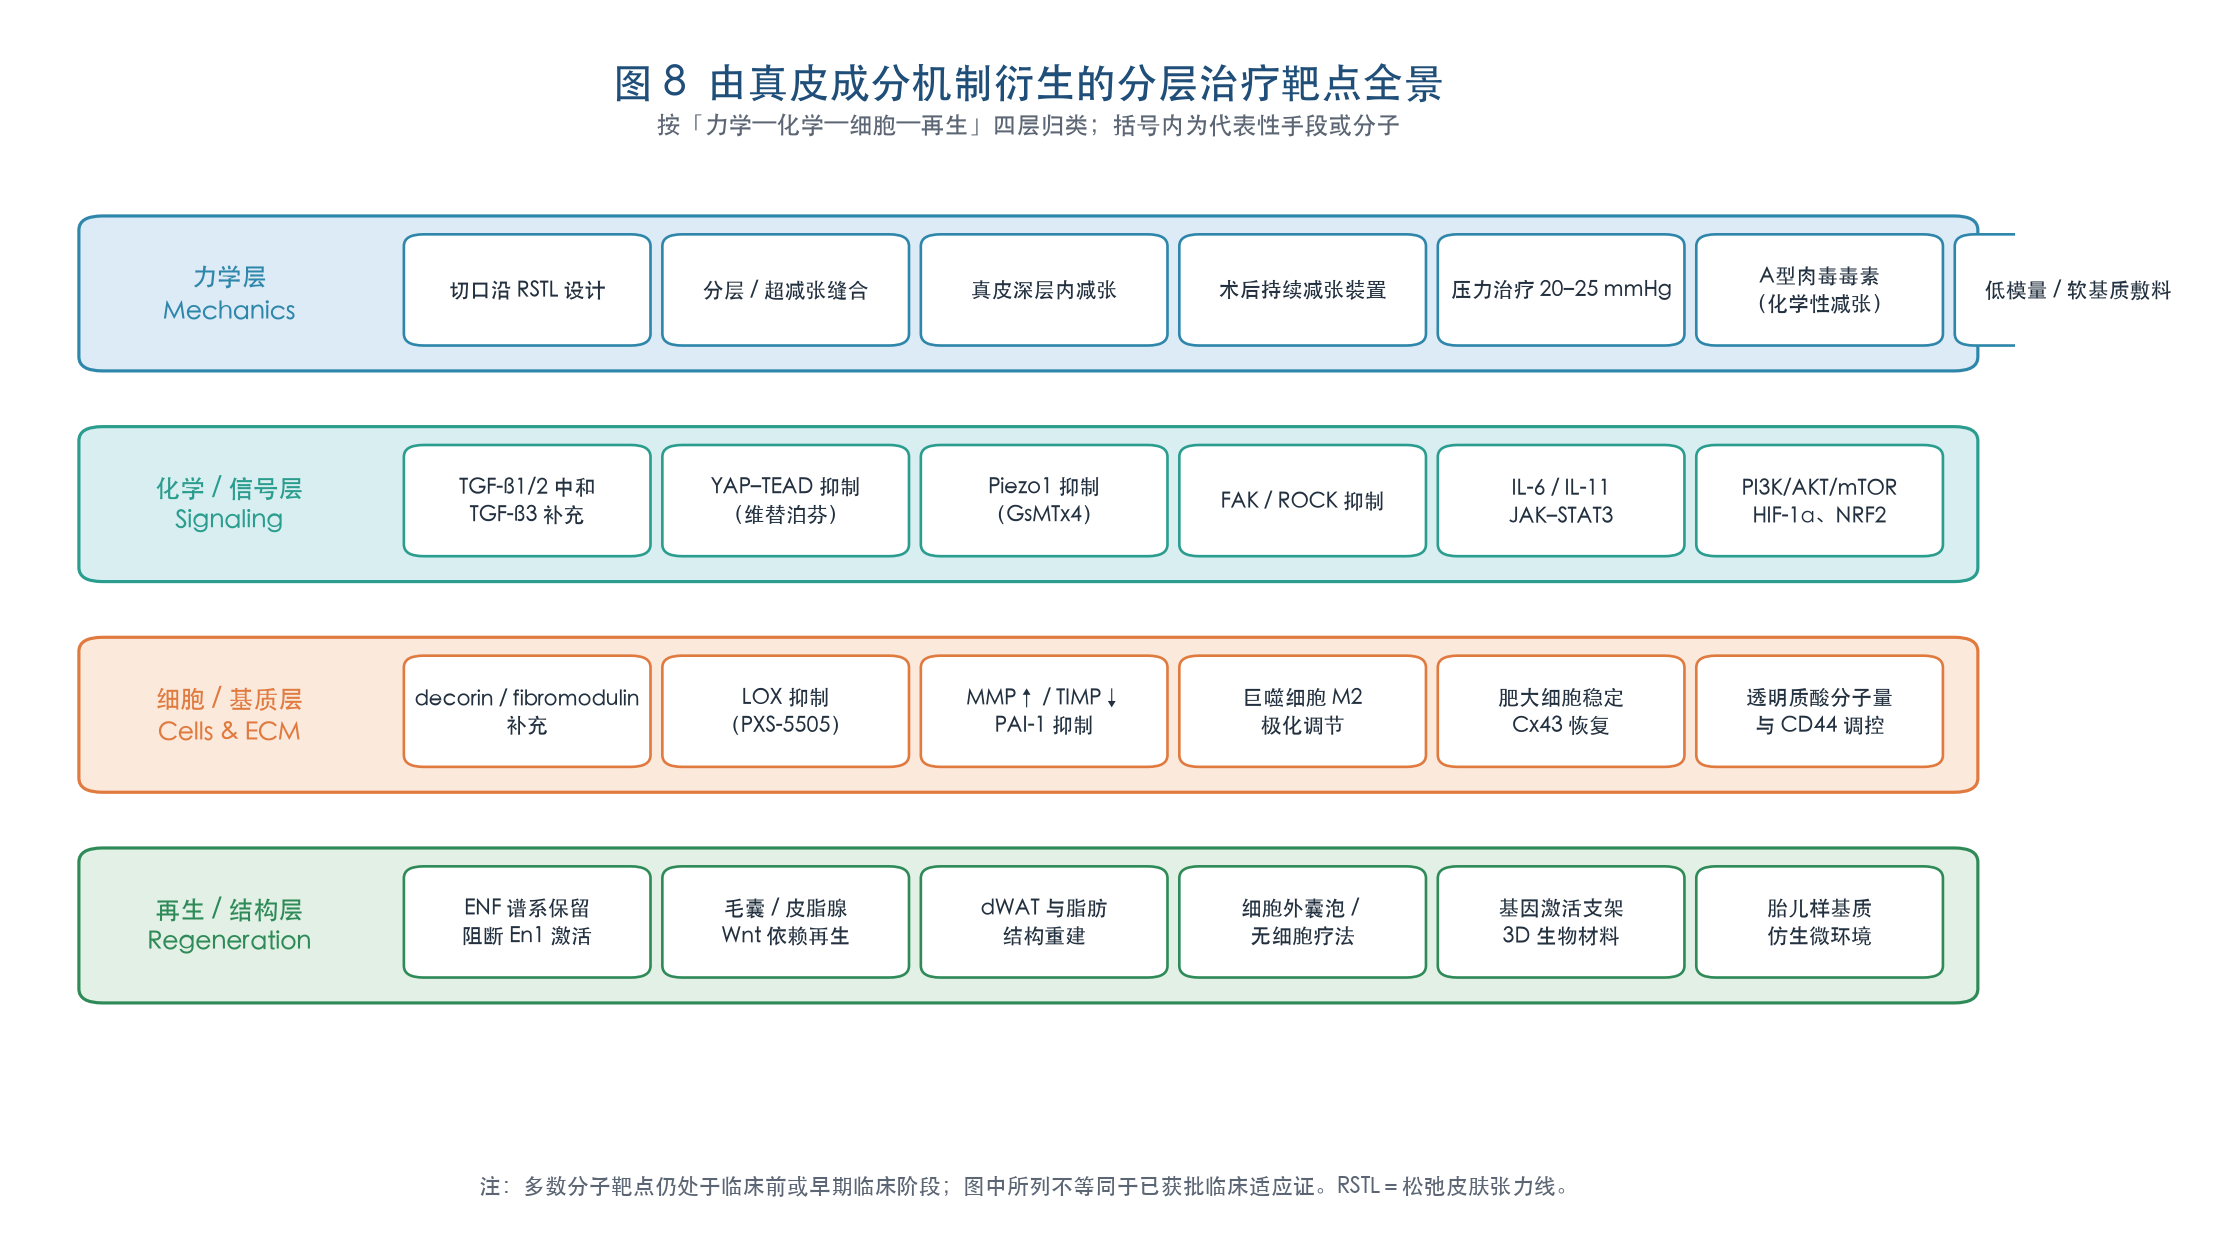
图 8 由真皮成分机制衍生的分层治疗靶点全景:力学层、化学/信号层、细胞/基质层与再生/结构层。
表 8 代表性治疗靶点、作用环节与转化阶段
| 靶点/手段 | 作用环节 | 关键机制依据 | 转化阶段 |
|---|---|---|---|
| 真皮深层持续减张(含 HBIS) | 力学输入 | 降低整合素/Piezo1/YAP 激活,抑制 En1 与肌 Fb | 初步临床应用,待 RCT |
| 应力屏蔽装置 / 减张胶带 | 力学输入 | 大动物与 RCT 证据 | 已临床应用 |
| 硅酮、压力治疗、A 型肉毒毒素 | 力学/水合/动态张力 | 多项 RCT 与系统评价 | 已临床应用 |
| TGF-β1/2 中和、TGF-β3 补充 | 化学信号 | 胎儿无瘢痕愈合、Smad 通路 | 临床前/早期临床 |
| 维替泊芬(YAP 抑制)/ En1 沉默 | 谱系开关 | Science 2021 再生性愈合、2025 重编程研究 | 临床前 |
| GsMTx4(Piezo1 抑制) | 机械感受 | 大鼠张力诱导 HTS 模型 | 临床前 |
| FAK / ROCK / mTOR 抑制 | 胞内传导 | HTS 中 FAK-ERK、PI3K/AKT/mTOR 上调 | 临床前 |
| IL-11 / IL-6–STAT3 阻断 | 炎症-纤维化耦合 | CD39⁺ Fb 与 IL-11 驱动 ECM | 临床前 |
| decorin / fibromodulin 补充 | ECM 调控 | 中和 TGF-β、下调 PAI-1、恢复纤维口径 | 临床前 |
| LOX 抑制 / 低模量水凝胶 | 交联与刚度 | 打断刚度-YAP 正反馈 | 临床前 |
| HA 分子量调控 / HAS-HYAL | ECM 调控 | 高分子 HA 抗炎、片段经 TLR4 促炎 | 部分产品已应用,机制待验证 |
| POSTN⁺ / SPP1⁺ 生态位干预 | 细胞互作 | 2026 单细胞与综述证据 | 靶点发现阶段 |
| EV / 无细胞疗法、基因激活支架 | 再生 | 2025–2026 年新方向 | 临床前 |
| 点阵激光、激素、5-FU、冷冻、放疗 | 组织重塑/抗增殖 | 长期临床经验 | 已临床应用 |
第十章 研究模型、方法与证据局限
10.1 体外模型及其偏倚
二维单层培养配合机械拉伸装置(0.1 Hz、5%–10% 幅度)是最常用的力学模型,可精确控制应变但缺乏三维 ECM 与细胞-基质互作;可调刚度的聚丙烯酰胺/明胶水凝胶用于模拟软硬基质,但刚度与配体密度常难以完全解耦;3D 皮肤等效物、器官芯片与重建人皮肤模型(含浅/深真皮分层)更接近生理,却难以施加长期、可量化的动态张力(PMID 40470675,2025 年重建人皮肤模型研究)。此外,取材部位(乳头层 vs 网状层)、供者年龄、传代次数与瘢痕类型(HTS vs 瘢痕疙瘩)都会显著改变结果,是文献间不一致的重要来源。
10.2 动物模型的固有差异
小鼠皮肤松弛、具有肉膜(panniculus carnosus)、以收缩愈合为主,与人以再上皮化+肉芽组织为主的愈合方式不同;夹板切除模型(splinted excisional wound)可抑制收缩、更接近人类;张力加载的切口模型用于模拟高张力瘢痕;兔耳模型可用于增生性瘢痕;红色杜洛克猪因皮肤结构与愈合方式接近人类,被 Gurtner 等用于应力屏蔽研究并成功复现人样瘢痕(PMID 21606834)。瘢痕疙瘩则缺乏理想动物模型(人类特有病变),多依赖人源组织异种移植或类器官。2026 年有研究专门讨论动物模型的建立与转化评价(PMID 42078210)。
10.3 组学与影像技术带来的认识升级
单细胞 RNA 测序(2021 年起)拆解了成纤维细胞与免疫细胞亚群;空间转录组与多重免疫荧光保留了层次与中心-外围信息;matrisome 蛋白质组学系统定量 ECM 及其相关蛋白;机器学习用于从表达谱识别纤维化亚群(PMID 37986676);2026 年的生物信息学综述尝试整合全瘢痕谱系的分子特征(PMID 42964832;PMID 42719615 全景式瘢痕疙瘩发病机制分析)。影像方面,二次谐波成像、偏振光显微镜、原子力显微镜与超声弹性成像分别提供胶原取向、纤维分型、纳米刚度与在体弹性信息,为减张干预的疗效评价提供了客观指标。
10.4 主要证据局限与相互矛盾的结论
1. 横断面为主:多数人组织研究比较的是”已形成的瘢痕 vs 正常皮肤”,难以确定因果方向——是基质改变导致纤维化,还是纤维化的结果。
2. 成分比例的结论不一致:如 3.4 节所述,Ⅰ/Ⅲ型胶原比例因检测方法、取样层次、病变类型与病程而异;对”HTS 以Ⅲ型为主”与”偏振光测得Ⅰ型占 74%”应理解为不同层面的观察。
3. 张力与刚度的反应分离:有研究显示瘢痕疙瘩成纤维细胞对张力变化不敏感但对基质刚度异常敏感,而 HTS 成纤维细胞对拉伸敏感(吕开阳、李亚舒,2026);这提示”减张”对两类病变的预期收益不应等同。
4. 分子靶点的情境依赖:fibromodulin 早期促迁移、后期抑制 TGF-β;HA 高分子量与片段化作用相反;TGF-β3 抗纤维化而 TGF-β1 促纤维化;NRF2 具有时相依赖的氧化还原枢纽作用(PMID 42962377)。把这些分子简单贴”好/坏”标签容易误导。
5. 临床终点不统一:VSS、POSAS、宽度、厚度、色泽、硬度、瘙痒与患者报告结局各有所重,随访 3 个月与 2 年的结论常不可比。
6. 发表与检索偏倚:阳性结果、英文文献与机制研究更容易被检索到;本综述未做 PRISMA 式筛选与偏倚评估。
表 9 主要证据冲突的来源核查与解释
| 争议点 | 表述 A 及来源 | 表述 B 及来源 | 方法学解释 | 本综述采用的表述 |
|---|---|---|---|---|
| HTS 中Ⅰ/Ⅲ型胶原何者占优 | 以Ⅲ型胶原为主(Kohlhauser 等,2024,PMID 39519131) | 偏振光法测得Ⅰ型约 74%、Ⅲ型约 21%(2002 年苦味酸天狼星红偏振研究,背景文献) | 组织学/免疫组化 vs 偏振双折光判读;早期 vs 成熟期;HTS 与生理性瘢痕取样差异 | HTS 中Ⅲ型胶原相对比例升高、Ⅰ型成熟更替受阻,不给绝对诊断阈值 |
| 瘢痕疙瘩胶原比例 | Ⅰ/Ⅲ比值显著升高(比较性综述,约 17:1) | HTS Ⅲ/Ⅰ比值约 6:1(同一综述) | 二者为不同疾病实体,且抗体特异性与定量方法不同 | 瘢痕疙瘩以Ⅰ型为主的粗大玻璃样束;不与 HTS 混用比值 |
| 深真皮弹性蛋白 | HTS 中减少(比较性综述) | 瘢痕疙瘩中反而升高(同一综述) | 病变类型与层次(浅/深真皮)交互作用 | 分别描述,避免概括为”弹性蛋白一律减少” |
| 透明质酸的作用 | 高分子量 HA 抗炎、促无瘢痕愈合(胎儿研究) | HA 片段经 TLR4 促炎促纤维化(PMID 18282267) | 分子量、交联与降解状态决定效应方向 | 按分子量区分,反对笼统”补 HA 抗瘢痕” |
| 减张对两类瘢痕的收益 | 张力卸载显著减轻 HTS/猪模型瘢痕(PMID 21606834) | 瘢痕疙瘩 Fb 对张力变化不敏感、对刚度敏感(吕开阳、李亚舒,2026) | 细胞来源与病变类型不同,体外反应性不等同于在体力学响应 | 减张证据主要适用于 HTS 与线性手术瘢痕;瘢痕疙瘩需单独验证 |
| fibromodulin 的角色 | 早期支持迁移与肌 Fb 转分化(PMID 39519131) | 后期抑制 TGF-β1 自诱导、限制 ECM 沉积 | 时相依赖的双向作用 | 强调时相化而非单向”抑制/补充” |
给临床读者的三点提示:①”真皮深层受累”是病理性瘢痕最重要的风险标志,闭合时把张力交给深层组织、并让减张覆盖重塑期,机制上最合理;②任何分子或细胞层面的新疗法都不应替代基础的张力管理;③在解读”某成分升高/降低”的结论时,先确认检测的是基因还是蛋白、浅层还是深层、早期还是成熟期。
第十一章 结论与展望
11.1 五条核心结论
第一,真皮成分是瘢痕增生的主动调控者,而非被动支架。 胶原、弹性纤维、蛋白聚糖、透明质酸与黏连糖蛋白的量和空间组织,既决定组织的力学属性,也通过整合素、DDR、CD44、TLR 与潜伏 TGF-β 的释放持续向细胞输入信号。
第二,网状(深)真皮是核心效应层次。 约 72.7% 的 TGF-β1 来源于深部网状层成纤维细胞,En1 谱系阴性细胞在张力下于该层转化为促纤维化的 pEPF 并贡献 40%–50% 的瘢痕成纤维细胞,粗大胶原束同时是主要承力结构——细胞、信号与力学在此重合。
第三,病理性瘢痕是”量”与”质”的双重失败。 量的方面是胶原合成/降解失衡(合成约 7 倍、MMP-1↓、TIMP-1↑、PAI-1↑);质的方面是排列由篮状编织转为平行束、LOX 交联增加、弹性纤维断裂、decorin/fibromodulin 下降、versican 升高、HA 减少并片段化。
第四,机械转导是把上述改变连成闭环的主轴。 整合素-黏着斑-FAK、钙黏蛋白-β-catenin、Piezo1/TRPV4 与 Rho/ROCK-应力纤维-LINC 把张力送入细胞核,经 YAP/TAZ、MRTF-A、β-catenin 与 TGF-β/Smad 协同驱动促纤维化转录;新生成的硬基质又强化机械输入,形成力-化-生正反馈。
第五,干预窗口应前移并延长。 闭合前聚拢创缘、闭合后持续对抗重塑期张力,是打断闭环最直接可行的临床路径;以真皮深层为着力点、以慢吸收材料延长作用时间的内减张技术与之高度契合,但仍需高质量随机对照研究确证。
11.2 未来研究方向
1. 时空多组学:把单细胞/空间转录组与 matrisome 蛋白质组、力学成像配准到同一份组织的浅/深、中心/外围坐标,解释异质性。
2. 在体张力定量:开发可穿戴或影像化的张力/刚度测量方法,把”减张多少、维持多久”变成可处方、可质控的参数,从而支撑剂量-效应研究与 RCT。
3. 持续减张的高质量临床验证:以内减张术式、缝线材质与治疗频次为变量,采用统一终点(宽度、弹性、POSAS、患者报告结局)与 ≥12 个月随访,并按 HTS/瘢痕疙瘩、部位与年龄分层。
4. 谱系与表观遗传可逆性:验证在人类组织中是否同样存在 ENF→EPF 的力学依赖转换,以及机械记忆能否被药物或力学干预擦除。
5. 从抗纤维化到再生:以附属器再生、篮状超微结构与力学强度恢复为终点,而非仅以”瘢痕变平”为终点。
6. 模型与预测:结合人工智能与有限元模型预测个体瘢痕风险,指导切口设计与术后减张强度(PMID 42964832;PMID 37986676)。
11.3 结语
近二十年的证据把瘢痕研究从”细胞增殖失控”推进到”真皮微环境的力学-化学-生物学失稳”。在这一框架下,真皮每一类成分都是可干预的节点:减少异常交联、补足缺失的蛋白聚糖、控制 HA 分子量、保留弹性纤维、抑制谱系转换、恢复降解平衡,直至在组织层面持续降低牵张。对临床而言,最具可操作性的结论仍朴素而明确:让真皮深层不承担多余的张力,并让这种状态持续到重塑期结束。
附录 A 近二十年(2006—2026)代表性研究线索
表 A1 按年份梳理的机制认识演进(代表性文献,非穷尽)
| 年份 | 代表性进展 | 相关文献(PMID 或来源) |
|---|---|---|
| 2007 | 提出神经因素参与 HTS;烧伤/创伤后 HTS 机制新认识 | 17727464;17803351 |
| 2008 | 透明质酸与其片段对成纤维细胞的差异化效应 | 18282267 |
| 2009–2011 | HTS/瘢痕疙瘩病理生理梳理;ECM 分子系统综述;胎儿无瘢痕愈合策略 | 19215252;20927486;21838832;21039435 |
| 2011 | 应力屏蔽聚合物在大动物与Ⅰ期临床显著减少瘢痕(6–9 倍) | 21606834 |
| 2013–2015 | 肌成纤维细胞的力学调控与病理角色确立 | 24527336;26681260 |
| 2014 | embrace 减张装置随机对照试验 | 24804638;24105084 |
| 2016–2019 | 烧伤后 HTS 负担、免疫调控、伤口愈合细胞学综述 | 27707499;29984112;30475656;31547598 |
| 2020–2021 | 单细胞揭示成纤维细胞异质性;Piezo1 介导拉伸促 HTS;En1/YAP 谱系开关实现再生性愈合;ECM 与 HA 综述 | 34140509;33649312;33888614;34945243;33913776 |
| 2021(中文) | 机械张力对 HTS 影响及减张措施综述 | 赵倩楠等,中华烧伤杂志 37(6):586-590 |
| 2022 | 机械转导与皮肤生物力学综述;成纤维细胞异质性;ECM 蛋白生物学;dWAT 作用 | 36325354;35614943;36017082;35667795;33913776;34608987 |
| 2023–2024 | 免疫细胞与分子标记;Piezo1-Wnt2 刚度通路;位置信息;张力卸载贴片;分子机制叙述性综述 | 36562321;38267432;38423396;38464040;39519131 |
| 2025 | PI3K/AKT/mTOR、免疫微环境、神经调控、早期干预与分层管理 | 41424791;40718487;39872039;41728580 |
| 2026 | 力-化-生耦合与内减张技术创新;HA 专题综述;POSTN⁺/SPP1⁺ 生态位;En1 沉默;多组学与全景机制分析 | 吕开阳、李亚舒,中华烧伤与创面修复杂志 42(2):133-142;42345033;42138176;40708196;42964832;42719615 |
附录 B 缩略语表
表 B1 主要缩略语
| 缩略语 | 中文 | 英文全称 |
|---|---|---|
| ECM | 细胞外基质 | extracellular matrix |
| HTS | 增生性瘢痕 | hypertrophic scar |
| DEJ | 真皮-表皮交界 | dermal-epidermal junction |
| dWAT | 真皮白色脂肪组织 | dermal white adipose tissue |
| SLRP | 小富亮氨酸重复蛋白聚糖 | small leucine-rich proteoglycan |
| HA | 透明质酸 | hyaluronan / hyaluronic acid |
| FN / EDA-FN | 纤连蛋白 / EDA 剪接变体 | fibronectin / EDA-fibronectin |
| LOX | 赖氨酰氧化酶 | lysyl oxidase |
| MMP / TIMP | 基质金属蛋白酶 / 组织抑制物 | matrix metalloproteinase / tissue inhibitor of metalloproteinases |
| FAK | 黏着斑激酶 | focal adhesion kinase |
| YAP / TAZ | Yes 相关蛋白 / 具 PDZ 结合基序的转录共激活因子 | Yes-associated protein / transcriptional coactivator with PDZ-binding motif |
| ENF / EPF / pEPF | En1 谱系阴性 / 阳性 / 出生后阳性成纤维细胞 | Engrailed-1 lineage-negative / -positive / postnatally derived EPF |
| POSTN | 骨膜蛋白 | periostin |
| HIF-1α | 缺氧诱导因子 1α | hypoxia-inducible factor 1 alpha |
| LINC | 连接核骨架与细胞骨架复合体 | linker of nucleoskeleton and cytoskeleton |
| RSTL | 松弛皮肤张力线 | relaxed skin tension lines |
| BVMS / BHMS / HBIS | 埋没垂直/水平褥式缝合 / 水平埋没皮内缝合 | buried vertical/horizontal mattress suture / horizontal buried intradermal suture |
| VSS / POSAS | 温哥华瘢痕量表 / 患者与观察者瘢痕评估量表 | Vancouver Scar Scale / Patient and Observer Scar Assessment Scale |
附录 C 检索式与数据来源说明
本综述的英文文献主要经 BioMCP 联邦检索获得,核心检索式举例:`search article -k “hypertrophic scar dermal extracellular matrix collagen” –type review –year-min 2006`、`search article -k “mechanical tension mechanotransduction YAP TAZ hypertrophic scar fibroblast”`、`search article -k “papillary reticular dermal fibroblast heterogeneity scar single-cell”`、`search article -k “mechanical tension offloading intradermal suture scar reduction tension”`、`search article -k “hyaluronan decorin biglycan versican proteoglycan hypertrophic scar”` 等;题录经 NCBI E-utilities `esummary` 批量核对。全文复核使用 PubMed Central(PMC11546163:Kohlhauser 等 2024 分子机制综述;PMC12989300:吕开阳、李亚舒 2026 力-化-生与减张技术综述)。中文文献来自中华烧伤杂志、中华烧伤与创面修复杂志与皮肤性病诊疗学杂志的公开页面。
证据表述约定:文中以”作者等,年份”标注来源;数值型结论均注明可追溯的综述或原始研究;对存在分歧的结论(如胶原Ⅰ/Ⅲ比例、弹性蛋白在深真皮的变化)在 3.4 与 10.4 节并列呈现来源与方法学差异。本文为描述性综述,不构成临床诊疗建议;具体技术(尤其内减张术式)的应用应由具备资质的临床医师结合患者情况判断。
参考文献
一、中文文献
[1] 吕开阳, 李亚舒. 基于机械-化学-生物学理论的外科切口瘢痕机制与减张技术创新. 中华烧伤与创面修复杂志, 2026, 42(2): 133-142. DOI: 10.3760/cma.j.cn501225-20251013-00424.
[2] 赵倩楠, 周粤闽, 孙朝阳. 机械张力对创伤后增生性瘢痕形成的影响研究进展. 中华烧伤杂志, 2021, 37(6): 586-590. DOI: 10.3760/cma.j.cn501120-20200315-00167.
[3] 早期干预术后瘢痕治疗研究进展. 皮肤性病诊疗学杂志, 2025, 32(1). DOI: 10.3969/j.issn.1674-8468.2025.01.012.
二、英文文献(按发表年份排序,均经 PubMed 题录核准)
[4] Scott JR, Muangman P, Gibran NS Making sense of hypertrophic scar: a role for nerves. Wound repair and regeneration : official publication of the Wound Healing Society [and] the European Tissue Repair Society. 2007;15 Suppl 1:S27-31. doi:10.1111/j.1524-475X.2007.00222.x. PMID: 17727464.
[5] Aarabi S, Longaker MT, Gurtner GC Hypertrophic scar formation following burns and trauma: new approaches to treatment. PLoS medicine. 2007;4(9):e234. doi:10.1371/journal.pmed.0040234. PMID: 17803351.
[6] David-Raoudi M, Tranchepain F, Deschrevel B, et al. Differential effects of hyaluronan and its fragments on fibroblasts: relation to wound healing. Wound repair and regeneration : official publication of the Wound Healing Society [and] the European Tissue Repair Society. 2008;16(2):274-87. doi:10.1111/j.1524-475X.2007.00342.x. PMID: 18282267.
[7] Wolfram D, Tzankov A, Pülzl P, et al. Hypertrophic scars and keloids–a review of their pathophysiology, risk factors, and therapeutic management. Dermatologic surgery : official publication for American Society for Dermatologic Surgery [et al.]. 2009;35(2):171-81. doi:10.1111/j.1524-4725.2008.34406.x. PMID: 19215252.
[8] Gauglitz GG, Korting HC, Pavicic T, et al. Hypertrophic scarring and keloids: pathomechanisms and current and emerging treatment strategies. Molecular medicine. 2011;17(1-2):113-25. doi:10.2119/molmed.2009.00153. PMID: 20927486.
[9] Namazi MR, Fallahzadeh MK, Schwartz RA Strategies for prevention of scars: what can we learn from fetal skin?. International journal of dermatology. 2011;50(1):85-93. doi:10.1111/j.1365-4632.2010.04678.x. PMID: 21039435.
[10] Gurtner GC, Dauskardt RH, Wong VW, et al. Improving cutaneous scar formation by controlling the mechanical environment: large animal and phase I studies. Annals of surgery. 2011;254(2):217-25. doi:10.1097/SLA.0b013e318220b159. PMID: 21606834.
[11] Sidgwick GP, Bayat A Extracellular matrix molecules implicated in hypertrophic and keloid scarring. Journal of the European Academy of Dermatology and Venereology : JEADV. 2012;26(2):141-52. doi:10.1111/j.1468-3083.2011.04200.x. PMID: 21838832.
[12] Van De Water L, Varney S, Tomasek JJ Mechanoregulation of the Myofibroblast in Wound Contraction, Scarring, and Fibrosis: Opportunities for New Therapeutic Intervention. Advances in wound care. 2013;2(4):122-141. doi:10.1089/wound.2012.0393. PMID: 24527336.
[13] Lim AF, Weintraub J, Kaplan EN, et al. The embrace device significantly decreases scarring following scar revision surgery in a randomized controlled trial. Plastic and reconstructive surgery. 2014;133(2):398-405. doi:10.1097/01.prs.0000436526.64046.d0. PMID: 24105084.
[14] Arno AI, Gauglitz GG, Barret JP, et al. Up-to-date approach to manage keloids and hypertrophic scars: a useful guide. Burns : journal of the International Society for Burn Injuries. 2014;40(7):1255-66. doi:10.1016/j.burns.2014.02.011. PMID: 24767715.
[15] Longaker MT, Rohrich RJ, Greenberg L, et al. A randomized controlled trial of the embrace advanced scar therapy device to reduce incisional scar formation. Plastic and reconstructive surgery. 2014;134(3):536-546. doi:10.1097/PRS.0000000000000417. PMID: 24804638.
[16] Darby IA, Zakuan N, Billet F, et al. The myofibroblast, a key cell in normal and pathological tissue repair. Cellular and molecular life sciences : CMLS. 2016;73(6):1145-57. doi:10.1007/s00018-015-2110-0. PMID: 26681260.
[17] Finnerty CC, Jeschke MG, Branski LK, et al. Hypertrophic scarring: the greatest unmet challenge after burn injury. Lancet (London, England). 2016;388(10052):1427-1436. doi:10.1016/S0140-6736(16)31406-4. PMID: 27707499.
[18] Kruglikov IL Interfacial Adipose Tissue in Systemic Sclerosis. Current rheumatology reports. 2017;19(1):4. doi:10.1007/s11926-017-0627-y. PMID: 28138823.
[19] Marangoni RG, Lu TT The roles of dermal white adipose tissue loss in scleroderma skin fibrosis. Current opinion in rheumatology. 2017;29(6):585-590. doi:10.1097/BOR.0000000000000437. PMID: 28800024.
[20] Wang PH, Huang BS, Horng HC, et al. Wound healing. Journal of the Chinese Medical Association : JCMA. 2018;81(2):94-101. doi:10.1016/j.jcma.2017.11.002. PMID: 29169897.
[21] Barnes LA, Marshall CD, Leavitt T, et al. Mechanical Forces in Cutaneous Wound Healing: Emerging Therapies to Minimize Scar Formation. Advances in wound care. 2018;7(2):47-56. doi:10.1089/wound.2016.0709. PMID: 29392093.
[22] Lee HJ, Jang YJ Recent Understandings of Biology, Prophylaxis and Treatment Strategies for Hypertrophic Scars and Keloids. International journal of molecular sciences. 2018;19(3). doi:10.3390/ijms19030711. PMID: 29498630.
[23] Larouche J, Sheoran S, Maruyama K, et al. Immune Regulation of Skin Wound Healing: Mechanisms and Novel Therapeutic Targets. Advances in wound care. 2018;7(7):209-231. doi:10.1089/wound.2017.0761. PMID: 29984112.
[24] Rodrigues M, Kosaric N, Bonham CA, et al. Wound Healing: A Cellular Perspective. Physiological reviews. 2019;99(1):665-706. doi:10.1152/physrev.00067.2017. PMID: 30475656.
[25] Nguyen AV, Soulika AM The Dynamics of the Skin’s Immune System. International journal of molecular sciences. 2019;20(8). doi:10.3390/ijms20081811. PMID: 31013709.
[26] Chute M, Aujla P, Jana S, et al. The Non-Fibrillar Side of Fibrosis: Contribution of the Basement Membrane, Proteoglycans, and Glycoproteins to Myocardial Fibrosis. Journal of cardiovascular development and disease. 2019;6(4). doi:10.3390/jcdd6040035. PMID: 31547598.
[27] Walimbe T, Panitch A Proteoglycans in Biomedicine: Resurgence of an Underexploited Class of ECM Molecules. Frontiers in pharmacology. 2019;10:1661. doi:10.3389/fphar.2019.01661. PMID: 32082161.
[28] Atiyeh BS Nonsurgical Management of Hypertrophic Scars: Evidence-Based Therapies, Standard Practices, and Emerging Methods. Aesthetic plastic surgery. 2020;44(4):1320-1344. doi:10.1007/s00266-020-01820-0. PMID: 32766921.
[29] Phan QM, Sinha S, Biernaskie J, et al. Single-cell transcriptomic analysis of small and large wounds reveals the distinct spatial organization of regenerative fibroblasts. Experimental dermatology. 2021;30(1):92-101. doi:10.1111/exd.14244. PMID: 33237598.
[30] He J, Fang B, Shan S, et al. Mechanical stretch promotes hypertrophic scar formation through mechanically activated cation channel Piezo1. Cell death & disease. 2021;12(3):226. doi:10.1038/s41419-021-03481-6. PMID: 33649312.
[31] Mascharak S, desJardins-Park HE, Davitt MF, et al. Preventing Engrailed-1 activation in fibroblasts yields wound regeneration without scarring. Science. 2021;372(6540). doi:10.1126/science.aba2374. PMID: 33888614.
[32] Khurana A, Sayed N, Allawadhi P, et al. It’s all about the spaces between cells: role of extracellular matrix in liver fibrosis. Annals of translational medicine. 2021;9(8):728. doi:10.21037/atm-20-2948. PMID: 33987426.
[33] Cai X, Wang KC, Meng Z Mechanoregulation of YAP and TAZ in Cellular Homeostasis and Disease Progression. Frontiers in cell and developmental biology. 2021;9:673599. doi:10.3389/fcell.2021.673599. PMID: 34109179.
[34] Deng CC, Hu YF, Zhu DH, et al. Single-cell RNA-seq reveals fibroblast heterogeneity and increased mesenchymal fibroblasts in human fibrotic skin diseases. Nature communications. 2021;12(1):3709. doi:10.1038/s41467-021-24110-y. PMID: 34140509.
[35] O’Reilly S, Crofton E, Brown J, et al. Use of tape for the management of hypertrophic scar development: A comprehensive review. Scars, burns & healing. 2021;7:20595131211029206. doi:10.1177/20595131211029206. PMID: 34290886.
[36] Potekaev NN, Borzykh OB, Medvedev GV, et al. The Role of Extracellular Matrix in Skin Wound Healing. Journal of clinical medicine. 2021;10(24). doi:10.3390/jcm10245947. PMID: 34945243.
[37] Eremenko E, Ding J, Kwan P, et al. The Biology of Extracellular Matrix Proteins in Hypertrophic Scarring. Advances in wound care. 2022;11(5):234-254. doi:10.1089/wound.2020.1257. PMID: 33913776.
[38] Liu SY, Wu JJ, Chen ZH, et al. Insight into the role of dermal white adipose tissue loss in dermal fibrosis. Journal of cellular physiology. 2022;237(1):169-177. doi:10.1002/jcp.30552. PMID: 34608987.
[39] Wen D, Gao Y, Ho C, et al. Focusing on Mechanoregulation Axis in Fibrosis: Sensing, Transduction and Effecting. Frontiers in molecular biosciences. 2022;9:804680. doi:10.3389/fmolb.2022.804680. PMID: 35359592.
[40] Qian H, Shan Y, Gong R, et al. Fibroblasts in Scar Formation: Biology and Clinical Translation. Oxidative medicine and cellular longevity. 2022;2022:4586569. doi:10.1155/2022/4586569. PMID: 35602101.
[41] Feng F, Liu M, Pan L, et al. Biomechanical Regulatory Factors and Therapeutic Targets in Keloid Fibrosis. Frontiers in pharmacology. 2022;13:906212. doi:10.3389/fphar.2022.906212. PMID: 35614943.
[42] Ganier C, Rognoni E, Goss G, et al. Fibroblast Heterogeneity in Healthy and Wounded Skin. Cold Spring Harbor perspectives in biology. 2022;14(6). doi:10.1101/cshperspect.a041238. PMID: 35667795.
[43] Hosseini M, Brown J, Khosrotehrani K, et al. Skin biomechanics: a potential therapeutic intervention target to reduce scarring. Burns & trauma. 2022;10:tkac036. doi:10.1093/burnst/tkac036. PMID: 36017082.
[44] Yin J, Zhang S, Yang C, et al. Mechanotransduction in skin wound healing and scar formation: Potential therapeutic targets for controlling hypertrophic scarring. Frontiers in immunology. 2022;13:1028410. doi:10.3389/fimmu.2022.1028410. PMID: 36325354.
[45] Petrou IG, Nikou S, Madduri S, et al. The Role of Hippo Signaling Pathway and ILK in the Pathophysiology of Human Hypertrophic Scars and Keloids: An Immunohistochemical Investigation. Cells. 2022;11(21). doi:10.3390/cells11213426. PMID: 36359821.
[46] Kidzeru EB, Lebeko M, Sharma JR, et al. Immune cells and associated molecular markers in dermal fibrosis with focus on raised cutaneous scars. Experimental dermatology. 2023;32(5):570-587. doi:10.1111/exd.14734. PMID: 36562321.
[47] Lee CC, Tsai CH, Chen CH, et al. An updated review of the immunological mechanisms of keloid scars. Frontiers in immunology. 2023;14:1117630. doi:10.3389/fimmu.2023.1117630. PMID: 37033989.
[48] Berry CE, Downer M Jr, Morgan AG, et al. The effects of mechanical force on fibroblast behavior in cutaneous injury. Frontiers in surgery. 2023;10:1167067. doi:10.3389/fsurg.2023.1167067. PMID: 37143767.
[49] Serror K, Ferrero L, Boismal F, et al. Evidence of inter- and intra-keloid heterogeneity through analysis of dermal fibroblasts: A new insight in deciphering keloid physiopathology. Experimental dermatology. 2023;32(7):1096-1107. doi:10.1111/exd.14817. PMID: 37148203.
[50] Tai Y, Zheng L, Liao J, et al. Roles of the HIF-1α pathway in the development and progression of keloids. Heliyon. 2023;9(8):e18651. doi:10.1016/j.heliyon.2023.e18651. PMID: 37636362.
[51] Knoedler S, Broichhausen S, Guo R, et al. Fibroblasts – the cellular choreographers of wound healing. Frontiers in immunology. 2023;14:1233800. doi:10.3389/fimmu.2023.1233800. PMID: 37646029.
[52] He J, Fang B, Shan S, et al. Mechanical stiffness promotes skin fibrosis through Piezo1-mediated arginine and proline metabolism. Cell death discovery. 2023;9(1):354. doi:10.1038/s41420-023-01656-y. PMID: 37752116.
[53] Song B, Zhu Y, Zhao Y, et al. Machine learning and single-cell transcriptome profiling reveal regulation of fibroblast activation through THBS2/TGFβ1/P-Smad2/3 signalling pathway in hypertrophic scar. International wound journal. 2024;21(3):e14481. doi:10.1111/iwj.14481. PMID: 37986676.
[54] He J, Cheng X, Fang B, et al. Mechanical stiffness promotes skin fibrosis via Piezo1-Wnt2/Wnt11-CCL24 positive feedback loop. Cell death & disease. 2024;15(1):84. doi:10.1038/s41419-024-06466-3. PMID: 38267432.
[55] Chitturi P, Leask A The role of positional information in determining dermal fibroblast diversity. Matrix biology : journal of the International Society for Matrix Biology. 2024;128:31-38. doi:10.1016/j.matbio.2024.02.009. PMID: 38423396.
[56] Talbott HE, Griffin MF, Mascharak S, et al. A tension offloading patch mitigates dermal fibrosis induced by pro-fibrotic skin injections. Research square. 2024. doi:10.21203/rs.3.rs-3915097/v1. PMID: 38464040.
[57] Li Y, Long J, Zhang Z, et al. Insights into the unique roles of dermal white adipose tissue (dWAT) in wound healing. Frontiers in physiology. 2024;15:1346612. doi:10.3389/fphys.2024.1346612. PMID: 38465261.
[58] Rennekampff HO, Tenenhaus M, Rennekampff I, et al. Roles of Mechanosensitive Channel Piezo1 in Wound Healing and Scar Formation. Life (Basel, Switzerland). 2024;14(3). doi:10.3390/life14030377. PMID: 38541702.
[59] Chu CQ, Quan T Fibroblast Yap/Taz Signaling in Extracellular Matrix Homeostasis and Tissue Fibrosis. Journal of clinical medicine. 2024;13(12). doi:10.3390/jcm13123358. PMID: 38929890.
[60] Boraldi F, Lofaro FD, Bonacorsi S, et al. The Role of Fibroblasts in Skin Homeostasis and Repair. Biomedicines. 2024;12(7). doi:10.3390/biomedicines12071586. PMID: 39062158.
[61] Chen Z, Gao J, Li L New challenges in scar therapy: the novel scar therapy strategies based on nanotechnology. Nanomedicine (London, England). 2024;19(28):2413-2432. doi:10.1080/17435889.2024.2401768. PMID: 39325688.
[62] Kohlhauser M, Mayrhofer M, Kamolz LP, et al. An Update on Molecular Mechanisms of Scarring-A Narrative Review. International journal of molecular sciences. 2024;25(21). doi:10.3390/ijms252111579. PMID: 39519131.
[63] Wu Z, Wang Z, Chen T, et al. Dermal white adipose tissue: A new modulator in wound healing and regeneration. Regenerative therapy. 2025;28:115-125. doi:10.1016/j.reth.2024.11.015. PMID: 39717110.
[64] Al Mamun A, Shao C, Geng P, et al. Recent advances in the role of neuroregulation in skin wound healing. Burns & trauma. 2025;13:tkae072. doi:10.1093/burnst/tkae072. PMID: 39872039.
[65] Su X, Zhou X, Tang Y, et al. Modified Buried Vertical Mattress Suture Combined With Tension-Reducing Tape in Forearm Tattoo Resection-A Retrospective Study. Journal of cosmetic dermatology. 2025;24(6):e70266. doi:10.1111/jocd.70266. PMID: 40439283.
[66] Xu X, Wang L, Bi X, et al. Targeted silencing of Engrailed-1 reprograms profibrotic fibroblast lineage for scarless wound healing. Molecular therapy : the journal of the American Society of Gene Therapy. 2025;33(10):4889-4903. doi:10.1016/j.ymthe.2025.07.031. PMID: 40708196.
[67] Dong X, Gao M, Guo H, et al. The regulatory role of immune microenvironment-related cells and pathways in the pathogenesis of keloids. Frontiers in immunology. 2025;16:1529564. doi:10.3389/fimmu.2025.1529564. PMID: 40718487.
[68] Zhao M Burn scar pain: from mechanisms to treatments. Frontiers in physiology. 2025;16:1627798. doi:10.3389/fphys.2025.1627798. PMID: 41070147.
[69] Chinese Burn Association Clinical practice guideline for pediatric scar prevention and treatment (2025 edition). Burns & trauma. 2025;13:tkaf065. doi:10.1093/burnst/tkaf065. PMID: 41281968.
[70] Liu J, Yan J, Qi S, et al. The PI3K/AKT/mTOR pathway in scar remodeling and keloid formation: mechanisms and therapeutic perspectives. Frontiers in pharmacology. 2025;16:1678953. doi:10.3389/fphar.2025.1678953. PMID: 41424791.
[71] Shilova M, Plummer K, Ware R, et al. Laser-Assisted Drug Delivery for Hypertrophic Scar Treatment: A Scoping Review. Journal of burn care & research : official publication of the American Burn Association. 2026;47(1):130-146. doi:10.1093/jbcr/iraf167. PMID: 40971504.
[72] Agramunt J, Kang Y, Rinkevich Y Spatiotemporal dynamics of mammalian wound healing. Cell discovery. 2026;12(1):4. doi:10.1038/s41421-025-00865-2. PMID: 41535676.
[73] Wu M, Zhang J, Xiong N, et al. Exosomes in Hypertrophic Scars and Keloids: Mechanisms and Therapeutic Potentials-A Narrative Review. Journal of cosmetic dermatology. 2026;25(2):e70705. doi:10.1111/jocd.70705. PMID: 41612955.
[74] Kang Y, Yang Y, Yao B, et al. Scar Inhibition in Wound Healing: Mechanisms, Design, and Recent Advances. Exploration (Beijing, China). 2026;6(1):20240517. doi:10.1002/EXP.20240517. PMID: 41810075.
[75] Niti A, Kouzi-Koliakou K, Michopoulou A Fibroblast Lineage Switching as the Developmental Origin of Scarring and Target for Regenerative Healing. Biology. 2026;15(5). doi:10.3390/biology15050409. PMID: 41823836.
[76] Mo J, Huang H, Zhu B, et al. Exploring the Complexities of TGF-β Signaling in Keloids: Beyond the Classical Smad Pathway. International journal of molecular sciences. 2026;27(8). doi:10.3390/ijms27083600. PMID: 42074238.
[77] Grinis D, Thomas M, Aprigliano C, et al. Refractory Keloids and Hypertrophic Scars: Immune Dysregulation and Neuroimmune Mechanisms Underlying Treatment Failure. Cells. 2026;15(9). doi:10.3390/cells15090782. PMID: 42121883.
[78] Wu H, Dong X POSTN(+) fibroblasts and SPP1(+) macrophages in scar formation: A review of mechanisms and therapeutic targets (Review). Molecular medicine reports. 2026;34(1). doi:10.3892/mmr.2026.13902. PMID: 42138176.
[79] Fu B, Meng H, Liang M, et al. Low-modulus hydrogels reduce scar formation in wound healing. Acta biomaterialia. 2026;218:365-377. doi:10.1016/j.actbio.2026.06.017. PMID: 42263899.
[80] Lu B, Jin J, Jin W, et al. Extracellular vesicle-mediated cell-cell communication in keloids and hypertrophic scars: mechanisms, methodological caveats, and therapeutic perspectives. Frontiers in cell and developmental biology. 2026;14:1818463. doi:10.3389/fcell.2026.1818463. PMID: 42306298.
[81] Chen B, Lin C, Wang X, et al. HIF-1α/NREP axis promotes hypertrophic scar fibroblast proliferation and collagen deposition via activation of the TGF-β1/Smad pathway. Biology direct. 2026;21(1). doi:10.1186/s13062-026-00855-8. PMID: 42332798.
[82] Shah J, Bhatt A, Yu S, et al. The Role of Hyaluronan in Keloid and Hypertrophic Scar Pathogenesis and Treatment. Plastic surgery (Oakville, Ont.). 2026:22925503261457127. doi:10.1177/22925503261457127. PMID: 42345033.
[83] Mohyeddin A, Qi F Targeting macrophage function with botulinum toxin: a novel translational strategy for preventing and treating pathological scars. Postepy dermatologii i alergologii. 2026;43(3):221-232. doi:10.5114/ada.2026.162707. PMID: 42621324.
[84] Liu M A panoramic analysis of keloid pathogenesis: multidimensional network regulation of genetics-immunity-metabolism-mechanical force. Frontiers in immunology. 2026;17:1936809. doi:10.3389/fimmu.2026.1936809. PMID: 42719615.
[85] Mercy DJ, Girigoswami K, Girigoswami A Mechanistic Pathways of Wound Healing: From Hemostasis to Scar-Free Regeneration. Cell biochemistry and function. 2026;44(9):e70309. doi:10.1002/cbf.70309. PMID: 42755399.
[86] Yu Y, Zhu J, Ma L, et al. Endothelial system dysregulation underlies keloid development and therapeutic targeting. Frontiers in cell and developmental biology. 2026;14:1919403. doi:10.3389/fcell.2026.1919403. PMID: 42787495.
[87] Liu T, Liu Y, Liu Y, et al. Extracellular vesicles in wound healing and scar formation: molecular regulation of macrophages, fibroblasts, and their crosstalk. Frontiers in cell and developmental biology. 2026;14:1917543. doi:10.3389/fcell.2026.1917543. PMID: 42798851.
[88] Thangboonjit W, Pluempreecha M, Soingam T, et al. NRF2 in hypertrophic scarring: A stage-dependent redox hub poised between resolution and persistence. Redox biology. 2026;98:104460. doi:10.1016/j.redox.2026.104460. PMID: 42962377.
[89] Zhang Y, Wang X, Zhou J, et al. Bioinformatics Across the Cutaneous Scar Spectrum: Molecular States, Digital Phenotypes and Clinical Translation. Clinical, cosmetic and investigational dermatology. 2026;19:648008. doi:10.2147/CCID.S648008. PMID: 42964832.
相关专页:内减张技术专页 · 全量文章索引 · 医生主页 · 治疗案例记录
相关问答:疤痕增生期多久结束? · 疤痕可以完全消除吗? · 缝线疤痕多久变淡?时间线
关于本文:本文撰写与审核:吕开阳,执业医师,整形外科(主任医师),上海三甲医院。本站为个人科普站点,内容为医学教育材料,不构成对任何个体的诊疗建议;诊断与治疗方案须由具备资质的医师面诊确定,效果存在个体差异。本站不提供在线诊疗与首诊,就医请通过医院官方渠道挂号。沪ICP备2025119709号-1