发布于 2026-11-14 · 内容最后核查:2026-11-18 · 撰写与审核:吕开阳(执业医师,整形外科·主任医师,上海三甲医院)
描 述 性 综 述 · N A R R A T I V E R E V I E W
机械力对皮肤瘢痕增生作用机制的描述性综述
——近二十年(2006—2026)基础与转化研究进展
━━━━━━━━━━━━━━━━━━━━━━━━━━━━
| 检索时间范围 | 2006 年 1 月 — 2026 年 11 月 |
|---|---|
| 检索通道 | BioMCP:PubMed / Europe PMC / PubTator3;NCBI E-utilities 逐条核对 |
| 核心引文 | 101 篇(含 DOI 与 PMID) |
| 内容结构 | 14 章 · 7 图 · 5 表 · 3 附录 |
| 成文日期 | 2026 年 11 月 13 日 |
本文由系统化文献检索与证据整合撰写,仅供学术交流与教学参考,不替代临床诊疗决策。
目 录
(目录占位:在 Word 中选中后按 F9 或右键「更新域」即可生成带页码的目录)
阅读提示:文中方括号上标为参考文献序号,与文末「参考文献」一一对应;图题按出现顺序编号,表题独立编号;所有数值均标注原始出处。
文体说明:本文为描述性综述(narrative review)。文献检索采用系统化策略并逐条核对引文信息,但不进行效应量合并、不作 PRISMA 系统评价,重点在于对机制链条进行分层梳理、解释与整合。
摘要
皮肤创伤后的病理性瘢痕——增生性瘢痕(hypertrophic scar, HTS)与瘢痕疙瘩(keloid)——长期被视为”愈合过度”的生化事件,治疗思路集中于抗炎、抗增殖与抑制胶原合成。近二十年的研究彻底改变了这一认识:机械力不再被看作瘢痕形成之后的加重因素,而是被证明可以在无任何其他致病条件下独立启动瘢痕增生。2007 年 Aarabi 等利用小鼠背部牵张模型首次证实,仅在创面增殖期施加 1 周机械负荷,即可产生持续 6 个月以上、体积与细胞密度均增加约 20 倍、组织学上与人增生性瘢痕高度一致的病灶[1]。此后,从整合素–黏着斑激酶(FAK)到机械敏感离子通道 Piezo1,从 Hippo–YAP/TAZ 到 Engrailed-1 成纤维细胞谱系开关,从潜伏 TGF-β1 的力学释放到细胞外基质(ECM)刚度驱动的代谢重编程,一条”组织力学 → 分子感受 → 核内转录 → 细胞行为 → ECM 硬化 → 力学进一步放大”的完整因果链被逐步拼合。本文检索 2006 年 1 月至 2026 年 11 月 PubMed、Europe PMC、PubTator3 等数据库收录的相关文献,经 NCBI E-utilities 逐条核对后纳入核心引文 101 篇,按”力的来源—力学感受器—信号转导—细胞与组织效应—时间窗口—表型差异—反向验证—临床转化”的逻辑展开描述,重点讨论六个关键节点:①整合素–FAK–ERK–MCP-1/CCL2 把物理力翻译为趋化与炎症信号;②YAP/TAZ 依赖性 Engrailed-1 激活决定”纤维化修复”与”再生性修复”的分叉;③整合素介导的收缩力直接激活 ECM 中储备的潜伏 TGF-β1;④Piezo1–Ca²⁺–YAP 与 Piezo1–Wnt2/Wnt11–CCL24 构成炎症–力学正反馈;⑤刚度上调精氨酸/脯氨酸代谢为胶原合成提供底物;⑥力学记忆与 HOX 张力敏感表达使短暂负荷产生长期表型。文末讨论现有证据的异质性、力学剂量学缺失、”牵张”与”压迫”方向性矛盾等争议,并提出以标准化力学测量、单细胞空间多组学、机械–免疫–代谢耦合和闭环智能敷料为方向的转化路径。
关键词:机械力;机械转导;皮肤张力;增生性瘢痕;瘢痕疙瘩;成纤维细胞;肌成纤维细胞;整合素;黏着斑激酶;Piezo1;YAP/TAZ;Engrailed-1;细胞外基质刚度;减张治疗
1 引言:从”伴随现象”到”始动病因”
成年哺乳动物皮肤损伤后以纤维化瘢痕而非功能性再生收场,其代价是皮肤附件缺失、胶原架构由”篮状”变为”平行致密束”、力学强度与弹性下降,严重者出现挛缩与功能障碍。传统病因学将病理性瘢痕归因于遗传易感性、炎症失控、TGF-β 过度表达、成纤维细胞凋亡抵抗与胶原代谢失衡[25,49,94]。这些解释能够描述”瘢痕里发生了什么”,却难以回答一系列临床长期悬而未决的问题:为什么瘢痕疙瘩高度选择性地发生于前胸、肩胛、下颌角,而几乎不出现在头皮与小腿胫前?为什么跨越关节、垂直于皮纹的切口更容易增宽隆起?为什么减张缝合、胶布固定、压力衣这些纯物理手段能改变瘢痕结局?为什么瘢痕疙瘩切除后复发几乎总是从张力最大的边缘开始?
2008 年 Ogawa 提出一个在当时颇具颠覆性的假说:皮肤纤维增殖性疾病本质上是机械感受器或机械敏感伤害感受器功能障碍,牵张张力不仅促进既有病灶生长,更驱动其发生[4];随后 Yagmur 等系统梳理了机械受体相关机制并给出临床管理推论[5]。这一假说在随后十年获得了从流行病学、动物模型到分子遗传学的多层验证。Ogawa 团队 2012 年测绘了 483 例日本患者共 1 500 处瘢痕疙瘩的解剖分布,同时测量 8 名健康志愿者 9 个部位在日常活动中的皮肤牵拉/收缩率,发现头皮与小腿胫前牵拉率最低且几乎无瘢痕疙瘩,而前胸(48.9%)与肩胛区(26.9%)合计占全部病灶的四分之三以上[14]。2024 年 Cho 等进一步把面颈部 113 例瘢痕疙瘩的分布与 VECTRA 三维成像、超声、压痕仪测得的皮肤厚度与刚度随姿势/表情的变化关联,发现下颌角(41.3%)与颏下外侧(20.0%)的高发与姿势相关的刚度改变显著相关,而与皮脂腺密度或痤疮好发部位无关[80]。
真正把”相关”推进到”因果”的是动物模型。Aarabi 等的牵张模型显示机械负荷本身即充分(sufficient)致瘢痕[1];Wong 等证明成纤维细胞特异性 FAK 敲除或 MCP-1 敲除小鼠在同样负荷下几乎不形成瘢痕[11];Mascharak 等证明阻断 YAP 或敲除成纤维细胞 YAP 可阻止 Engrailed-1 激活,使创面走向附带毛囊与皮脂腺再生的”无瘢痕愈合”[45]。至此,机械力完成了从”加重因素”到”始动因素”、从”物理背景”到”可药物干预的信号源”的身份转变。Wong、Gurtner 与 Ogawa 等把这一范式概括为”创面机械转导”:细胞与基质之间存在双向的力学对话,力的失衡本身即构成疾病[8,9,12];Cao 等 2024 年的专题综述进一步把生物力学因素确立为病理性瘢痕形成与治疗的核心变量[77]。
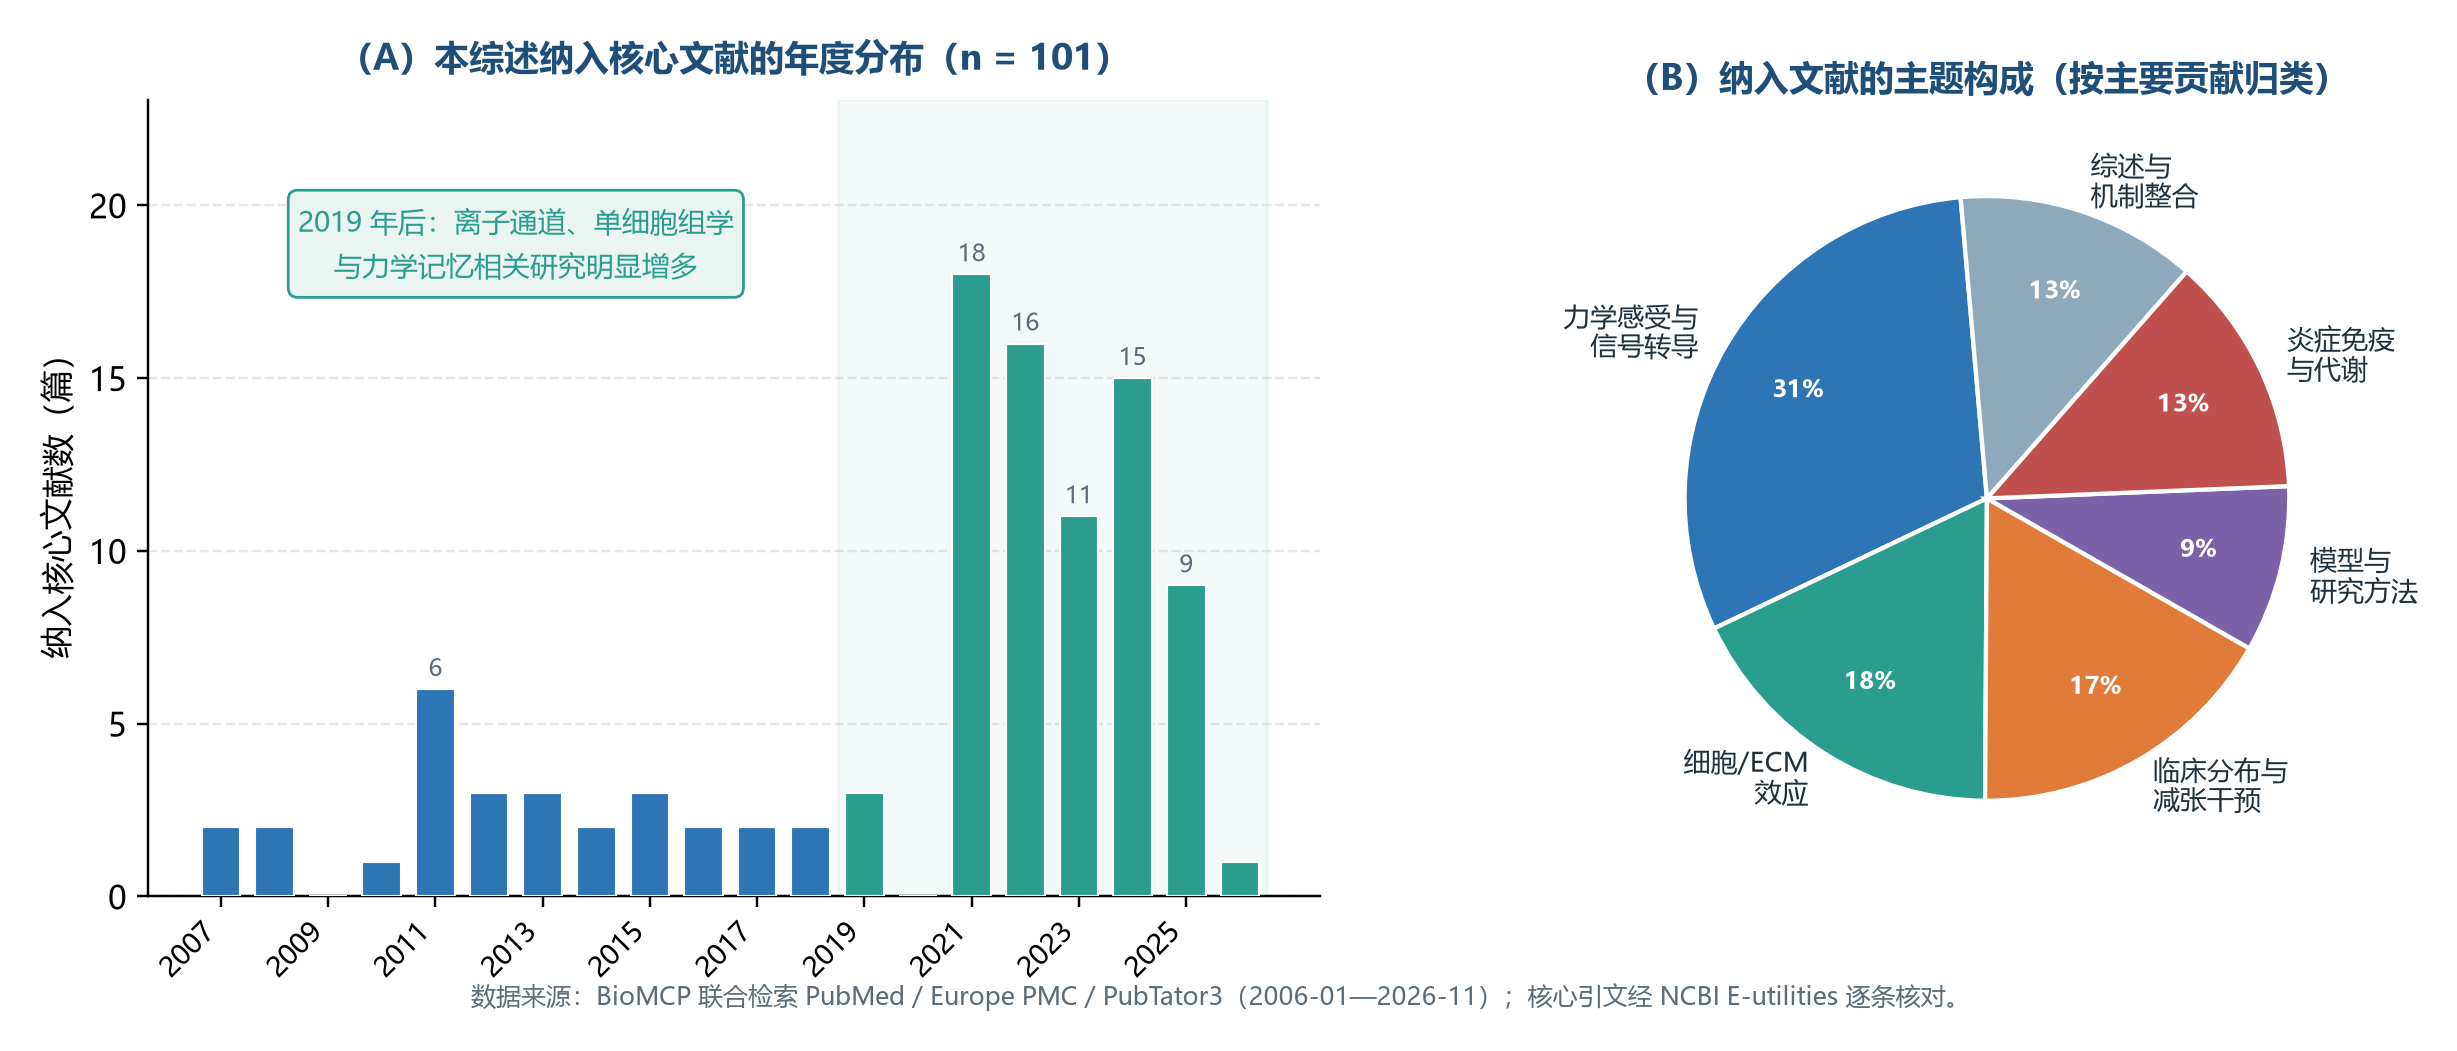
图1 本综述纳入核心文献的年度分布与主题构成
2 文献检索与证据基础
2.1 检索策略
以 BioMCP 文献检索通道联合查询 PubMed、Europe PMC 与 PubTator3,时间窗设为 2006-01-01 至 2026-11-13。中文/英文检索主题词组合包括:mechanical force / mechanical tension / mechanical stretch / mechanotransduction / matrix stiffness / mechanosensitive channel 与 hypertrophic scar / keloid / skin fibrosis / scar formation 的交叉;并针对关键分子与通路追加专门检索(YAP/TAZ、Engrailed-1、Piezo1/2、TRPV4、TRPC3、FAK、integrin、latent TGF-β、RhoA/ROCK、MCP-1、HOX、mechanical memory 等);临床侧追加 tension reduction、tape、silicone、pressure therapy、botulinum toxin、Z-plasty、stress shielding。对检出的核心条目,通过 NCBI E-utilities efetch 逐条抓取并解析作者、刊名、年份、卷期页码、DOI 与摘要,用于核对事实与生成参考文献。剔除与皮肤瘢痕机制无直接关系的条目(如肺癌机械牵拉、角膜纤维化等)以及重复记录后,形成 101 篇核心引文。
2.2 证据的时间结构
纳入文献呈现明显的两阶段特征(图1A)。2007—2018 年为”框架建立期”:以 Organ 水平的张力测量、mechanoreceptor 假说、小鼠牵张模型、FAK–炎症轴、潜伏 TGF-β 力学激活与 YAP/TAZ 基础生物学为主,年均 2—3 篇。2019 年后进入”机制细化期”:Piezo1/2 等机械敏感通道、基质刚度–代谢重编程、单细胞转录组定义的力学响应性成纤维细胞亚群、核骨架力学传导、机械记忆与命运重编程集中出现,2021—2025 年占纳入文献的多数。主题构成上,力学感受与信号转导约占三成,细胞/ECM 效应与临床减张干预各占约六分之一(图1B)。值得注意的是,中文临床研究(如减张缝合技术、压力治疗、A 型肉毒毒素)在近五年明显增多,但多数仍缺少客观的力学剂量记录[83,95,97]。
2.3 证据等级与本文的处理原则
本文按”人群分布关联 → 在体因果模型 → 离体机制 → 分子干预反向验证”的顺序组织证据,并在第 13 章集中讨论其局限。凡涉及具体数值(如”20 倍””48.9%””1 周””6 个月”)均直接来自所引文献的原始数据或摘要,不作外推;凡属跨组织外推(如肺成纤维细胞的 MKL1 机制、心肌成纤维细胞的整合素 β3/β5 机制)均明确标注为”跨组织证据”。
3 机械力的类型与生物力学来源
皮肤是一个持续承受预应力的黏弹性薄壳。理解瘢痕的力学生物学,首先要区分力的来源、方向、时间谱与尺度。
3.1 外源性力与内源性力
外源性包括静态皮肤张力(由 Langer 线、皮肤各向异性、体位与体重决定)、动态牵拉(关节屈伸、呼吸、表情、吞咽)、手术缝合张力、组织扩张、外部压迫(压力衣、压力垫)与剪切力。内源性则来自肌成纤维细胞的肌动球蛋白收缩、细胞迁移牵引力、胶原交联与沉积带来的基质硬化、以及组织水肿产生的肿胀压[55,64,74]。二者在创缘叠加:一个线性切口打断了原有张力线的连续性,载荷必须绕过切口两端重新分布,造成创缘应力集中;伤口越宽、越垂直于皮纹、越靠近高活动度部位,局部应力越高[9,65,78]。
说明:此处的”应力集中”是连续介质力学的必然结果,也是有限元模拟与应力屏蔽敷料设计的共同出发点[65,78]。
3.2 力的时空特征:强度、频率、方向与持续时间
同样”大小”的力,生物学后果可以完全不同。周期性牵拉(cyclic stretch)与静态持续牵张激活的通道与转录程序并不一致;10% 幅度、0.1 Hz、连续 5 天的周期性牵张即可使人真皮成纤维细胞获得与增生性瘢痕肌成纤维细胞相同的 α-SMA、TGF-β1、I 型胶原与 lamin A/C 表型[63];可拉伸 PDMS 平台模拟骨骼肌周期性牵张,则使瘢痕疙瘩成纤维细胞 TGF-β/Smad 与 I 型胶原进一步升高、细胞骨架成分增加[85]。相反,压力治疗施加的是压缩而非牵张,其抗瘢痕效应涉及不同的分子事件(见 6.6 与 11.2)[70]。
力的方向性同样重要:正常成纤维细胞在单轴牵张下会沿垂直于牵拉方向重排,并把胶原纤维整理为线性束,形成”细胞—基质—细胞”的长程机械通讯;瘢痕疙瘩中高表达的 asporin 使胶原基质钙化、阻碍这种线性重排,细胞因此无法完成正常的机械通讯与终末分化,停留在高增殖、持续分泌 ECM 的”未成熟”状态[43]。这一发现提示:力的致病性不仅取决于大小,还取决于组织能否正确地”读取”和”传导”它。
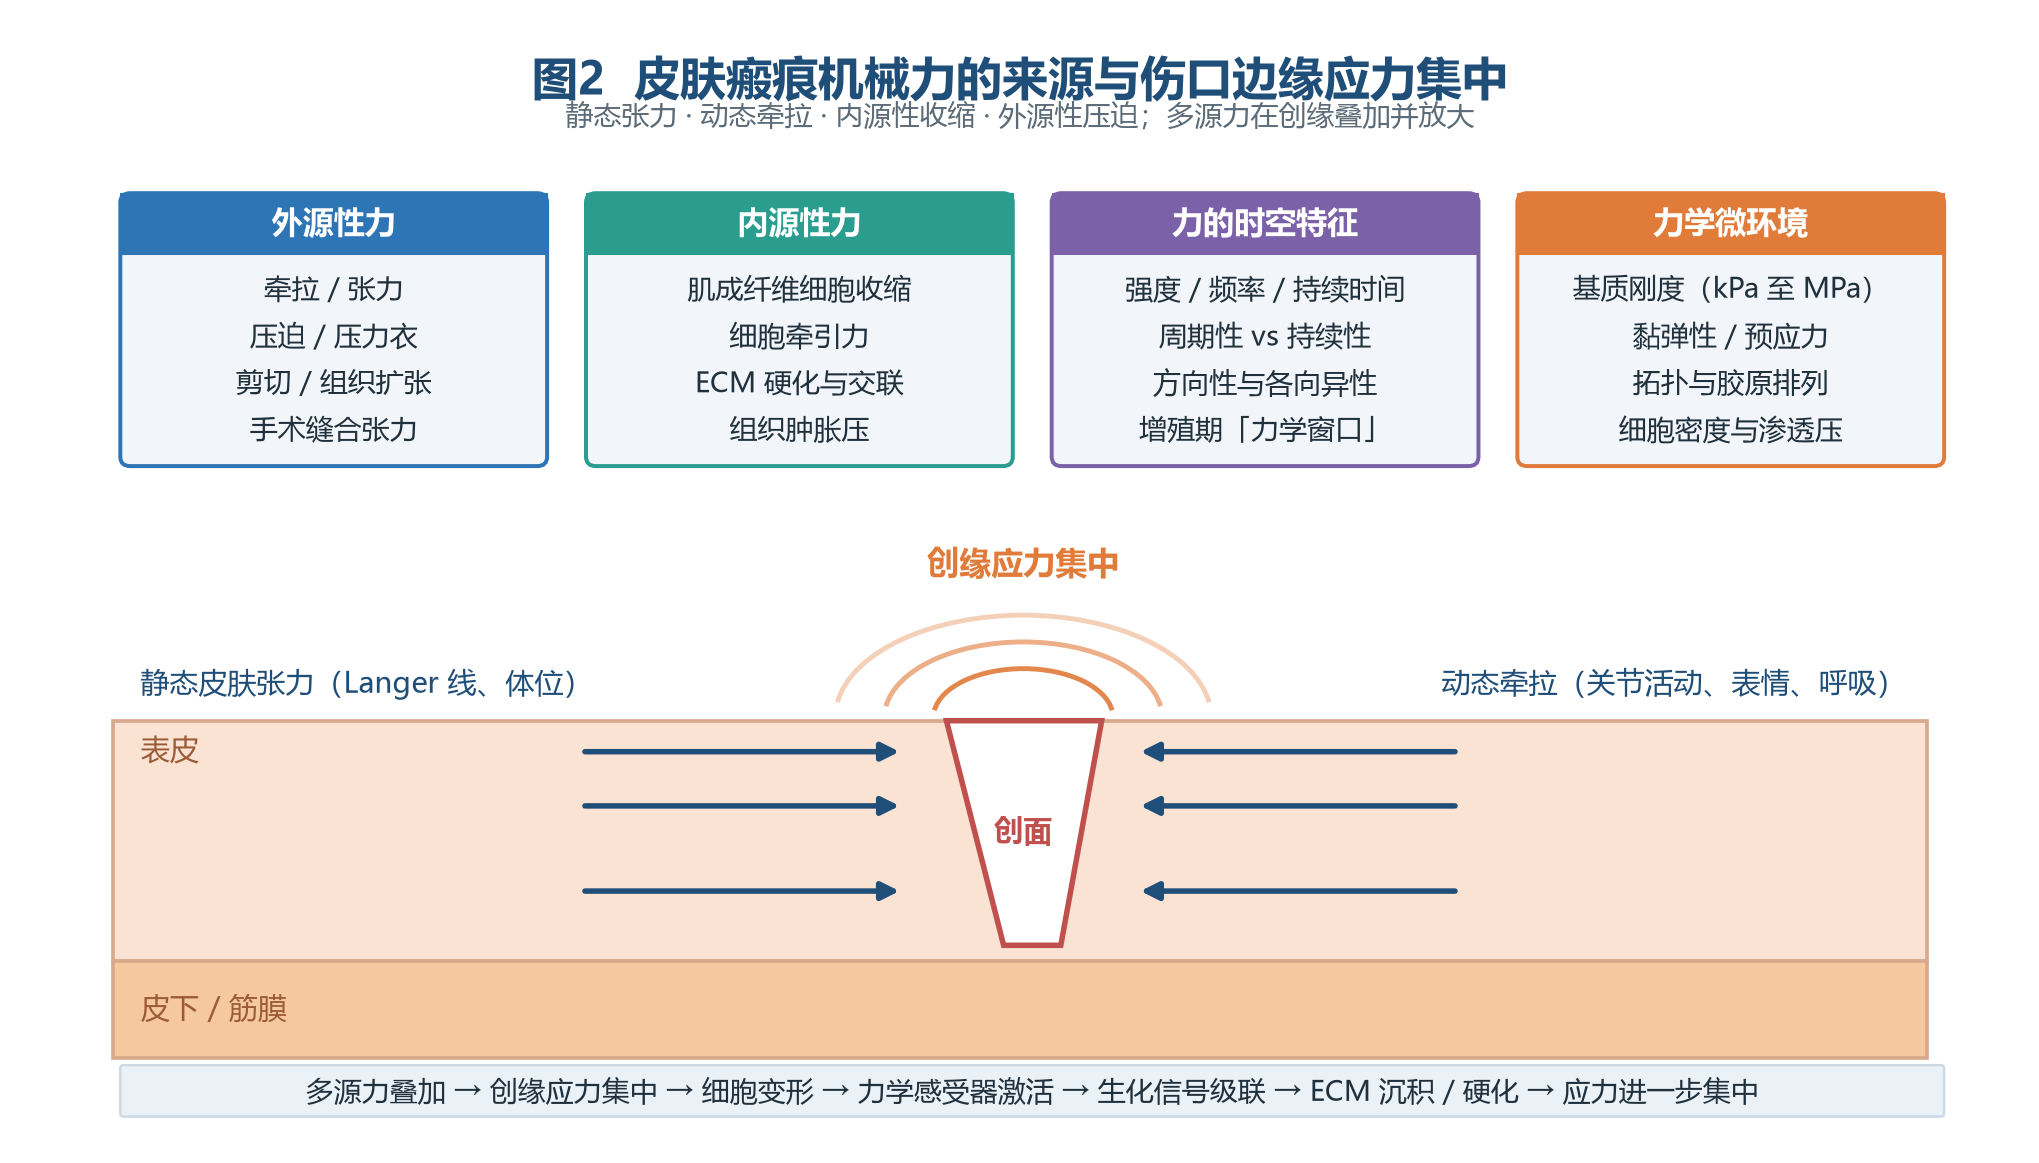
图2 皮肤瘢痕机械力的来源与伤口边缘应力集中
3.3 基质刚度:既是结果也是原因
正常真皮的弹性模量在 kPa 量级,而纤维化瘢痕因胶原 I/III 沉积、赖氨酰氧化酶(LOX)交联与蛋白聚糖改变可上升一个数量级以上[52,74]。刚度升高本身即是强力的促纤维化信号:在软/硬聚丙烯酰胺基质上培养真皮成纤维细胞,硬基质即可独立诱导肌成纤维细胞分化[13,22]。更重要的是,Wang 等指出刚度与纤维化构成”正反馈闭环”:ECM 沉积 → 刚度升高 → 力学信号增强 → 更多 ECM 沉积[74]。He 等在 2023—2024 年的系列工作中把这一闭环具体化:Piezo1 在纤维化皮肤中上调,敲低 Piezo1 后即使置于硬基质,成纤维细胞也丧失纤维增殖表型;Piezo1 经 Wnt2/Wnt11 诱导 CCL24 分泌,而 CCL24 相关炎症又进一步硬化基质,AAV 介导的 Piezo1 敲低可同时降低皮肤硬度与纤维化进展[82]。
4 力学感受:从细胞膜到细胞核
细胞把物理变形转换为生化信号,依赖一组分布在不同尺度的”力学感受器”。近二十年的进展很大程度上就是这套感受器清单不断扩充的过程(表1);Yang、Plotnikov 与 Wen 等分别从”感受—转导—效应”轴和纤维化的力学敏感性角度作过系统梳理[48,62]。
表1 皮肤瘢痕相关力学感受器分类
| 层级 | 代表分子 / 结构 | 主要激活方式 | 下游近端信号 | 代表性证据 |
|---|---|---|---|---|
| 细胞–基质黏附 | 整合素 αvβ3/β5/β1、talin、vinculin、FAK、Src、ILK、paxillin | 张力使黏着斑成熟、蛋白构象展开 | FAK–ERK、PI3K–AKT、RhoA | [11,16,59] |
| 机械敏感阳离子通道 | Piezo1、Piezo2、TRPV4、TRPC3 | 膜张力、剪切、基质硬度、低频超声 | Ca²⁺ 内流、NF-κB、AKT | [21,26,37,92,99] |
| 细胞骨架 | F-actin、RhoA/ROCK、肌球蛋白 II、MRTF-A/MKL1–SRF | 应力纤维张力和肌动蛋白聚合状态 | MKL1 核转位、α-SMA 转录 | [13,44] |
| 核骨架 / LINC | Nesprin-2、lamin A/C、Emerin | 细胞骨架直接牵拉核膜 | 核形变、染色质可及性、YAP 核转位 | [63,90] |
| 受体 / 膜蛋白 | NRP1、FAPα、CD74 | 压迫、刚度、牵张 | LATS1–YAP、PI3K–AKT、ERK | [70,81,91] |
| 基质架构层面 | 胶原线性排列、asporin、纤连蛋白、预应力 | 细胞间长程机械通讯 | 整合成纤维细胞群体行为 | [18,43] |
4.1 整合素–黏着斑:经典的力学—生化转换枢纽
整合素把 ECM 与细胞内肌动骨架物理连接。张力使 talin/vinculin 展开、黏着斑成熟并招募 FAK/Src,后者再激活 ERK、PI3K 与 RhoA[9,16]。这一模块在皮肤瘢痕中的核心地位由 Wong 等 2011 年的工作确立:皮肤损伤后 FAK 被激活,机械负荷进一步放大该过程;成纤维细胞特异性 FAK 敲除小鼠在增生性瘢痕模型中炎症与纤维化显著减轻;机制上 FAK 经 ERK 触发 MCP-1(CCL2)分泌,MCP-1 敲除小鼠几乎不形成瘢痕,小分子 FAK 抑制剂在人细胞与在体模型中均可复现该保护效应[11]。Rustad 等随后专门综述了黏着斑复合体在成纤维细胞机械转导与瘢痕形成中的作用[16]。Petrou 等的免疫组化研究显示,瘢痕疙瘩与增生性瘢痕中 YAP/TAZ、TEAD4、ILK、α-SMA 表达均升高(疙瘩高于增生性瘢痕,正常皮肤阴性),且 ILK 与 Hippo 效应分子显著正相关,为”黏着斑–Hippo”串联提供了人体组织学证据[59]。
4.2 机械敏感离子通道:毫秒级的 Ca²⁺ 入口
Piezo1 是近五年最突出的发现。He 等 2021 年报道 Piezo1 在人与大鼠增生性瘢痕的肌成纤维细胞中过表达;周期性机械牵张提高人真皮成纤维细胞 Piezo1 表达与 Ca²⁺ 内流,促进增殖、迁移与分化;皮内注射 Piezo1 阻断肽 GsMTx4 可保护大鼠免于牵张诱导的瘢痕形成[37]。2025 年 Liao 等把这条通路延伸到瘢痕疙瘩:患者来源疙瘩成纤维细胞 Piezo1 升高,单细胞转录组显示 Piezo1 与 YAP 相关;Piezo1 通过 Ca²⁺ 流促进 YAP 核转位,上调 CCN1/CCN2 等促黏附信号;GsMTx4 与 verteporfin 处理人疙瘩异种移植模型可缩小体积、降低 I/III 型胶原比,并改善弹性、黏弹性与表面粗糙度(原子力显微镜验证)[99]。Rennekampff 与 Liu 等分别综述了 Piezo1 在创面愈合/瘢痕形成及慢性炎症中的力感知作用[56,89]。
Piezo2 提供了另一个维度。Akita 等 2025 年发现,与淋巴水肿相比,瘢痕疙瘩组织 COL1A2、PIEZO2、POSTN 显著升高;PIEZO2 与 COL1A2(r = 0.925)、POSTN(r = 0.911)强相关,复发疙瘩的 PIEZO2 高于非复发者;单细胞层面 PIEZO2 上调见于血管/淋巴管内皮细胞与一个成纤维细胞亚群,免疫组化定位于血管周围基质活跃区并伴炎症细胞浸润[92]。低频超声也被证明可经 Piezo1 调节疙瘩成纤维细胞表型,说明物理能量本身可成为可控的力学输入[84]。
TRP 家族构成互补通路。Ishise 等证明 TRPC3 在人增生性瘢痕中高表达,周期性牵张经 TRPC3–NF-κB 上调纤连蛋白,TRPC3 过表达成纤维细胞移植到小鼠后促进创面收缩与纤连蛋白沉积,为”反复机械力 → 瘢痕挛缩”提供了机制解释[21]。Sharma 等证明 TRPV4 在人和小鼠真皮成纤维细胞中功能性表达,其拮抗或基因消融可阻断 TGF-β1 与基质刚度共同诱导的肌成纤维细胞分化(经 AKT 而非 Smad2/3 非经典通路)[26];Adapala 等对该通道在纤维化中的机械转导作用作了系统综述[32]。
4.3 细胞骨架与 RhoA/ROCK–MRTF-A 轴
力学信号不必全部经由膜受体。Huang 等在肺成纤维细胞中证明(跨组织证据,机制高度保守):硬基质促进 RhoA/ROCK 活化与 F-actin 聚合,使 MRTF-A/MKL1 由胞质转位入核并结合 α-SMA 启动子;Mkl1 缺失细胞对刚度不再响应,回补人 MKL1 可恢复[13]。RhoA/ROCK–YAP/TAZ 轴在多种纤维化模型中被反复验证[44,62]。Dupont 等 2011 年的奠基性工作进一步指出,YAP/TAZ 作为 ECM 刚度与细胞形状的核内中继,依赖 Rho GTPase 与肌动球蛋白张力,却不依赖 Hippo/LATS 级联[6];其后续综述把黏附介导的信号与机械转导统一到同一框架[23]。
4.4 核骨架与 LINC 复合体:力直达染色质
近五年一个重要的观念变化是:细胞核本身是力学感受器。Xu 等用 10% 幅度、0.1 Hz 的周期性牵张建立人真皮成纤维细胞的增生性瘢痕模型,发现第 5 天细胞即呈现与未牵张肌成纤维细胞相同的力学与生化特征;沉默 LINC 复合体成分 Nesprin-2 可降低 lamin A/C、α-SMA、TGF-β1 与 I 型胶原,并阻断牵张诱导的终末分化[63]。Yang 等以不同刚度聚丙烯酰胺水凝胶结合原子力显微镜发现,硬基质与空间限制提高核膜蛋白 Emerin 表达并改变分化;敲低 Emerin 后刚度与限制因素不再影响分化,细胞变软、迁移加快[90]。这些结果把”基质刚度/拓扑 → 核骨架蛋白 → 染色质与转录”补成了一条完整链路。
4.5 细胞间机械通讯与 ECM 架构
成纤维细胞不是孤立地感受力。Liu 等 2021 年提出”胶原基质介导的细胞间机械通讯”概念:正常真皮成纤维细胞在牵张下垂直于力轴重排、收缩胶原网格,并把收缩力经线性胶原束传递给邻近细胞,从而协同完成分化;瘢痕疙瘩中高表达的 asporin 诱导胶原钙化,使网格无法线性重排、力学信号无法在细胞间传递,成纤维细胞因而被”锁定”在未成熟、高增殖、大量分泌 ECM 的状态,最终形成侵袭性生长;把 asporin 过表达成纤维细胞注入小鼠创面可复现疙瘩样胶原组织学[43]。Klingberg 等则从 ECM 侧提出”预应力”概念:细胞预先重塑并拉紧的 ECM 像上紧的弹簧,使潜伏 TGF-β1 更易被后续收缩力激活[18]。

图3 机械力驱动皮肤瘢痕增生的多层级机制通路
5 核心信号通路:物理信号如何写成纤维化程序
表2 关键机械转导通路及其在瘢痕中的效应
| 通路 | 力学输入 | 核心节点 | 主要输出 | 关键文献 |
|---|---|---|---|---|
| Integrin–FAK–ERK–MCP-1 | 牵张负荷 | FAK、ERK、CCL2 | 单核/巨噬细胞募集、炎症延长、纤维化 | [10,11] |
| Hippo–YAP/TAZ–TEAD | 刚度、细胞铺展、牵张 | YAP/TAZ、TEAD、LATS1 | CCN2、COL1A1、ACTA2;En1 谱系开关 | [6,45,54] |
| 潜伏 TGF-β1 力学激活 | 肌成纤维细胞收缩 | αv 整合素、Smad2/3 | 自分泌肌成纤维细胞分化 | [2,18,19] |
| Piezo1–Ca²⁺–YAP | 膜张力、刚度 | Piezo1、Ca²⁺、YAP | CCN1/2、胶原 I/III、促黏附环 | [37,99] |
| Piezo1–Wnt2/11–CCL24 | 基质刚度 | Wnt2、Wnt11、CCL24 | 炎症–硬化正反馈 | [82] |
| RhoA/ROCK–MRTF-A/SRF | 刚度、肌动蛋白聚合 | MKL1、SRF | α-SMA 转录、应力纤维 | [13] |
| TRPC3–NF-κB / TRPV4–AKT | 反复牵张、刚度 | TRPC3、TRPV4、NF-κB、AKT | 纤连蛋白、挛缩、肌成纤维分化 | [21,26] |
| PI3K–AKT / FAPα | 刚度 | FAPα、PI3K、AKT | 肌成纤维细胞活化 | [81] |
| 精氨酸–脯氨酸代谢 | 刚度 | Piezo1、代谢酶 | L-脯氨酸供给胶原合成 | [68] |
| HOX / 机械记忆 | 张力稳态改变 | HOX 家族、细胞–ECM 反馈 | 增殖与表型长期维持 | [96,98] |
5.1 FAK–ERK–MCP-1:把物理力翻译成炎症语言
这是第一条被完整证明”力 → 炎症 → 纤维化”的通路。Wong 等通过机械负荷创面与对照创面的基因表达谱比较,鉴定出 853 个机械调控基因,其中富集于 T 细胞相关通路;T 细胞缺陷小鼠的瘢痕形成减少近 9 倍,表皮与真皮增殖分别下降 2.6 倍与 3.9 倍;机械刺激与持续的 Th2 型细胞因子(IL-4、IL-13)及 MCP-1 信号高度相关,且缺陷小鼠无法募集巨噬细胞与单核细胞样成纤维前体[10]。配合 FAK–ERK–MCP-1 的发现[11],可以认为:机械负荷并不是简单地”拉伸”成纤维细胞,而是把创面锁定在一个类似慢性的、T 细胞依赖的炎症状态。Ogawa 从临床病理角度给出互补解释——只有深达网状真皮的损伤才引起病理性瘢痕,其本质是网状真皮的持续性局限性炎症,而机械牵拉、缺氧、感染、异物等内外刺激的强度、频率与持续时间共同决定瘢痕出现的速度、生长方向与症状强度[4,25]。2026 年的综述进一步把这一关系概括为”机械力–炎症–纤维化”自放大环,并指出 M2 巨噬细胞、Th2/Th17 与 JAK/STAT、IL-4/IL-13 通路是潜在的联合干预靶点[101]。药理侧亦提供旁证:厦门霉素可同时抑制局部炎症与机械应力相关效应而减轻增生性瘢痕[15]。
5.2 YAP/TAZ 与 Engrailed-1:纤维化与再生的分叉点
如果说 FAK 通路解释”炎症从何而来”,YAP/TAZ 通路则解释”为什么成年皮肤不能再生”。Dupont 等确立 YAP/TAZ 为 ECM 刚度的核内中继[6];Piersma 等在真皮成纤维细胞与 Dupuytren 病组织中证明 YAP1 驱动并维持 α-SMA 应力纤维、I 型胶原与 CCN2 表达,敲低 YAP1 降低胶原凝胶收缩[22];Gao 等在瘢痕疙瘩成纤维细胞中显示 YAP/TAZ 的 mRNA 与蛋白均升高,敲低或 verteporfin 抑制可抑制增殖迁移、诱导凋亡并下调 COL1A1[54];Mascharak 等则给出决定性证据:机械张力经经典机械转导通路驱动真皮 Engrailed-1 阴性成纤维细胞(ENF)激活 En1、转变为 Engrailed-1 阳性成纤维细胞(EPF),后者是瘢痕的主要执行者;用 verteporfin 抑制 YAP 或成纤维细胞特异性 YAP 敲除,可阻止这一转换,使创面由 ENF 完成再生,恢复毛囊、皮脂腺、胶原超微结构与力学强度[45]。这一结论与 Jiang 等 2018 年在胚胎真皮中谱系追踪发现的”两代成纤维细胞谱系更替决定从再生到瘢痕的转变”完全吻合[28,39]。
Chen 等 2021 年把该机制推向大动物与人体细胞:阻断 FAK 通路可显著加速大动物创面愈合并再生含毛囊的皮肤;在人细胞中,机械力经 ERK–YAP 把成纤维细胞推向促纤维化表型,而打断力学信号则出现以 AKT–EGR1 为特征的再生性成纤维细胞簇[35]。2025 年 Xu 等进一步用成纤维细胞膜包被的脂质纳米载体递送 En1-siRNA(FibroMC),单次局部给药即沉默各 EPF 亚群的 En1、抑制 I 型胶原与肌成纤维分化,恢复胶原架构、皮肤附件与力学性能,实现无瘢痕愈合[100]。这一系列工作把”力学 → YAP → En1 → 细胞命运”从基础发现推进到可递送的治疗概念。
5.3 TGF-β 的力学激活:不依赖转录的生长因子释放
TGF-β1 以潜伏复合物形式大量储存在 ECM 中,其活化长期被认为是蛋白酶依赖的生化过程。Wipff 等 2007 年证明(跨组织但机制普适):肌成纤维细胞收缩本身即可通过整合素牵拉,从自分泌 ECM 储备中直接释放活性 TGF-β1,该过程不依赖蛋白酶、可被整合素拮抗或提高 ECM 顺应性所阻断;在肌成纤维细胞 populated 创面中,受张力组织的 Smad2/3 活化高于松弛组织,而总 TGF-β1 与受体水平相当[2]。Sarrazy 等鉴定 αvβ5 与 αvβ3 整合素介导该激活[19];Klingberg 等补充”预应力”机制,说明 ECM 的预先组织化与预拉伸决定了 TGF-β1 被激活的阈值[18]。这构成了一个极为精巧的设计:只有当基质已被足够硬化、细胞能施加足够牵引力时,潜伏 TGF-β1 才被释放——力学状态因此成为纤维化的”许可开关”。在瘢痕疙瘩中,周期性牵张同样上调 TGF-β 与 I 型胶原,提示 TGF-β/Smad 参与张力响应[85];但 Deng 等发现疙瘩成纤维细胞的力学信号高活化并不依赖于 TGF-β 通路(p-SMAD3 反应正常且未超活化),提示疙瘩与增生性瘢痕在这一点上可能存在机制分野[36]。
5.4 Ca²⁺ 信号与代谢重编程
机械敏感通道开放后最直接的后果是 Ca²⁺ 内流。除前述 Piezo1–Ca²⁺–YAP 轴[99]与 CD74+ 成纤维细胞中 Piezo1–Ca²⁺–ERK/AKT 依赖的牵张增殖[91]外,He 等 2023 年发现了一个此前被忽视的层面:把小鼠真皮成纤维细胞从软基质转移到硬基质,精氨酸与脯氨酸代谢通路上调,关键代谢酶表达与活性升高,L-脯氨酸(胶原的主要原料)合成增加;Piezo1 是这一刚度–代谢偶联的关键调节者,在体靶向 Piezo1 可同时降低皮肤纤维化与精氨酸/脯氨酸代谢[68]。这提示力学信号不仅调控”是否合成胶原”,还调控”有没有原料合成胶原”。FAPα 则是另一条刚度响应支路:硬基质上调肌成纤维细胞 FAPα,经 PI3K–AKT 促进活化,FAP 抑制剂或 AAV 敲低可减轻小鼠皮肤纤维化[81]。
5.5 炎症–力学正反馈与免疫微环境
He 等 2024 年把炎症与力学闭环写成一个可验证的分子回路:硬基质上调 Piezo1 → Wnt2/Wnt11 → CCL24(eotaxin-2)分泌 → 炎症与纤维化加剧 → 基质更硬 → Piezo1 进一步上调;AAV 敲低 Piezo1 可打断该环[82]。单细胞研究为”哪些细胞在感受力”提供了答案:Cheng 等对同一患者同时存在的疙瘩与非侵袭性瘢痕进行 scRNA-seq,发现疙瘩中占优势的是力学响应性成纤维细胞亚群,具有增强的机械转导与迁移能力,同时内皮细胞与角质形成细胞分别出现 EndoMT 与 EMT 特征[79];Zhang 等鉴定出 CD74+ 成纤维细胞主要分布于疙瘩侵袭性边缘、紧邻血管,牵张下经 Piezo1–Ca²⁺–ERK/AKT 增殖并促血管新生[91]。Kimura、Shutova、Knecht 与 Zhou 等的综述则从更宏观层面论证机械信号与免疫应答的双向调控[41,42,61,101]。
5.6 核内转录、机械记忆与表观层面的长期化
一个反复被观察到的现象是:短暂力学负荷可造成长期表型。Aarabi 等的 1 周负荷 / 6 个月瘢痕[1]、Ogawa 关于刺激强度–频率–时长决定瘢痕病程的论述[25],都指向某种”记忆”。可能的载体包括:
• 细胞–ECM 递归反馈。Hong 等 2025 年结合三维组织模型与数学模型证明,静态牵张对三维组织中成纤维细胞的长期活化可以增强也可以减弱,取决于 ECM 黏弹性、信号动力学与细胞力学的递归反馈,呈现可预测但非单调的剂量–反应关系;这解释了二维培养中”牵张必然活化”的结论为何在三维组织中不稳定[96]。
• 张力敏感的 HOX 编码。Kang 等对正常皮肤、增生性瘢痕与疙瘩来源成纤维细胞进行 RNA-seq,结合张力有限元模拟与体外加载,发现三类细胞的 HOX 基因表达谱不同,施加张力可改变 HOX 表达,并据此提出”张力稳态(tensional homeostasis)经 HOX 基因决定愈合结局”的模型[98]。值得注意的是,该研究同时报告张力与成纤维细胞增殖呈负相关,与”牵张促增殖”的主流结论存在张力,提示张力可能存在最适区间而非线性单调效应(详见第 13 章)。
• 成纤维细胞谱系与表观状态。Moretti、Knoedler 与 Wahlsten 等的综述强调成纤维细胞异质性、谱系记忆与力学微环境的相互塑造[47,57,69]。
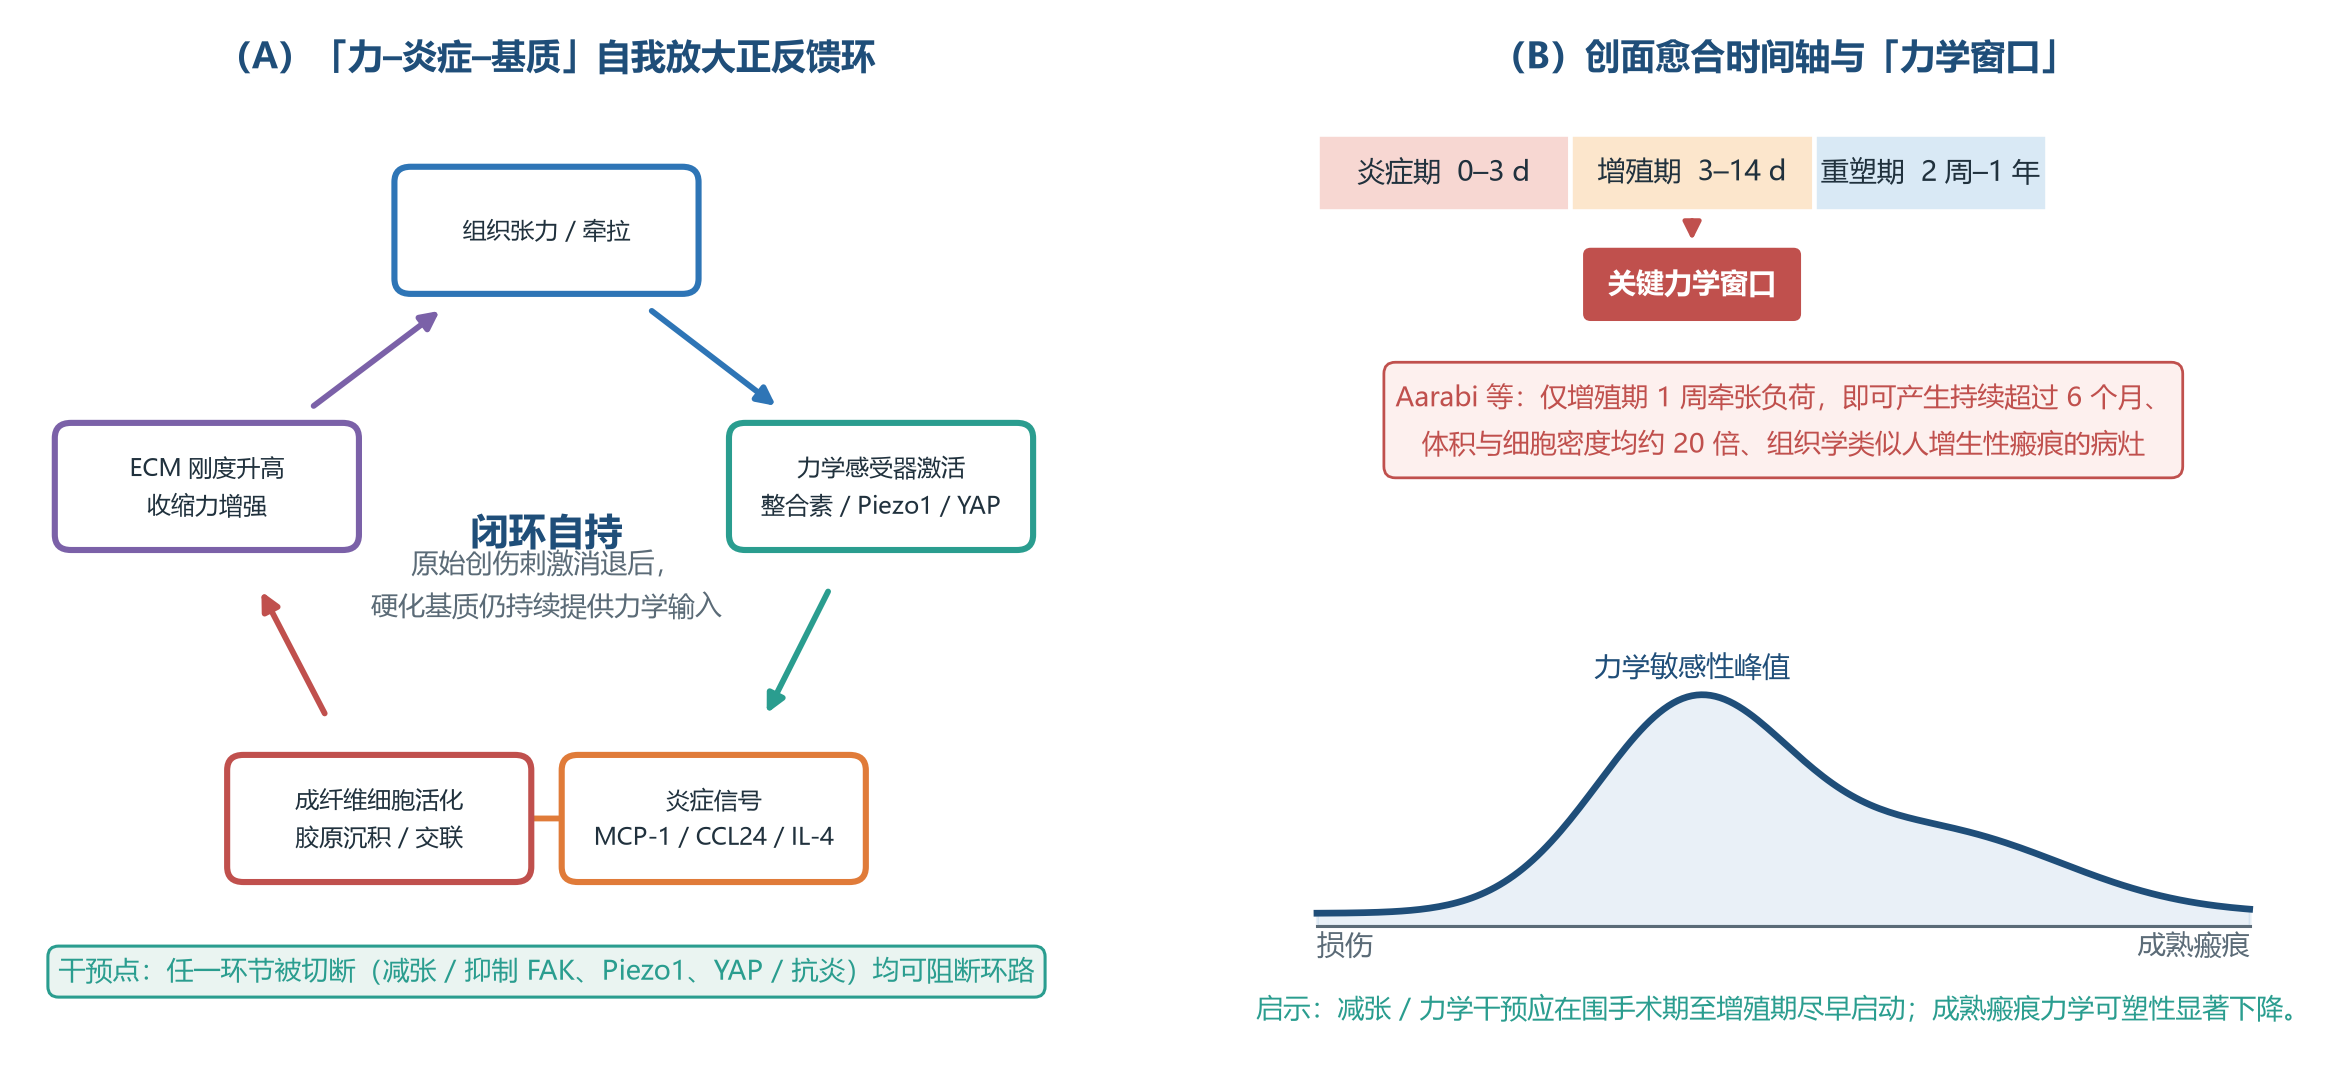
图4 「力–炎症–基质」正反馈环与创面愈合的力学窗口
6 细胞与组织层面的效应
6.1 增殖增加与凋亡减少:最早的因果终点
Aarabi 等发现机械负荷使瘢痕体积与细胞密度各增加约 20 倍,伴随细胞凋亡下降 4 倍与促存活 Akt 活化;p53 缺失(凋亡下调)小鼠瘢痕更肥厚,而促凋亡 BclII 缺失小鼠瘢痕显著减轻——这一”遗传学加减法”把凋亡抵抗确立为力学致瘢痕的必要环节[1]。后续研究显示机械刺激可快速诱导成纤维细胞增殖并加速人皮肤替代物成熟[47],YAP/TAZ 抑制则诱导疙瘩成纤维细胞凋亡[54]。
6.2 肌成纤维细胞分化与收缩
硬基质、TGF-β1 与牵张共同驱动 α-SMA 应力纤维形成,使细胞获得强收缩表型[13,26,63]。收缩既是结果也是新的力源:它激活潜伏 TGF-β1[2]、拉紧 ECM 预应力[18]、经 TRPC3–NF-κB 上调纤连蛋白并造成挛缩[21]。临床上,跨关节瘢痕的挛缩因此可被理解为”力学–收缩–更大力学”的局部失控;剖宫产等特定部位切口瘢痕切除后的复发预测研究也反复提示局部张力相关因素的作用[33]。皮肤软组织扩张过程中持续施加的机械力同样影响创面形成与瘢痕转归[72]。
6.3 ECM 沉积、排列与硬化
力学信号上调 COL1A1、COL3A1、纤连蛋白、CCN2/CTGF、LOX 与 POSTN,并改变 I/III 型胶原比;胶原束由正常真皮的篮状交织变为与张力方向一致的平行致密束[92,94,99]。Dohi 等关于 TIMP-2 抑制疙瘩成纤维细胞胶原合成的工作提示基质金属蛋白酶/抑制剂平衡同样参与沉积调控[20]。原子力显微镜与压痕仪测得的组织刚度上升,既是纤维化的读数,也是下一轮力学输入的来源[74,80]。
6.4 血管、缺氧与神经源性炎症
Eura 等对疙瘩组织与邻近血管的解剖与血流动力学分析提示微循环异常[50];CD74+ 与 PIEZO2+ 细胞定位于血管周围活跃区并伴炎症浸润[91,92],把力学感受、血管新生与侵袭性生长联系起来。Akaishi 等早年提出的神经源性炎症假说认为,机械敏感伤害感受器与 P 物质等神经肽可能参与张力诱发的局部炎症[3],虽仍缺乏直接的人体因果证据,但为”痛痒—搔抓—张力—炎症”的临床循环提供了可检验的框架。
6.5 组织结局与临床表现
上述改变最终表现为瘢痕隆起、发红、质硬、瘙痒与挛缩(增生性瘢痕局限于原伤口边界、可部分自行消退),或超出原边界持续性侵袭生长、极少自行消退(瘢痕疙瘩)[38,71,94]。Ogawa 强调机械刺激的强度、频率与持续时间决定瘢痕出现速度、生长方向与症状强度——前胸蝴蝶形、肩胛蟹足状等特征性形态,实质上是局部张力矢量场在组织生长上的”投影”[14,25,52]。
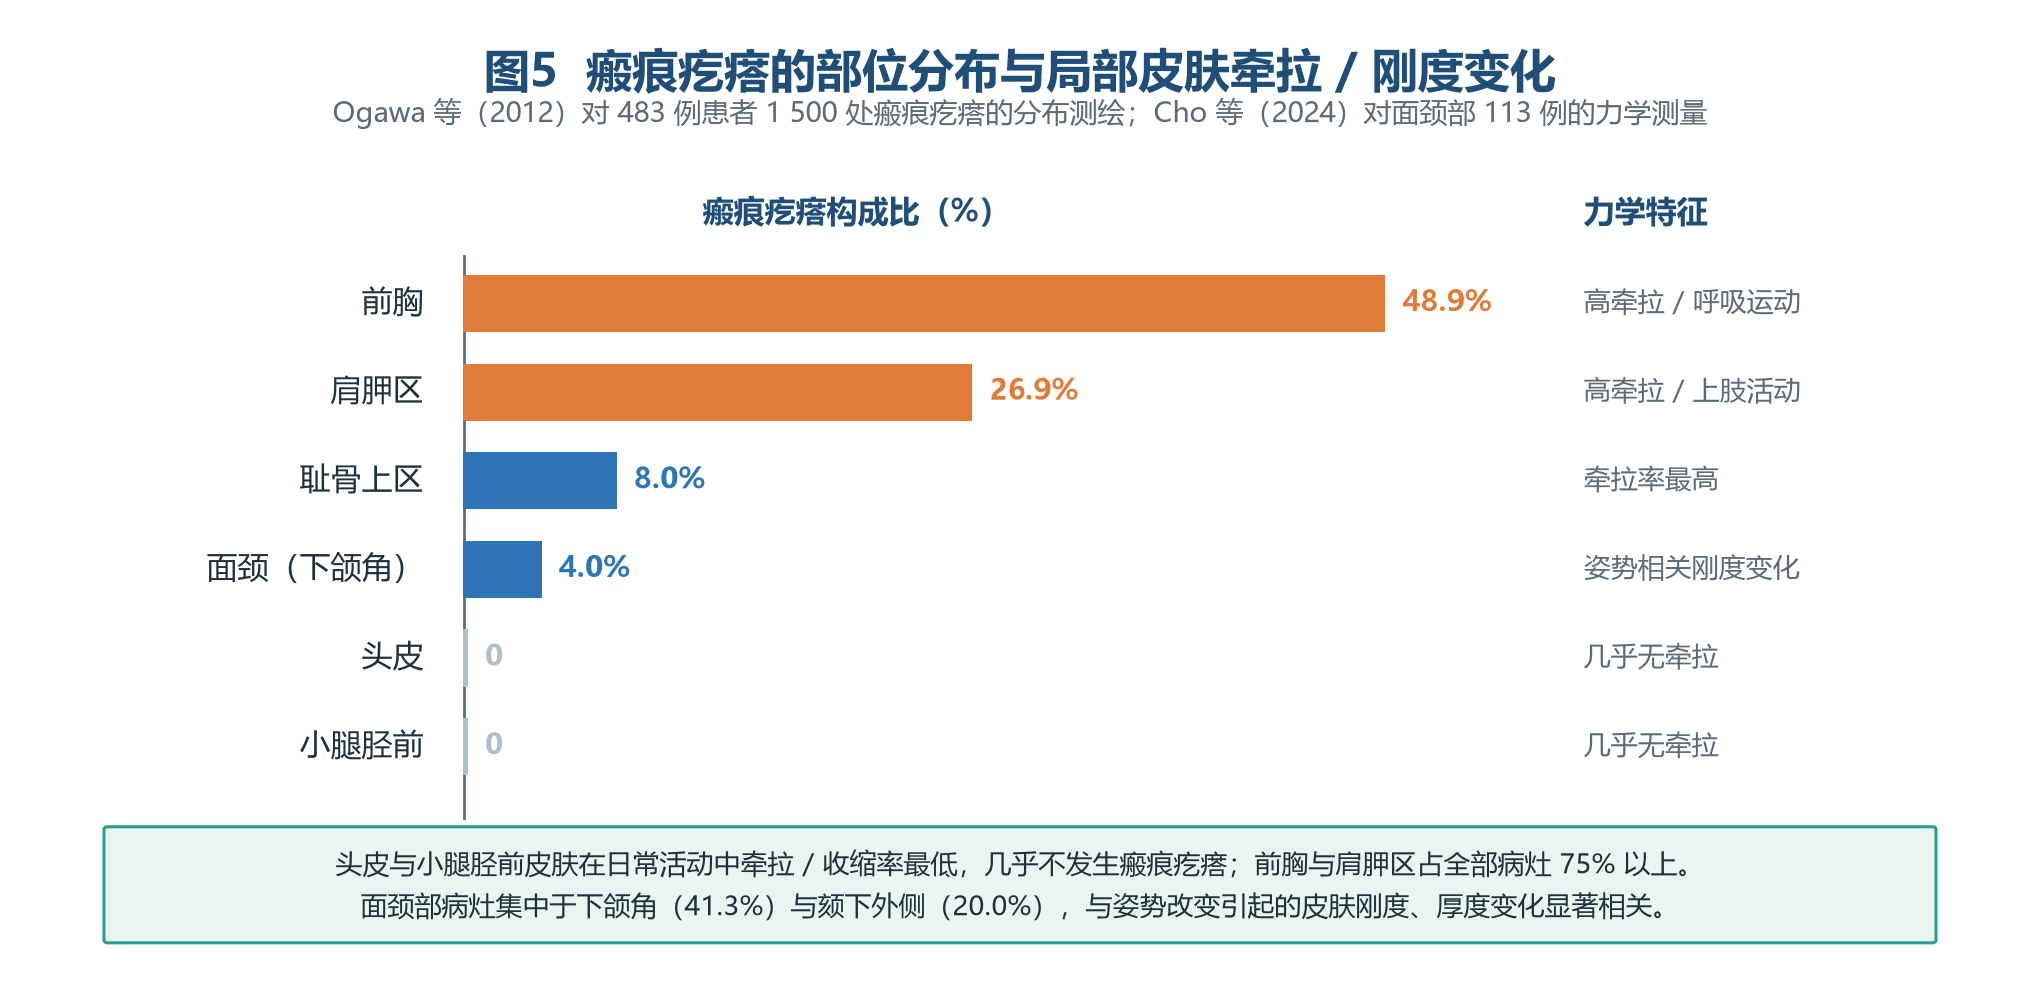
图5 瘢痕疙瘩的部位分布与局部皮肤牵拉 / 刚度变化
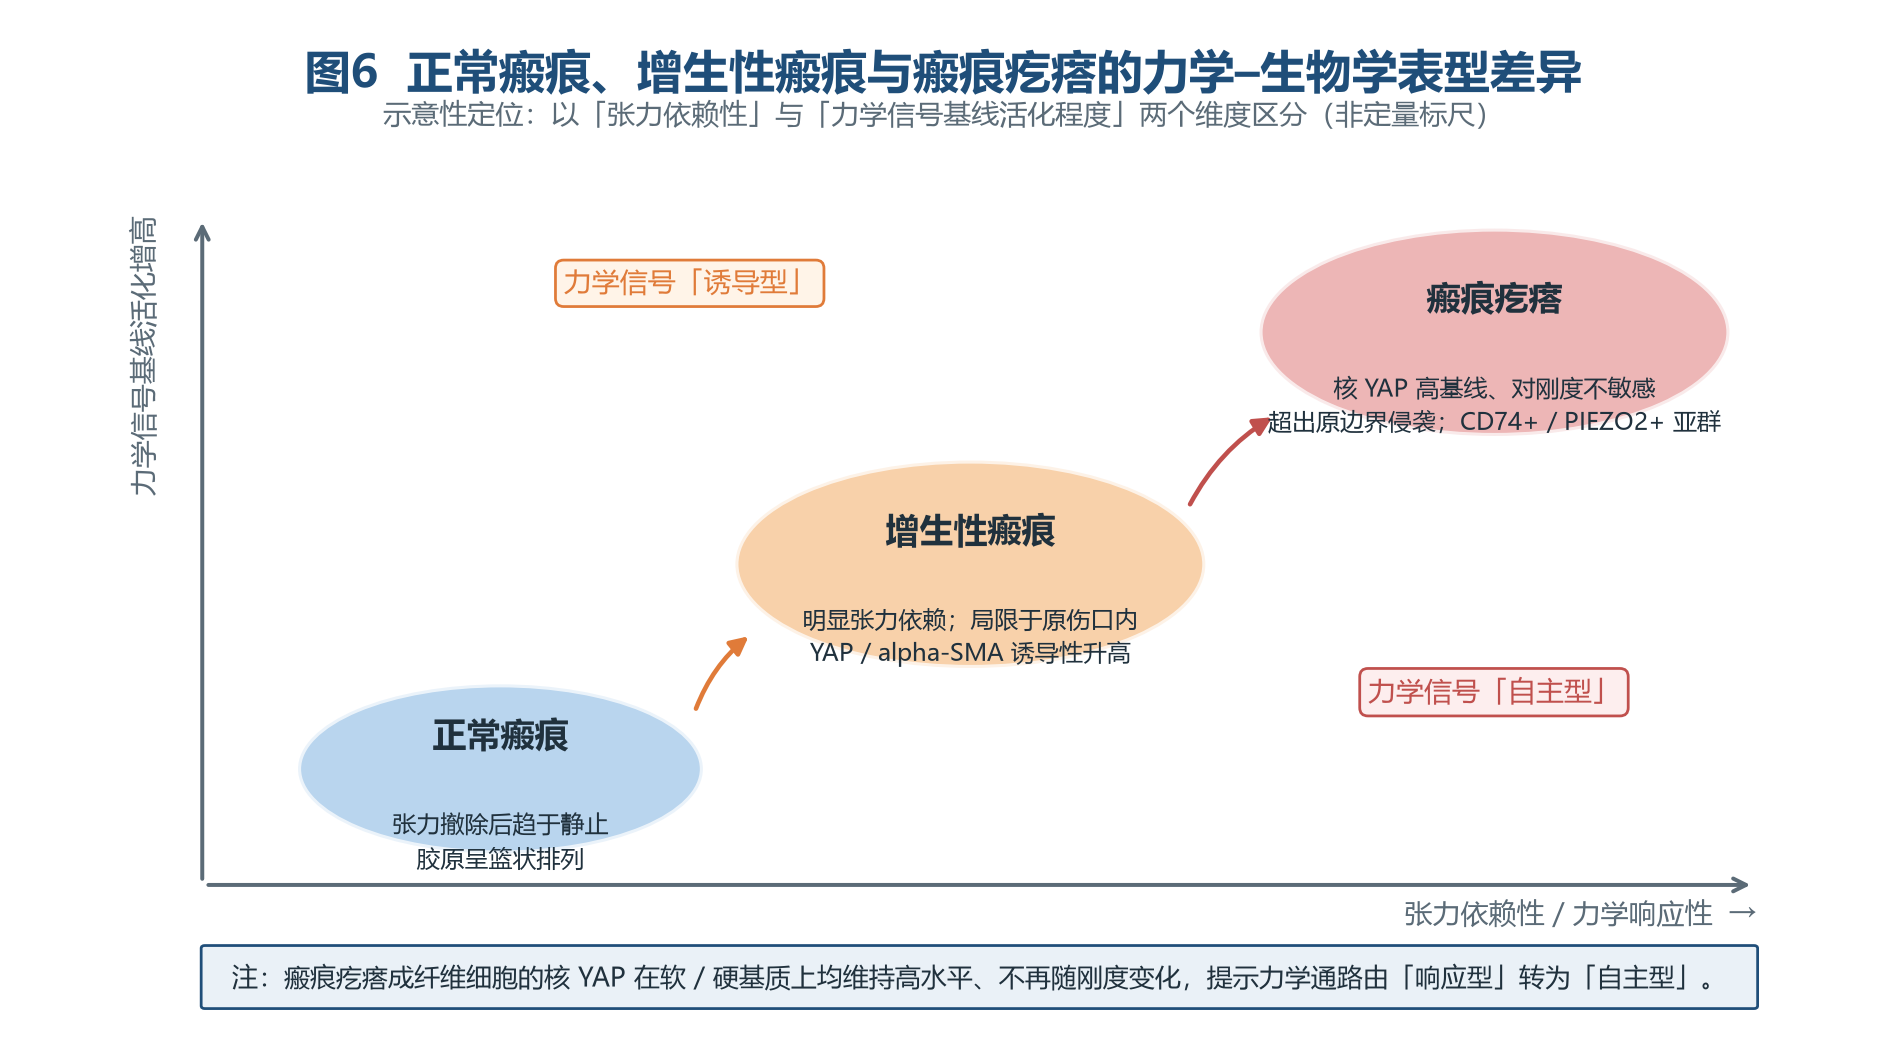
图6 正常瘢痕、增生性瘢痕与瘢痕疙瘩的力学–生物学表型差异
7 力学窗口与时序:为什么”早期减张”如此关键
创面愈合分为炎症期(0—3 天)、增殖期(3—14 天)与重塑期(2 周—1 年)。机械敏感性并非恒定:Aarabi 等把 1 周负荷精准施加于增殖期即获得长期瘢痕[1];Wong 等发现机械负荷延长急性炎症、维持 Th2/MCP-1 信号[10];Hong 等则提示三维组织中 ECM 反馈使牵张效应随时间呈现非单调演化[96]。综合来看,增殖期是力学干预收益最高的窗口:此时成纤维细胞大量迁入、ECM 尚未交联定型、力学信号可塑性最高;一旦进入重塑期,胶原交联与刚度升高形成自持闭环,再降低外部张力也难以逆转已建立的力学记忆。Hosseini 等据此明确提出”力学调控必须在愈合过程中进行,以避免瘢痕成熟”,并主张把压力治疗与张力卸载联合[55];Yang 等的综述同样强调早期干预[83,87]。这一时间逻辑也解释了为何术后即刻开始使用减张胶带/减张器的临床效果优于瘢痕形成后再处理[24,46]。
8 三类表型的力学差异
把正常瘢痕、增生性瘢痕与瘢痕疙瘩放在”张力依赖性”与”力学信号基线活化”两个维度上,可以得到一个有解释力的框架(图6):
• 正常瘢痕:力学响应为”诱导型且可关闭”。张力撤除、炎症消退后,成纤维细胞凋亡、肌成纤维细胞消失,胶原逐步恢复接近篮状排列。
• 增生性瘢痕:力学响应为”诱导型但过强”。对张力与刚度高度敏感,α-SMA 与 YAP 呈诱导性升高,但病灶仍局限于原伤口内,且常随张力解除而部分消退[1,71]。
• 瘢痕疙瘩:力学响应趋于”自主型/构成型”。Deng 等用不同刚度纤连蛋白包被聚丙烯酰胺水凝胶比较正常与疙瘩成纤维细胞,发现正常细胞核 YAP 随刚度升高与 TGF-β 刺激而增加,而疙瘩细胞本身更硬、α-SMA 更高、核 YAP 基线已高且对刚度与 TGF-β 均不再响应;blebbistatin 抑制肌球蛋白可下调 α-SMA 与细胞刚度,提示这种高活化与细胞收缩性偶联[36]。Kim 等的可拉伸 PDMS 平台则显示疙瘩成纤维细胞对周期性牵张具有更高易感性、TGF-β/Smad 与胶原进一步升高、细胞骨架成分增加,可解释其临床持续性[85]。单细胞层面鉴定的力学响应性成纤维细胞亚群、CD74+ 促血管亚群与 PIEZO2+ 亚群,进一步说明疙瘩内部存在空间上分工的力学响应生态位[79,91,92]。
需要强调,这一框架是解释性而非分类诊断标准;Ogawa 等提出的”纤维增殖性皮肤疾病连续谱”观点认为两者可能是同一疾病谱的不同表现[31,38]。
9 实验模型与研究方法
表3 主要研究模型及其适用性与局限
| 模型 | 代表文献 | 关键优势 | 主要局限 |
|---|---|---|---|
| 小鼠背部牵张(改良腭扩张器) | [1,86] | 首次证明力学充分性;组织学类人;可重复、可药物干预 | 小鼠皮肤松弛、有 panniculus carnosus,与人差异大;装置易脱落 |
| 缝线锚定定向张力小鼠模型 | [88] | 无需特殊装置,张力持续贯穿愈合全程,配对自身对照 | 张力大小不可精确量化;以抑制收缩为主要机制 |
| 小鼠腹壁肌层瘢痕模型 | [40] | 模拟腹壁张力环境,可观察肌层与真皮交互 | 模型较新,机制数据有限 |
| 兔耳增生性瘢痕模型 | [65] | 可量化瘢痕隆起指数(SEI)与抗张强度 | 软骨基底、无皮下脂肪,愈合方式与人不同 |
| 雌性 Duroc 猪 / 机械负荷猪模型 | [27] | 皮肤结构与厚度接近人 | 成本高、体型大、样本量受限 |
| 人瘢痕组织异种移植(裸鼠) | [99] | 保留人源细胞与 ECM;可做原子力显微镜力学读数 | 缺乏完整免疫与系统性张力 |
| 周期性牵张细胞培养(Flexcell / PDMS) | [63,85] | 参数(幅度/频率/时长)可控,适合通路拆解 | 二维培养缺少 ECM 三维反馈;结论外推需谨慎 |
| 可调刚度水凝胶(PAA / GelMA) | [36,90] | 解耦”刚度”与”生化成分” | 刚度范围、黏弹性与在体并不等价 |
| 成纤维细胞 populated 胶原晶格 + 有限元 | [65,98] | 可量化细胞收缩力与应力场分布 | 模型参数依赖假设,需实验标定 |
| 单细胞/空间转录组 + AFM / 压痕仪 | [79,80] | 解析力学响应细胞亚群并关联在体刚度 | 多为关联分析,需功能验证 |
| 人体在体力学测量(VECTRA、超声、压痕仪) | [14,80] | 直接获得临床相关力学参数 | 缺乏统一标准与正常值数据库 |
一个突出的共性问题是力学剂量学缺失:多数论文报告”施加牵张”却不报告应力/应变数值、加载波形、组织刚度实测值,导致不同研究之间难以比较,也使”多大张力会致瘢痕”这一临床最关心的问题至今没有剂量–效应曲线[55,66,96]。
10 反向验证:以力学为靶点的防治策略
一条因果链是否可信,最有力的检验是”去掉原因,结果是否消失”。近二十年在四个层级上完成了这种反向验证(图7、表4、表5)。
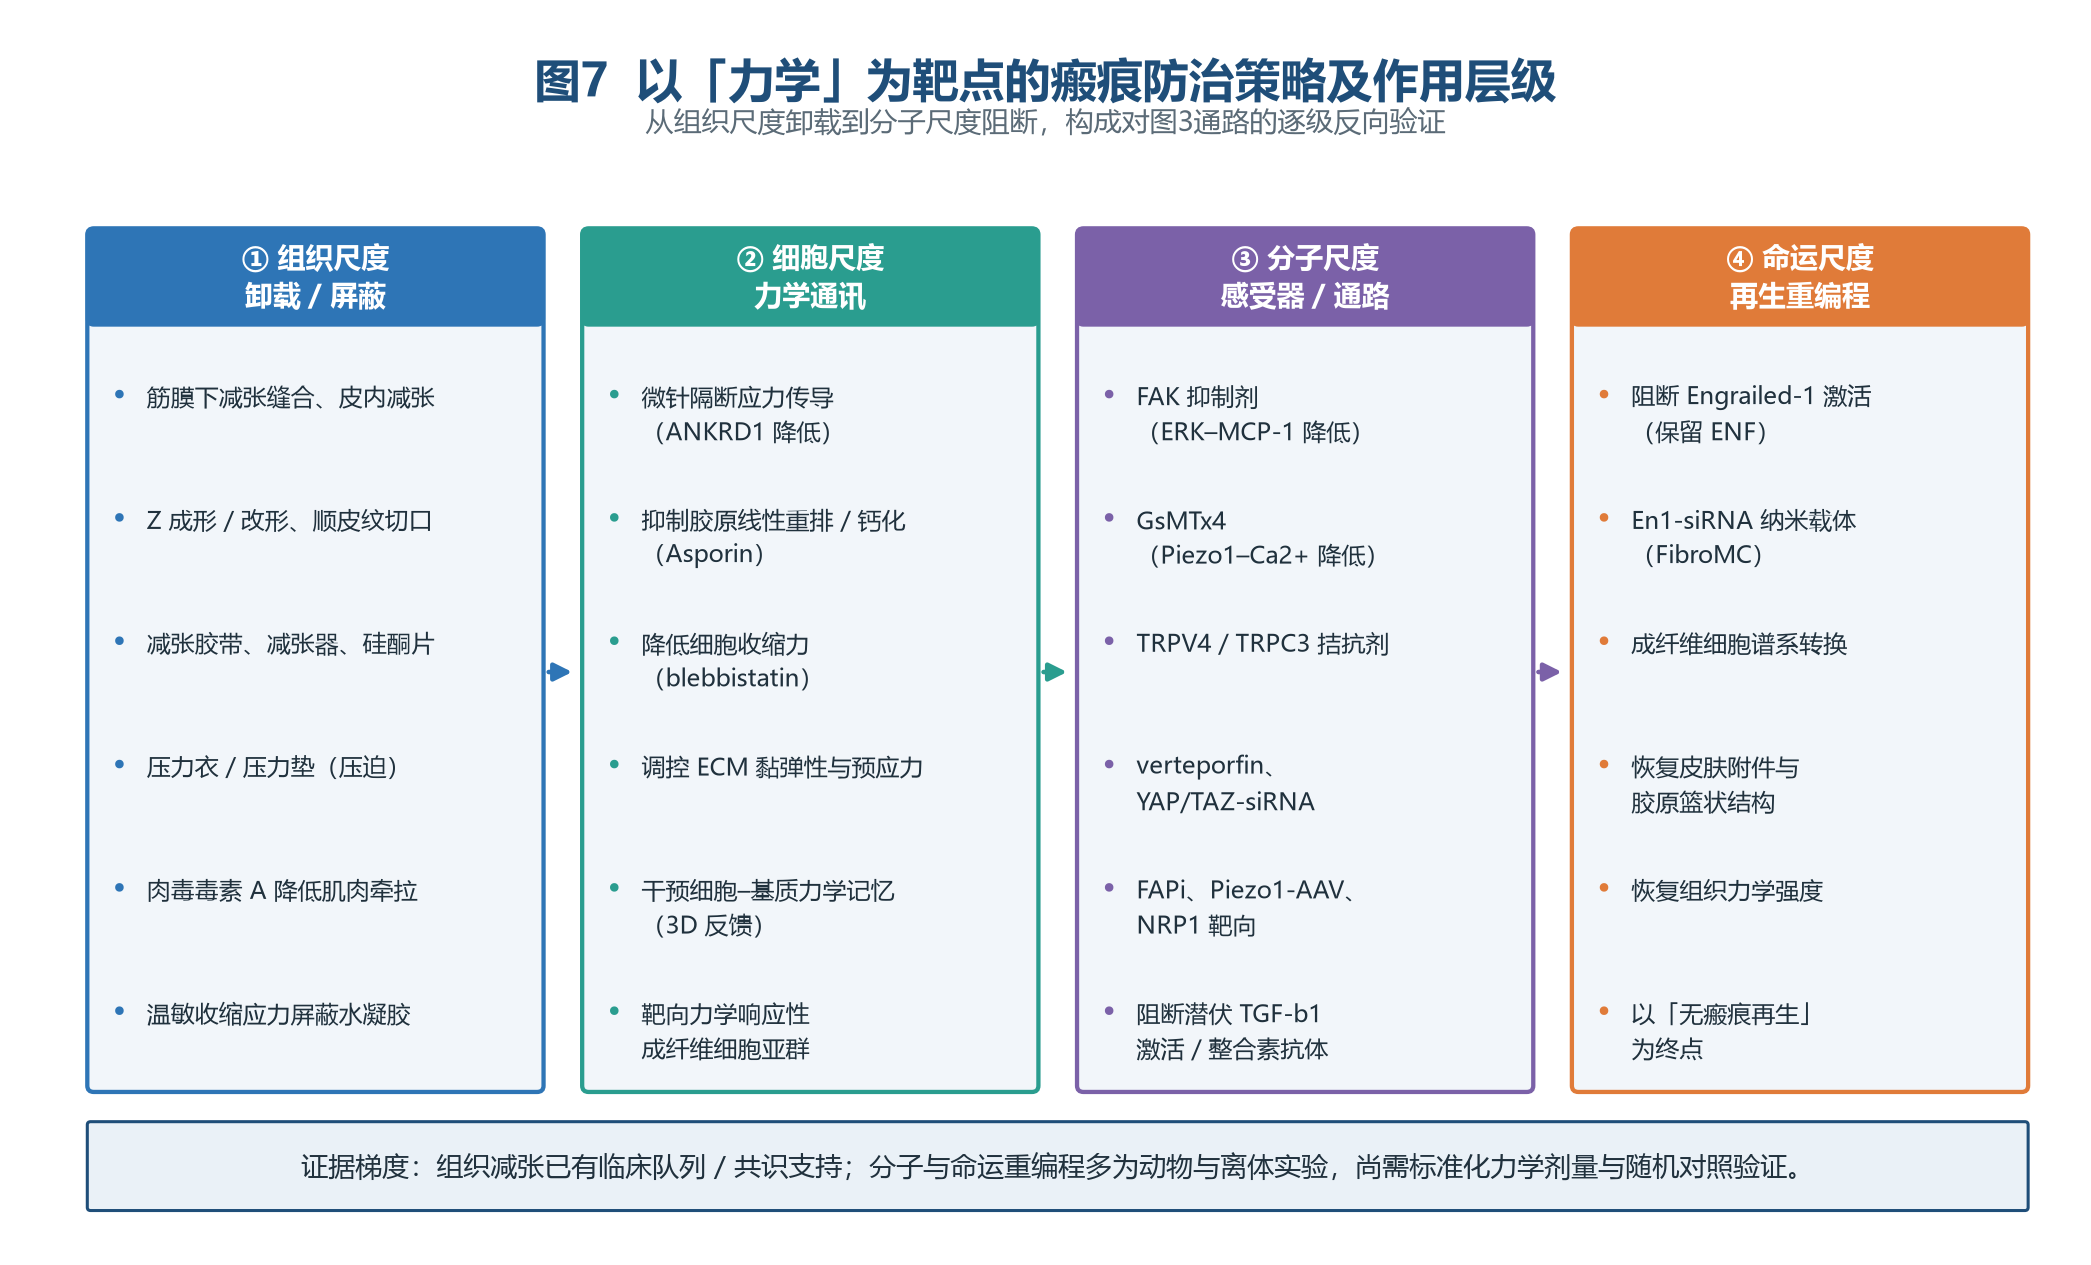
图7 以「力学」为靶点的瘢痕防治策略及作用层级
10.1 组织尺度:减张与应力屏蔽
Ogawa 等从基础研究直接推导出临床原则:筋膜/皮下减张缝合把张力从真皮转移到深层组织,配合皮瓣或 Z 成形改变张力矢量,可预防和治疗异常瘢痕[5,7];后续算法把减张列为疙瘩与增生性瘢痕全程管理的基础措施[24,58]。Arima 等报告 141 例前胸壁疙瘩采用 Z 成形联合术后放疗的队列结果,其原理即在于降低前胸高张力[29,30]。减张胶带的系统综述、甲状腺切除术切口早期干预综述以及减张缝合技术进展,共同支持”从缝合开始即管理张力”的理念[46,51,83,95]。有意思的是,筋膜成纤维细胞中 p120 的治疗性沉默可改善组织修复[73],从分子层面为”张力主要承载于筋膜层、减张应作用于深层”这一外科经验提供了旁证。Wong 等 2013 年研发的机械调控装置通过在切口两侧重新分布应力,显著减少切口瘢痕,是”力学卸载”概念最早的器械化尝试[17]。
表4 临床常用减张 / 物理干预及其力学原理与证据概况
| 干预 | 力学原理 | 适用时机 | 主要证据 | 证据概况 |
|---|---|---|---|---|
| 筋膜 / 皮下减张缝合 | 把张力由真皮转移至深层筋膜,降低创缘应力 | 术中即刻 | [5,7,95] | 临床队列与专家共识;缺乏统一缝合张力标准 |
| 顺皮纹切口、Z 成形 / 皮瓣 | 改变张力矢量方向、分散应力集中 | 术前设计 / 术中 | [14,29,30] | 解剖分布研究 + 单中心队列(141 例) |
| 减张胶带 / 减张器 | 持续横向卸载创缘张力 | 拆线后至增殖期,尽早开始 | [24,46,83] | 系统综述支持,但异质性大、盲法困难 |
| 硅酮片 / 硅酮凝胶 | 封闭水合 + 轻度机械固定 | 上皮化后数周起 | [24,58] | 指南一线推荐;力学贡献与封包效应难以分离 |
| 压力衣 / 压力垫 | 持续压缩,降低组织灌注与胶原合成 | 烧伤创面愈合后 2 周内开始 | [24,70,93] | 临床广泛使用;最佳压力值与依从性仍存争议 |
| A 型肉毒毒素 | 化学去神经,降低肌肉动态牵拉 | 术中 / 术后早期 | [34,60,97] | Meta 分析提示有效;剂量–效应与时机未统一 |
| 机械调控装置 / 应力屏蔽敷料 | 主动重分布或屏蔽创面应力 | 围手术期至增殖期 | [17,65,78] | 动物与早期器械研究;人体 RCT 尚缺 |
| 术后放疗(联合减张) | 抑制成纤维细胞增殖,非力学机制 | 切除后 24—72 h | [29,30] | 高复发部位的标准辅助手段;需权衡适应证 |
材料学提供了更精细的手段。Zhang 等用丝素微针阵列物理隔断创面应力传导,在兔耳模型中降低瘢痕隆起指数并恢复抗张强度,机制上降低 ANKRD1、抑制整合素–FAK 与 TGF-β1/α-SMA/胶原 I/纤连蛋白[65];Chen 等构建体温响应收缩的水凝胶”应力屏蔽平台”,重塑创面应力微环境,下调整合素–FAK/p-FAK、TGF-β1 与胶原 I,显著缩小大鼠全层创面瘢痕面积[78];Fernandes、Li 等分别综述了力学调控生物材料与力学调控促进无瘢痕再生并恢复皮肤附件的策略[53,87];微针与纳米凝胶还被用于递送 verteporfin 等分子干预[67,75]。
10.2 压迫与化学去神经:方向相反但同样有效?
压力衣/压力垫是烧伤后增生性瘢痕的一线保守措施,其施加的是压缩而非牵张[24,93]。Li 等 2023 年提出一个有意思的分子解释:压力刺激上调 NRP1,NRP1 与 YAP 结合并将其滞留于胞质;机械压迫可破坏该结合,影响 LATS1/磷酸化 YAP 与 YAP 核转位,从而调节内皮细胞增殖,并据此提出”靶向 NRP1 可优化压力治疗所需压力”[70]。需注意该研究摘要中关于压迫方向性的表述存在内部不一致,其结论尚待独立验证,本文仅将其作为”压迫与牵张可能通过不同分子入口作用于同一 YAP 节点”的假说列出,不作定论。
A 型肉毒毒素通过暂时麻痹切口下方肌肉、降低动态牵拉而改善瘢痕外观。系统评价与剂量研究显示面部术后应用可改善瘢痕宽度与外观,但剂量–效应关系与最佳时机尚未统一[34,60,83,97]。这类”化学减张”与物理减张共同构成对力学病因学的临床级反向验证。
10.3 分子尺度:把通路逐个”关掉”
表5 分子/细胞靶向干预及证据阶段
| 靶点 | 干预方式 | 模型与主要结果 | 证据阶段 | 文献 |
|---|---|---|---|---|
| FAK | 小分子抑制剂;成纤维细胞特异性敲除 | 小鼠瘢痕减轻、MCP-1 与炎症细胞募集下降;大动物创面再生毛囊 | 在体动物 + 人细胞 | [11,35] |
| Piezo1 | GsMTx4;AAV 敲低 | 大鼠牵张瘢痕被阻断;小鼠皮肤纤维化与硬度下降;人疙瘩异种移植体积缩小 | 在体动物 + 人源异种移植 | [37,82,99] |
| YAP/TAZ | verteporfin;siRNA;成纤维细胞 YAP 敲除 | 抑制疙瘩成纤维细胞增殖并诱导凋亡;小鼠实现 ENF 介导的无瘢痕再生 | 在体动物 + 人细胞 | [45,54] |
| Engrailed-1 | En1-siRNA 纳米载体(FibroMC) | 单次给药沉默 EPF 的 En1,恢复附件、胶原架构与力学强度 | 在体动物 | [100] |
| TRPC3 / TRPV4 | 药理阻断、基因消融 | 抑制纤连蛋白与挛缩;阻断刚度/TGF-β1 诱导的肌成纤维分化 | 离体 + 小鼠 | [21,26] |
| Nesprin-2 / Emerin | siRNA | 阻断牵张或刚度诱导的肌成纤维分化 | 离体 | [63,90] |
| FAPα | FAPi;AAV 敲低 | 抑制硬基质诱导的肌成纤维活化,减轻小鼠皮肤纤维化 | 离体 + 在体动物 | [81] |
| NRP1 | 基因敲低 | 调节压力下的 LATS1/YAP 与内皮增殖 | 离体 + 动物,待验证 | [70] |
| 潜伏 TGF-β1 / 整合素 | 整合素拮抗、提高 ECM 顺应性 | 阻断收缩依赖的 TGF-β1 释放 | 离体机制 | [2,19] |
| 力学记忆 / 细胞–ECM 反馈 | 调控 ECM 黏弹性 | 三维组织中牵张效应可升可降,提示可设计”去记忆”策略 | 体外 + 数学模型 | [96] |
10.4 从”减张”到”重编程”
最激进的反向验证不是让瘢痕变小,而是让瘢痕不发生。Mascharak 与 Xu 等的 En1 相关工作证明,只要在力学信号与细胞命运之间切一刀,成年哺乳动物皮肤仍能走胚胎期的再生路径[45,100]。这与 Jiang 等关于成纤维细胞谱系更替的发育生物学发现[28,39]、以及 Zhou、Griffin 等关于平衡修复与无瘢痕再生的综述相互呼应[35,76]。从转化角度看,这一层级的证据目前主要来自小鼠,能否在人体皮肤的厚度、附件密度与免疫环境下复现,仍是开放问题。
11 机制整合:一个分层、闭环、带时间窗的模型
把上述证据压缩成一个可检验的工作模型(图3、图4):
1. 输入层:静态/动态张力、缝合张力、压迫、剪切与 ECM 刚度共同作用于创缘,形成应力集中。
2. 感受层:整合素–黏着斑、Piezo1/2 与 TRP 通道、RhoA/ROCK–F-actin、LINC/核骨架、以及胶原网络介导的细胞间机械通讯,并行地把变形转换为 FAK–ERK、Ca²⁺、RhoA、核形变等近端信号。
3. 整合层:FAK–ERK–MCP-1 与 Piezo1–Wnt2/11–CCL24 把力学与炎症接通;YAP/TAZ 与 MRTF-A/SRF 把力学写入核内转录;整合素牵拉释放潜伏 TGF-β1 形成自分泌放大;PI3K–AKT 同时抑制凋亡。
4. 效应层:增殖增加、凋亡减少、肌成纤维分化、迁移收缩、代谢重编程(精氨酸–脯氨酸)、免疫细胞与血管内皮募集。
5. 输出层:胶原沉积/交联/平行排列 → ECM 刚度升高 → 反馈回输入层,形成不依赖原始损伤的自持闭环。
6. 时间调制:上述环路在增殖期最具可塑性;HOX 编码与细胞–ECM 递归反馈提供”机械记忆”,使短暂负荷产生长期结局。
7. 反向验证:任一层级被切断(减张、应力屏蔽、FAK/Piezo1/YAP 抑制、En1 沉默),均使瘢痕减轻或转向再生。
这一模型的解释力在于它同时容纳了临床上看似矛盾的现象:为什么压力(压缩)与减张(去牵张)都能抗瘢痕(作用于不同感受器与同一 YAP 节点)、为什么瘢痕疙瘩在张力最高处复发(力学响应性细胞亚群定位于侵袭边缘)、为什么单纯抗炎或抗 TGF-β 疗效有限(闭环有多条并行入口)、以及为什么早期干预远优于晚期处理(力学记忆与 ECM 交联)。
12 争议、局限与未解问题
(1)相关性与因果性的边界。 人体部位分布研究本质上是生态学关联[14,80],即使控制年龄、性别与损伤类型,也无法排除局部皮脂腺、毛囊密度、微循环、皮肤厚度等共变量。因果证据主要来自啮齿类,而小鼠皮肤有肉膜层、愈合以收缩为主、张力场与人不同[86,88]。
(2)力学参数未标准化。 绝大多数研究不报告应力/应变、刚度实测值、加载频率与波形,”mechanical stretch”在不同实验室可能相差一个数量级;二维培养结论常在三维组织中失效[96]。这直接导致不同研究间结果难以比较,也阻断了临床剂量推荐的形成。
(3)方向性矛盾:牵张、压迫与”最适张力”。 主流模型认为牵张促纤维化、去牵张抗纤维化;但压力治疗施加压缩同样有效[93],NRP1 研究对压迫下 YAP 的调控方向存在内部不一致[70]。更值得注意的是 Kang 等报告张力与成纤维细胞增殖呈负相关,并据此提出”张力稳态”模型[98],与 Aarabi、Wahlsten 等的”牵张促增殖”结论[1,47]并不一致。合理解释是存在非线性剂量–效应与最适张力区间:生理性张力维持稳态,过低(如应力屏蔽)与过高(如跨关节高张力)都可能偏离稳态;Hong 等在三维组织中确实观察到牵张效应的非单调性[96]。但这一假说目前尚无直接的人体剂量–效应数据支持。
(4)疾病异质性。 增生性瘢痕与瘢痕疙瘩在力学依赖性上可能不同:前者的 YAP 呈诱导型,后者核 YAP 高基线且对刚度不敏感[36];前者 α-SMA+ 肌成纤维细胞丰富,后者几乎不见成熟肌成纤维细胞,却保持高增殖与 ECM 分泌[43]。把两者合并讨论(很多模型研究正是如此)可能掩盖机制差异。Ogawa 等提出的连续谱假说[38]与”不同疾病实体”观点仍并存[38,94]。
(5)遗传与全身因素的交互。 易感体质、肤色、年龄、内分泌、系统性疾病、吸烟等均影响瘢痕结局[49,94];力学模型很少纳入这些交互,也少有研究在遗传分层的人群中验证张力效应。
(6)干预证据的转化落差。 减张缝合、胶带、压力衣、肉毒毒素虽有临床队列与共识支持,但高质量随机对照试验少、终点指标不统一(温哥华瘢痕量表、POSAS、宽度、硬度等混用)、力学剂量几乎从不记录[24,46,58,97]。FAK/Piezo1/YAP/En1 等分子干预绝大多数停留在小动物与离体阶段;verteporfin 存在 YAP 非依赖效应,siRNA 递送的长期安全性与脱靶尚不清楚[45,100]。
(7)发表偏倚与检索局限。 本综述仅纳入中英文数据库可检索的公开文献,未纳入灰色文献、会议摘要与部分中文核心期刊全文;对”阴性结果”(如减张无效、敲低无效)的检索灵敏度有限,可能高估力学机制的普适性。
13 未来方向
1. 建立瘢痕力学的剂量学标准。 统一报告应力/应变(kPa 或 %)、加载频率与波形、持续时间、组织刚度实测方法(AFM、压痕仪、超声弹性成像、VECTRA),建立不同部位、年龄、体位的正常值数据库,并绘制人体”张力–瘢痕风险”剂量–效应曲线[55,80]。
2. 在体、动态、闭环的力学测量。 可穿戴张力/应变传感器与智能敷料实时监测创缘应力,并与按需释放的减张或药物模块联动,实现”测–控一体”的闭环力学治疗[53,87]。
3. 单细胞与空间多组学结合功能力学。 在已鉴定的力学响应性成纤维细胞、CD74+、PIEZO2+ 亚群基础上[79,91,92],结合空间转录组、谱系追踪与单细胞力谱,回答”哪一群细胞在什么位置、以何种阈值感受力”。
4. 机械–免疫–代谢三方耦合。 系统解析 FAK–MCP-1、Piezo1–CCL24、Th2/IL-4/IL-13、M2 巨噬细胞与精氨酸/脯氨酸代谢之间的因果次序,寻找可同时打断炎症环与力学环的组合靶点[10,68,101]。
5. 从”减瘢痕”走向”促再生”。 以 En1/YAP 命运开关为核心,评估在人体皮肤厚度与免疫环境下实现附件再生与力学强度恢复的可行性[28,45,100]。
6. 以力学为分层变量的临床试验。 未来的 RCT 应按术前张力/刚度分层、把力学剂量作为干预记录、以客观力学读数(硬度、弹性、宽度、挛缩角度)为主要终点,并统一随访至 12 个月以上,才能真正把”减张”从经验上升为可处方、可质控的治疗[24,58]。
7. 跨尺度计算模型。 把有限元应力场、细胞–ECM 递归反馈模型与信号网络动力学耦合,预测个体化的最佳切口方向、减张强度与干预时机[65,96,98]。
14 结语
二十年前,”张力大容易长疤”还只是整形外科的经验之谈;今天,它已经是一条由人体分布测绘、在体力学模型、遗传学加减法、单细胞图谱与分子干预共同支撑的因果链。机械力的特殊之处在于它同时是病因、信号、结果和靶点:它启动瘢痕,被细胞翻译成 YAP、FAK、Ca²⁺ 与 TGF-β 的语言,又被自己诱导的胶原沉积进一步放大。这一闭环解释了病理性瘢痕的顽固性,也解释了为什么单纯抗炎或抗增殖常常力有不逮。
对临床而言,最直接的启示不是等待某个”抗瘢痕特效药”,而是把张力管理前移到切口设计与缝合那一刻,并贯穿整个增殖期;对研究而言,最紧迫的任务是把”力”从定性描述变成可测量、可报告、可处方的物理量。当力学剂量学与分子靶向真正结合时,”无瘢痕愈合”才可能从《Science》封面走向换药室。
附录A 缩略语表
| 缩略语 | 中文 / 英文全称 |
|---|---|
| HTS | 增生性瘢痕 / hypertrophic scar |
| ECM | 细胞外基质 / extracellular matrix |
| FAK | 黏着斑激酶 / focal adhesion kinase |
| ILK | 整合素连接激酶 / integrin-linked kinase |
| YAP/TAZ | Yes 相关蛋白 / 含 PDZ 结合基序转录共激活因子 |
| TEAD | TEA 结构域转录因子家族 |
| ENF / EPF | Engrailed-1 谱系阴性 / 阳性成纤维细胞 |
| En1 | Engrailed-1 |
| LINC | 连接核骨架与细胞骨架的复合体 |
| MRTF-A / MKL1 | 心肌素相关转录因子 A / 巨核细胞白血病因子 1 |
| SRF | 血清反应因子 |
| α-SMA | α 平滑肌肌动蛋白 |
| CCL2 / MCP-1 | CC 趋化因子配体 2 / 单核细胞趋化蛋白 1 |
| CCL24 | CC 趋化因子配体 24(eotaxin-2) |
| CCN1/2 | 富半胱氨酸血管生成诱导因子 1/2(CYR61 / CTGF) |
| LOX | 赖氨酰氧化酶 |
| TRPV4 / TRPC3 | 瞬时受体电位香草酸亚型 4 / 经典亚型 3 |
| FAPα | 成纤维细胞活化蛋白 α |
| NRP1 | 神经纤毛蛋白 1 |
| AFM | 原子力显微镜 |
| SEI | 瘢痕隆起指数 / scar elevation index |
| POSAS | 患者与观察者瘢痕评价量表 |
| scRNA-seq | 单细胞 RNA 测序 |
| EMT / EndoMT | 上皮–间质转化 / 内皮–间质转化 |
附录B 图表清单
• 图1 本综述纳入核心文献的年度分布与主题构成
• 图2 皮肤瘢痕机械力的来源与伤口边缘应力集中
• 图3 机械力驱动皮肤瘢痕增生的多层级机制通路
• 图4 「力–炎症–基质」正反馈环与创面愈合的力学窗口
• 图5 瘢痕疙瘩的部位分布与局部皮肤牵拉 / 刚度变化
• 图6 正常瘢痕、增生性瘢痕与瘢痕疙瘩的力学–生物学表型差异
• 图7 以「力学」为靶点的瘢痕防治策略及作用层级
• 表1 皮肤瘢痕相关力学感受器分类
• 表2 关键机械转导通路及其在瘢痕中的效应
• 表3 主要研究模型及其适用性与局限
• 表4 临床常用减张 / 物理干预及其力学原理与证据概况
• 表5 分子/细胞靶向干预及证据阶段
附录C 检索与引文核对说明
文献检索经 BioMCP 完成(PubMed、Europe PMC、PubTator3 联合,2006-01-01—2026-11-13),核心条目的书目信息经 NCBI E-utilities efetch 接口逐条抓取与解析,包含作者、刊名、年份、卷期、页码与 DOI。文中数值与结论均依据所引文献的题录与摘要;对仅在摘要层面可获取的信息不作超出原文的推断。参考文献按发表年份升序排列,同年内按第一作者姓氏排列。
参考文献
[1] Aarabi S, Bhatt KA, Shi Y, Paterno J, Chang EI, Loh SA, et al. Mechanical load initiates hypertrophic scar formation through decreased cellular apoptosis. FASEB J. 2007;21(12):3250-61. doi:10.1096/fj.07-8218com PMID: 17504973
[2] Wipff PJ, Rifkin DB, Meister JJ, Hinz B. Myofibroblast contraction activates latent TGF-beta1 from the extracellular matrix. J Cell Biol. 2007;179(6):1311-23. doi:10.1083/jcb.200704042 PMID: 18086923
[3] Akaishi S, Ogawa R, Hyakusoku H. Keloid and hypertrophic scar: neurogenic inflammation hypotheses. Med Hypotheses. 2008;71(1):32-8. doi:10.1016/j.mehy.2008.01.032 PMID: 18406540
[4] Ogawa R. Keloid and hypertrophic scarring may result from a mechanoreceptor or mechanosensitive nociceptor disorder. Med Hypotheses. 2008;71(4):493-500. doi:10.1016/j.mehy.2008.05.020 PMID: 18614294
[5] Yagmur C, Akaishi S, Ogawa R, Guneren E. Mechanical receptor-related mechanisms in scar management: a review and hypothesis. Plast Reconstr Surg. 2010;126(2):426-434. doi:10.1097/PRS.0b013e3181df715d PMID: 20375759
[6] Dupont S, Morsut L, Aragona M, Enzo E, Giulitti S, Cordenonsi M, et al. Role of YAP/TAZ in mechanotransduction. Nature. 2011;474(7350):179-83. doi:10.1038/nature10137 PMID: 21654799
[7] Ogawa R, Akaishi S, Huang C, Dohi T, Aoki M, Omori Y, et al. Clinical applications of basic research that shows reducing skin tension could prevent and treat abnormal scarring: the importance of fascial/subcutaneous tensile reduction sutures and flap surgery for keloid and hypertrophic scar reconstruction. J Nippon Med Sch. 2011;78(2):68-76. doi:10.1272/jnms.78.68 PMID: 21551963
[8] Ogawa R. Mechanobiology of scarring. Wound Repair Regen. 2011;19 Suppl 1:s2-9. doi:10.1111/j.1524-475X.2011.00707.x PMID: 21793962
[9] Wong VW, Akaishi S, Longaker MT, Gurtner GC. Pushing back: wound mechanotransduction in repair and regeneration. J Invest Dermatol. 2011;131(11):2186-96. doi:10.1038/jid.2011.212 PMID: 21776006
[10] Wong VW, Paterno J, Sorkin M, Glotzbach JP, Levi K, Januszyk M, et al. Mechanical force prolongs acute inflammation via T-cell-dependent pathways during scar formation. FASEB J. 2011;25(12):4498-510. doi:10.1096/fj.10-178087 PMID: 21911593
[11] Wong VW, Rustad KC, Akaishi S, Sorkin M, Glotzbach JP, Januszyk M, et al. Focal adhesion kinase links mechanical force to skin fibrosis via inflammatory signaling. Nat Med. 2011;18(1):148-52. doi:10.1038/nm.2574 PMID: 22157678
[12] Huang C, Ogawa R. Fibroproliferative disorders and their mechanobiology. Connect Tissue Res. 2012;53(3):187-96. doi:10.3109/03008207.2011.642035 PMID: 22329637
[13] Huang X, Yang N, Fiore VF, Barker TH, Sun Y, Morris SW, et al. Matrix stiffness-induced myofibroblast differentiation is mediated by intrinsic mechanotransduction. Am J Respir Cell Mol Biol. 2012;47(3):340-8. doi:10.1165/rcmb.2012-0050OC PMID: 22461426
[14] Ogawa R, Okai K, Tokumura F, Mori K, Ohmori Y, Huang C, et al. The relationship between skin stretching/contraction and pathologic scarring: the important role of mechanical forces in keloid generation. Wound Repair Regen. 2012;20(2):149-57. doi:10.1111/j.1524-475X.2012.00766.x PMID: 22332721
[15] Liu XJ, Xu MJ, Fan ST, Wu Z, Li J, Yang XM, et al. Xiamenmycin attenuates hypertrophic scars by suppressing local inflammation and the effects of mechanical stress. J Invest Dermatol. 2013;133(5):1351-60. doi:10.1038/jid.2012.486 PMID: 23303451
[16] Rustad KC, Wong VW, Gurtner GC. The role of focal adhesion complexes in fibroblast mechanotransduction during scar formation. Differentiation. 2013;86(3):87-91. doi:10.1016/j.diff.2013.02.003 PMID: 23623400
[17] Wong VW, Beasley B, Zepeda J, Dauskardt RH, Yock PG, Longaker MT, et al. A Mechanomodulatory Device to Minimize Incisional Scar Formation. Adv Wound Care (New Rochelle). 2013;2(4):185-194. doi:10.1089/wound.2012.0396 PMID: 24527342
[18] Klingberg F, Chow ML, Koehler A, Boo S, Buscemi L, Quinn TM, et al. Prestress in the extracellular matrix sensitizes latent TGF-β1 for activation. J Cell Biol. 2014;207(2):283-97. doi:10.1083/jcb.201402006 PMID: 25332161
[19] Sarrazy V, Koehler A, Chow ML, Zimina E, Li CX, Kato H, et al. Integrins αvβ5 and αvβ3 promote latent TGF-β1 activation by human cardiac fibroblast contraction. Cardiovasc Res. 2014;102(3):407-17. doi:10.1093/cvr/cvu053 PMID: 24639195
[20] Dohi T, Miyake K, Aoki M, Ogawa R, Akaishi S, Shimada T, et al. Tissue Inhibitor of Metalloproteinase-2 Suppresses Collagen Synthesis in Cultured Keloid Fibroblasts. Plast Reconstr Surg Glob Open. 2015;3(9):e520. doi:10.1097/GOX.0000000000000503 PMID: 26495233
[21] Ishise H, Larson B, Hirata Y, Fujiwara T, Nishimoto S, Kubo T, et al. Hypertrophic scar contracture is mediated by the TRPC3 mechanical force transducer via NFkB activation. Sci Rep. 2015;5:11620. doi:10.1038/srep11620 PMID: 26108359
[22] Piersma B, de Rond S, Werker PM, Boo S, Hinz B, van Beuge MM, et al. YAP1 Is a Driver of Myofibroblast Differentiation in Normal and Diseased Fibroblasts. Am J Pathol. 2015;185(12):3326-37. doi:10.1016/j.ajpath.2015.08.011 PMID: 26458763
[23] Dupont S. Role of YAP/TAZ in cell-matrix adhesion-mediated signalling and mechanotransduction. Exp Cell Res. 2016;343(1):42-53. doi:10.1016/j.yexcr.2015.10.034 PMID: 26524510
[24] Khansa I, Harrison B, Janis JE. Evidence-Based Scar Management: How to Improve Results with Technique and Technology. Plast Reconstr Surg. 2016;138(3 Suppl):165S-178S. doi:10.1097/PRS.0000000000002647 PMID: 27556757
[25] Ogawa R. Keloid and Hypertrophic Scars Are the Result of Chronic Inflammation in the Reticular Dermis. Int J Mol Sci. 2017;18(3):606. doi:10.3390/ijms18030606 PMID: 28287424
[26] Sharma S, Goswami R, Merth M, Cohen J, Lei KY, Zhang DX, et al. TRPV4 ion channel is a novel regulator of dermal myofibroblast differentiation. Am J Physiol Cell Physiol. 2017;312(5):C562-C572. doi:10.1152/ajpcell.00187.2016 PMID: 28249987
[27] Jiang W, Ting K, Lee S, Zara JN, Song R, Li C, et al. Fibromodulin reduces scar size and increases scar tensile strength in normal and excessive-mechanical-loading porcine cutaneous wounds. J Cell Mol Med. 2018;22(4):2510-2513. doi:10.1111/jcmm.13516 PMID: 29392829
[28] Jiang D, Correa-Gallegos D, Christ S, Stefanska A, Liu J, Ramesh P, et al. Two succeeding fibroblastic lineages drive dermal development and the transition from regeneration to scarring. Nat Cell Biol. 2018;20(4):422-431. doi:10.1038/s41556-018-0073-8 PMID: 29593327
[29] Arima J, Dohi T, Kuribayashi S, Akaishi S, Ogawa R. Z-plasty and Postoperative Radiotherapy for Anterior Chest Wall Keloids: An Analysis of 141 Patients. Plast Reconstr Surg Glob Open. 2019;7(3):e2177. doi:10.1097/GOX.0000000000002177 PMID: 31044131
[30] Ogawa R, Tosa M, Dohi T, Akaishi S, Kuribayashi S. Surgical excision and postoperative radiotherapy for keloids. Scars Burn Heal. 2019;5:2059513119891113. doi:10.1177/2059513119891113 PMID: 31840001
[31] Tsai CH, Ogawa R. Keloid research: current status and future directions. Scars Burn Heal. 2019;5:2059513119868659. doi:10.1177/2059513119868659 PMID: 31452957
[32] Adapala RK, Katari V, Teegala LR, Thodeti S, Paruchuri S, Thodeti CK. TRPV4 Mechanotransduction in Fibrosis. Cells. 2021;10(11):3053. doi:10.3390/cells10113053 PMID: 34831281
[33] Bağlı İ, Ogawa R, Bakır S, Taşın C, Yıldırım A, Öcal E, et al. Predictors of the recurrence of surgically removed previous caesarean skin scars at caesarean section: A retrospective cohort study. Scars Burn Heal. 2021;7:20595131211023388. doi:10.1177/20595131211023388 PMID: 34262789
[34] Chen Z, Chen Z, Pang R, Wei Z, Zhang H, Liu W, et al. The effect of botulinum toxin injection dose on the appearance of surgical scar. Sci Rep. 2021;11(1):13670. doi:10.1038/s41598-021-93203-x PMID: 34211099
[35] Chen K, Kwon SH, Henn D, Kuehlmann BA, Tevlin R, Bonham CA, et al. Disrupting biological sensors of force promotes tissue regeneration in large organisms. Nat Commun. 2021;12(1):5256. doi:10.1038/s41467-021-25410-z PMID: 34489407
[36] Deng Z, Subilia M, Chin IL, Hortin N, Stevenson AW, Wood FM, et al. Keloid fibroblasts have elevated and dysfunctional mechanotransduction signaling that is independent of TGF-β. J Dermatol Sci. 2021;104(1):11-20. doi:10.1016/j.jdermsci.2021.09.002 PMID: 34538705
[37] He J, Fang B, Shan S, Xie Y, Wang C, Zhang Y, et al. Mechanical stretch promotes hypertrophic scar formation through mechanically activated cation channel Piezo1. Cell Death Dis. 2021;12(3):226. doi:10.1038/s41419-021-03481-6 PMID: 33649312
[38] Huang C, Ogawa R. Keloidal pathophysiology: Current notions. Scars Burn Heal. 2021;7:2059513120980320. doi:10.1177/2059513120980320 PMID: 34158973
[39] Jiang D, Rinkevich Y. Converting fibroblastic fates leads to wound healing without scar. Signal Transduct Target Ther. 2021;6(1):332. doi:10.1038/s41392-021-00738-6 PMID: 34471094
[40] Jimi S, Saparov A, Koizumi S, Miyazaki M, Takagi S. A novel mouse wound model for scar tissue formation in abdominal muscle wall. J Vet Med Sci. 2021;83(12):1933-1942. doi:10.1292/jvms.21-0464 PMID: 34719609
[41] Kimura S, Tsuji T. Mechanical and Immunological Regulation in Wound Healing and Skin Reconstruction. Int J Mol Sci. 2021;22(11):5474. doi:10.3390/ijms22115474 PMID: 34067386
[42] Knecht RS, Bucher CH, Van Linthout S, Tschöpe C, Schmidt-Bleek K, Duda GN. Mechanobiological Principles Influence the Immune Response in Regeneration: Implications for Bone Healing. Front Bioeng Biotechnol. 2021;9:614508. doi:10.3389/fbioe.2021.614508 PMID: 33644014
[43] Liu L, Yu H, Long Y, You Z, Ogawa R, Du Y, et al. Asporin inhibits collagen matrix-mediated intercellular mechanocommunications between fibroblasts during keloid progression. FASEB J. 2021;35(7):e21705. doi:10.1096/fj.202100111R PMID: 34105826
[44] Liu Z, Li S, Qian X, Li L, Zhang H, Liu Z. RhoA/ROCK-YAP/TAZ Axis Regulates the Fibrotic Activity in Dexamethasone-Treated Human Trabecular Meshwork Cells. Front Mol Biosci. 2021;8:728932. doi:10.3389/fmolb.2021.728932 PMID: 34552960
[45] Mascharak S, desJardins-Park HE, Davitt MF, Griffin M, Borrelli MR, Moore AL, et al. Preventing Engrailed-1 activation in fibroblasts yields wound regeneration without scarring. Science. 2021;372(6540):eaba2374. doi:10.1126/science.aba2374 PMID: 33888614
[46] O’Reilly S, Crofton E, Brown J, Strong J, Ziviani J. Use of tape for the management of hypertrophic scar development: A comprehensive review. Scars Burn Heal. 2021;7:20595131211029206. doi:10.1177/20595131211029206 PMID: 34290886
[47] Wahlsten A, Rütsche D, Nanni M, Giampietro C, Biedermann T, Reichmann E, et al. Mechanical stimulation induces rapid fibroblast proliferation and accelerates the early maturation of human skin substitutes. Biomaterials. 2021;273:120779. doi:10.1016/j.biomaterials.2021.120779 PMID: 33932701
[48] Yang S, Plotnikov SV. Mechanosensitive Regulation of Fibrosis. Cells. 2021;10(5):994. doi:10.3390/cells10050994 PMID: 33922651
[49] Čoma M, Fröhlichová L, Urban L, Zajíček R, Urban T, Szabo P, et al. Molecular Changes Underlying Hypertrophic Scarring Following Burns Involve Specific Deregulations at All Wound Healing Stages (Inflammation, Proliferation and Maturation). Int J Mol Sci. 2021;22(2):897. doi:10.3390/ijms22020897 PMID: 33477421
[50] Eura S, Nakao J, Iimura T, Ichinose S, Kaku C, Dohi T, et al. Hemodynamics and Vascular Histology of Keloid Tissues and Anatomy of Nearby Blood Vessels. Plast Reconstr Surg Glob Open. 2022;10(6):e4374. doi:10.1097/GOX.0000000000004374 PMID: 35702361
[51] Feinendegen DL, Grubnik A, Feinendegen SY. An Algorithm for Prevention of Unsightly Facial Scars Considering the Newest Research Insights. Plast Reconstr Surg Glob Open. 2022;10(11):e4635. doi:10.1097/GOX.0000000000004635 PMID: 36381484
[52] Feng F, Liu M, Pan L, Wu J, Wang C, Yang L, et al. Biomechanical Regulatory Factors and Therapeutic Targets in Keloid Fibrosis. Front Pharmacol. 2022;13:906212. doi:10.3389/fphar.2022.906212 PMID: 35614943
[53] Fernandes MG, da Silva LP, Cerqueira MT, Ibañez R, Murphy CM, Reis RL, et al. Mechanomodulatory biomaterials prospects in scar prevention and treatment. Acta Biomater. 2022;150:22-33. doi:10.1016/j.actbio.2022.07.042 PMID: 35914694
[54] Gao N, Lu L, Ma X, Liu Z, Yang S, Han G. Targeted inhibition of YAP/TAZ alters the biological behaviours of keloid fibroblasts. Exp Dermatol. 2022;31(3):320-329. doi:10.1111/exd.14466 PMID: 34623712
[55] Hosseini M, Brown J, Khosrotehrani K, Bayat A, Shafiee A. Skin biomechanics: a potential therapeutic intervention target to reduce scarring. Burns Trauma. 2022;10:tkac036. doi:10.1093/burnst/tkac036 PMID: 36017082
[56] Liu H, Hu J, Zheng Q, Feng X, Zhan F, Wang X, et al. Piezo1 Channels as Force Sensors in Mechanical Force-Related Chronic Inflammation. Front Immunol. 2022;13:816149. doi:10.3389/fimmu.2022.816149 PMID: 35154133
[57] Moretti L, Stalfort J, Barker TH, Abebayehu D. The interplay of fibroblasts, the extracellular matrix, and inflammation in scar formation. J Biol Chem. 2022;298(2):101530. doi:10.1016/j.jbc.2021.101530 PMID: 34953859
[58] Ogawa R. The Most Current Algorithms for the Treatment and Prevention of Hypertrophic Scars and Keloids: A 2020 Update of the Algorithms Published 10 Years Ago. Plast Reconstr Surg. 2022;149(1):79e-94e. doi:10.1097/PRS.0000000000008667 PMID: 34813576
[59] Petrou IG, Nikou S, Madduri S, Nifora M, Bravou V, Kalbermatten DF. The Role of Hippo Signaling Pathway and ILK in the Pathophysiology of Human Hypertrophic Scars and Keloids: An Immunohistochemical Investigation. Cells. 2022;11(21):3426. doi:10.3390/cells11213426 PMID: 36359821
[60] Samarth A, Budamakuntla L, Shilpa K. The Use of Botulinum Toxin-A as an Adjunctive Treatment for Facial Atrophic and Hypertrophic Scars After Surgical Correction. J Cutan Aesthet Surg. 2022;15(2):131-134. doi:10.4103/JCAS.JCAS_8_21 PMID: 35965916
[61] Shutova MS, Boehncke WH. Mechanotransduction in Skin Inflammation. Cells. 2022;11(13):2026. doi:10.3390/cells11132026 PMID: 35805110
[62] Wen D, Gao Y, Ho C, Yu L, Zhang Y, Lyu G, et al. Focusing on Mechanoregulation Axis in Fibrosis: Sensing, Transduction and Effecting. Front Mol Biosci. 2022;9:804680. doi:10.3389/fmolb.2022.804680 PMID: 35359592
[63] Xu Q, Miao Y, Ren J, Sun Y, Li C, Cai X, et al. Silencing of Nesprin-2 inhibits the differentiation of myofibroblasts from fibroblasts induced by mechanical stretch. Int Wound J. 2022;19(5):978-986. doi:10.1111/iwj.13694 PMID: 34558192
[64] Yin J, Zhang S, Yang C, Wang Y, Shi B, Zheng Q, et al. Mechanotransduction in skin wound healing and scar formation: Potential therapeutic targets for controlling hypertrophic scarring. Front Immunol. 2022;13:1028410. doi:10.3389/fimmu.2022.1028410 PMID: 36325354
[65] Zhang Q, Shi L, He H, Liu X, Huang Y, Xu D, et al. Down-Regulating Scar Formation by Microneedles Directly via a Mechanical Communication Pathway. ACS Nano. 2022;16(7):10163-10178. doi:10.1021/acsnano.1c11016 PMID: 35617518
[66] Berry CE, Downer M, Morgan AG, Griffin M, Liang NE, Kameni L, et al. The effects of mechanical force on fibroblast behavior in cutaneous injury. Front Surg. 2023;10:1167067. doi:10.3389/fsurg.2023.1167067 PMID: 37143767
[67] Chen K, Liu Y, Liu X, Guo Y, Liu J, Ding J, et al. Hyaluronic acid-modified and verteporfin-loaded polylactic acid nanogels promote scarless wound healing by accelerating wound re-epithelialization and controlling scar formation. J Nanobiotechnology. 2023;21(1):241. doi:10.1186/s12951-023-02014-x PMID: 37496007
[68] He J, Fang B, Shan S, Li Q. Mechanical stiffness promotes skin fibrosis through Piezo1-mediated arginine and proline metabolism. Cell Death Discov. 2023;9(1):354. doi:10.1038/s41420-023-01656-y PMID: 37752116
[69] Knoedler S, Broichhausen S, Guo R, Dai R, Knoedler L, Kauke-Navarro M, et al. Fibroblasts – the cellular choreographers of wound healing. Front Immunol. 2023;14:1233800. doi:10.3389/fimmu.2023.1233800 PMID: 37646029
[70] Li M, Wang P, Li J, Zhou F, Huang S, Qi S, et al. NRP1 transduces mechanical stress inhibition via LATS1/YAP in hypertrophic scars. Cell Death Discov. 2023;9(1):341. doi:10.1038/s41420-023-01635-3 PMID: 37704618
[71] Mony MP, Harmon KA, Hess R, Dorafshar AH, Shafikhani SH. An Updated Review of Hypertrophic Scarring. Cells. 2023;12(5):678. doi:10.3390/cells12050678 PMID: 36899815
[72] Oswaldo JIE, Tripodi D, Al-Shaqsi Y, Woods OEF, Valero R. Effects of mechanical forces on the formation of cutaneous wounds during skin expansion and emerging therapies for wound healing and scar prevention. Saudi Med J. 2023;44(1):106-109. doi:10.15537/smj.2023.44.1.20220556 PMID: 36634956
[73] Rajendran V, Ramesh P, Dai R, Kalgudde Gopal S, Ye H, Machens HG, et al. Therapeutic Silencing of p120 in Fascia Fibroblasts Ameliorates Tissue Repair. J Invest Dermatol. 2023;143(5):854-863.e4. doi:10.1016/j.jid.2022.10.018 PMID: 36442618
[74] Wang K, Wen D, Xu X, Zhao R, Jiang F, Yuan S, et al. Extracellular matrix stiffness-The central cue for skin fibrosis. Front Mol Biosci. 2023;10:1132353. doi:10.3389/fmolb.2023.1132353 PMID: 36968277
[75] Zhang Y, Wang S, Yang Y, Zhao S, You J, Wang J, et al. Scarless wound healing programmed by core-shell microneedles. Nat Commun. 2023;14(1):3431. doi:10.1038/s41467-023-39129-6 PMID: 37301874
[76] Zhou S, Xie M, Su J, Cai B, Li J, Zhang K. New insights into balancing wound healing and scarless skin repair. J Tissue Eng. 2023;14:20417314231185848. doi:10.1177/20417314231185848 PMID: 37529248
[77] Cao G, Ye M, Wang H, Liu Y, Li M. The Role of Biomechanical Forces in the Formation and Treatment of Pathological Scars. Clin Cosmet Investig Dermatol. 2024;17:2565-2571. doi:10.2147/CCID.S496253 PMID: 39559183
[78] Chen Q, Li S, Li K, Zhao W, Zhao C. A Skin Stress Shielding Platform Based on Body Temperature-Induced Shrinking of Hydrogel for Promoting Scar-Less Wound Healing. Adv Sci (Weinh). 2024;11(41):e2306018. doi:10.1002/advs.202306018 PMID: 39283032
[79] Cheng X, Gao Z, Shan S, Shen H, Zheng H, Jin L, et al. Single cell transcriptomics reveals the cellular heterogeneity of keloids and the mechanism of their aggressiveness. Commun Biol. 2024;7(1):1647. doi:10.1038/s42003-024-07311-1 PMID: 39702490
[80] Cho H, Dohi T, Wakai H, Quong WL, Linh NDT, Usami S, et al. In the face and neck, keloid scar distribution is related to skin thickness and stiffness changes associated with movement. Wound Repair Regen. 2024;32(4):419-428. doi:10.1111/wrr.13180 PMID: 38602106
[81] He J, Fang B, Shan S, Li Q. Mechanical stiffness promotes skin fibrosis through FAPα-AKT signaling pathway. J Dermatol Sci. 2024;113(2):51-61. doi:10.1016/j.jdermsci.2023.12.004 PMID: 38155020
[82] He J, Cheng X, Fang B, Shan S, Li Q. Mechanical stiffness promotes skin fibrosis via Piezo1-Wnt2/Wnt11-CCL24 positive feedback loop. Cell Death Dis. 2024;15(1):84. doi:10.1038/s41419-024-06466-3 PMID: 38267432
[83] Hong N, Sheng B, Yu P. Early postoperative interventions in the prevention and management of thyroidectomy scars. Front Physiol. 2024;15:1341287. doi:10.3389/fphys.2024.1341287 PMID: 38523809
[84] Jiang Z, Chen Z, Xu Y, Li H, Li Y, Peng L, et al. Low-Frequency Ultrasound Sensitive Piezo1 Channels Regulate Keloid-Related Characteristics of Fibroblasts. Adv Sci (Weinh). 2024;11(14):e2305489. doi:10.1002/advs.202305489 PMID: 38311578
[85] Kim J, Won C, Ham S, Han H, Shin S, Jang J, et al. Increased Susceptibility to Mechanical Stretch Drives the Persistence of Keloid Fibroblasts: An Investigation Using a Stretchable PDMS Platform. Biomedicines. 2024;12(10):2169. doi:10.3390/biomedicines12102169 PMID: 39457482
[86] Kussie HC, Yasmeh JP, Stevens B, Fischer KS, Granoski MB, McKenna E, et al. A Mouse Model of Mechanotransduction-driven, Human-like Hypertrophic Scarring. J Vis Exp. 2024. doi:10.3791/67156 PMID: 39671326
[87] Li YY, Ji SF, Fu XB, Jiang YF, Sun XY. Biomaterial-based mechanical regulation facilitates scarless wound healing with functional skin appendage regeneration. Mil Med Res. 2024;11(1):13. doi:10.1186/s40779-024-00519-6 PMID: 38369464
[88] Li Y, Liu A, Wang J, Yang C, Lv K, He W, et al. Suture-anchored cutaneous tension induces persistent hypertrophic scarring in a novel murine model. Burns Trauma. 2024;12:tkae051. doi:10.1093/burnst/tkae051 PMID: 39429643
[89] Rennekampff HO, Tenenhaus M, Rennekampff I, Alharbi Z. Roles of Mechanosensitive Channel Piezo1 in Wound Healing and Scar Formation. Life (Basel). 2024;14(3):377. doi:10.3390/life14030377 PMID: 38541702
[90] Yang T, Wang L, Ma H, Li K, Wang Y, Tang W, et al. Role of Emerin in regulating fibroblast differentiation and migration at the substrate of stiffness coupled topology. Acta Biochim Biophys Sin (Shanghai). 2024;56(9):1387-1400. doi:10.3724/abbs.2024094 PMID: 38978507
[91] Zhang J, Li S, Kuang C, Shen Y, Yu H, Chen F, et al. CD74+ fibroblasts proliferate upon mechanical stretching to promote angiogenesis in keloids. FASEB J. 2024;38(20):e70103. doi:10.1096/fj.202401302R PMID: 39400419
[92] Akita S, Ikehara S, Kiuchi M, Kokubo K, Azuma K, Ohki S, et al. Increased expression of the PIEZO2 mechanoreceptor in fibroblasts and endothelial cells within the lymphatic and vascular vessels of keloids. J Pathol. 2025;267(1):105-119. doi:10.1002/path.6455 PMID: 40742741
[93] Edger-Lacoursière Z, Zhu M, Jean S, Marois-Pagé E, Nedelec B. Evidence Supporting Conservative Scar Management Interventions Following Burn Injury: A Review Article. J Burn Care Res. 2025;46(3):504-514. doi:10.1093/jbcr/irae204 PMID: 39548761
[94] Fang X, Wang Y, Chen H, Yan Z, Jin S, Wu Y, et al. Hypertrophic Scarring and Keloids: Epidemiology, Molecular Pathogenesis, and Therapeutic Interventions. MedComm (2020). 2025;6(10):e70381. doi:10.1002/mco2.70381 PMID: 41049267
[95] Ge M, Zheng W, Yao P, Gao L, Ge X, Zhang Q, et al. Progress in tension-relieving suturing surgery: revolutionary surgical techniques and patient prognosis evaluation methods. Front Surg. 2025;12:1587582. doi:10.3389/fsurg.2025.1587582 PMID: 40433242
[96] Hong Y, Peng X, Yu H, Jafari M, Shakiba D, Huang Y, et al. Cell-matrix feedback controls stretch-induced cellular memory and fibroblast activation. Proc Natl Acad Sci U S A. 2025;122(12):e2322762122. doi:10.1073/pnas.2322762122 PMID: 40100625
[97] Jiang A, Jiang R, Liu T. A Meta-Analysis of the Efficacy and Safety of Botulinum Toxin Type A for the Management of Scars After Facial Surgery. J Cosmet Dermatol. 2025;24(3):e70111. doi:10.1111/jocd.70111 PMID: 40098230
[98] Kang M, Ko UH, Oh EJ, Kim HM, Chung HY, Shin JH. Tension-sensitive HOX gene expression in fibroblasts for differential scar formation. J Transl Med. 2025;23(1):168. doi:10.1186/s12967-025-06191-1 PMID: 39930512
[99] Liao C, Wang P, Zeng Q, Yan G, Gao J, Liu J, et al. Piezo1-Mediated Calcium Flux Transfers Mechanosignal to Yes-Associated Protein to Stimulate Matrix Production in Keloid. J Invest Dermatol. 2025;145(11):2869-2881.e9. doi:10.1016/j.jid.2025.03.039 PMID: 40254148
[100] Xu X, Wang L, Bi X, Cao T, Gao M, Hu B, et al. Targeted silencing of Engrailed-1 reprograms profibrotic fibroblast lineage for scarless wound healing. Mol Ther. 2025;33(10):4889-4903. doi:10.1016/j.ymthe.2025.07.031 PMID: 40708196
[101] Zhou S, Wang L, Chen N, Liu J, Zhang R, Zhou S, et al. Advances in the interplay between mechanical forces and inflammatory immunity in keloid formation. Front Immunol. 2026;17:1792028. doi:10.3389/fimmu.2026.1792028 PMID: 42112383
相关专页:内减张技术专页 · 全量文章索引 · 医生主页 · 治疗案例记录
相关问答:疤痕增生期多久结束? · 减张器需要戴多久? · 减张缝合是什么?和减张器有什么关系?
关于本文:本文撰写与审核:吕开阳,执业医师,整形外科(主任医师),上海三甲医院。本站为个人科普站点,内容为医学教育材料,不构成对任何个体的诊疗建议;诊断与治疗方案须由具备资质的医师面诊确定,效果存在个体差异。本站不提供在线诊疗与首诊,就医请通过医院官方渠道挂号。沪ICP备2025119709号-1